Konversinya adalah desain ulang, bukan tambahan
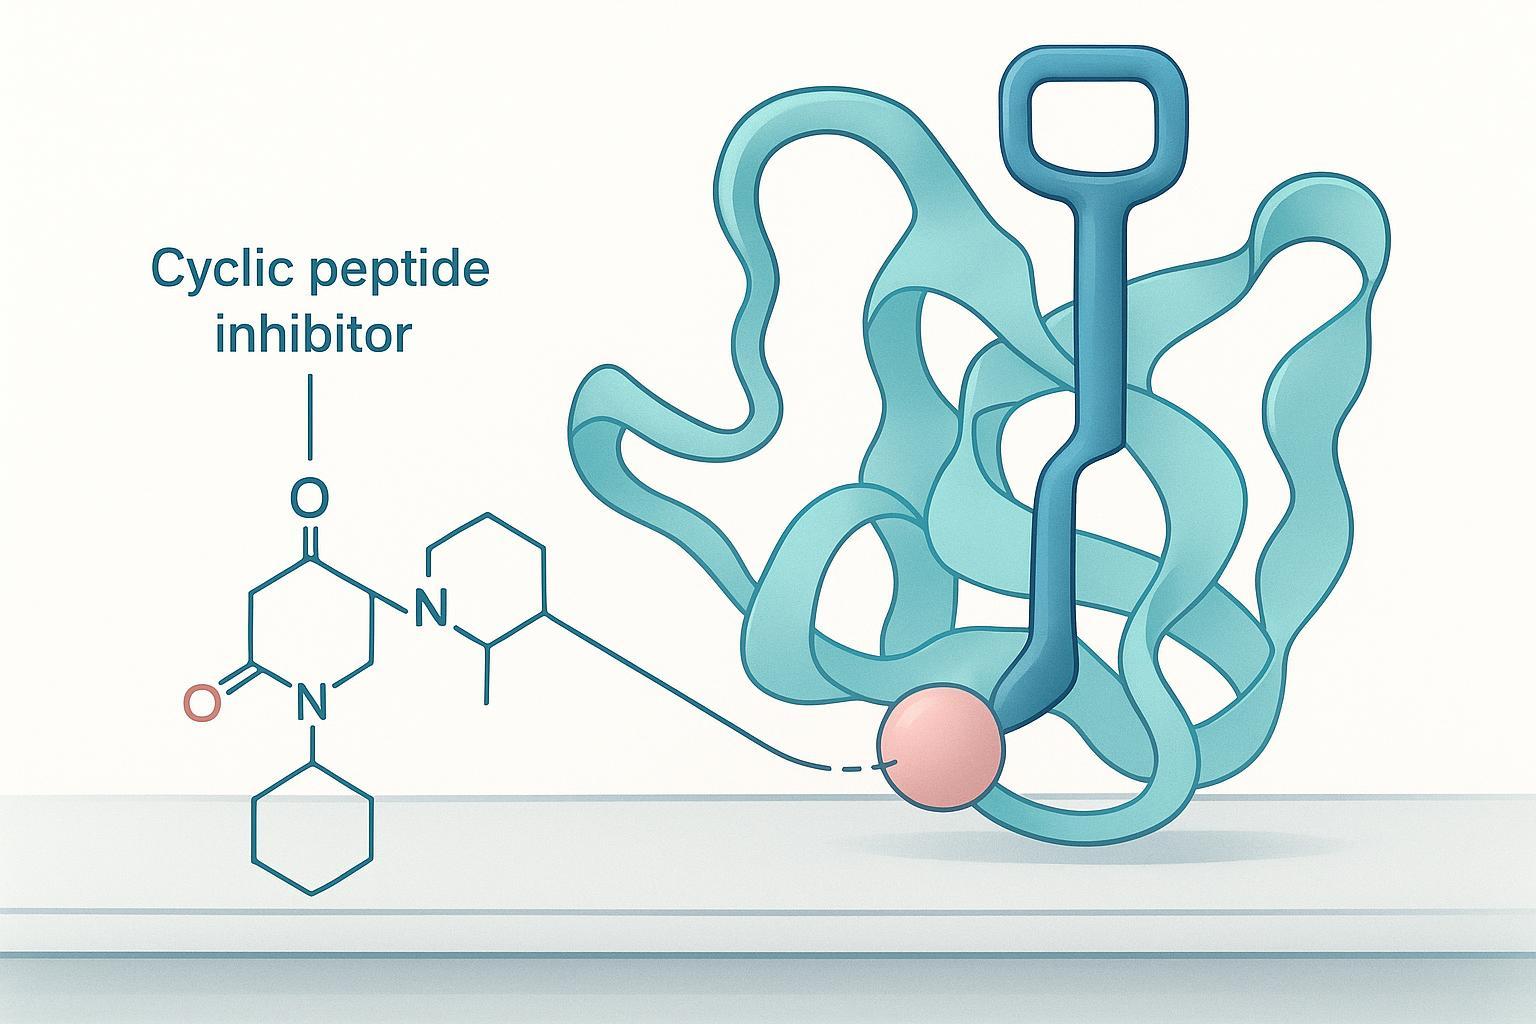
Peptida siklik yang menghambat HIF-1α dengan menempati kantong PAS-B adalah potongan kunci agar sesuai dengan satu kunci. Mengubahnya menjadi degrader berarti mengelas pegangan pada kunci tersebut: linker ditambah elemen perekrutan VHL, diposisikan sedemikian rupa sehingga cincin tetap berada di dalam saku sementara lengan baru terulur untuk merekrut ligase. Gigi tidak bisa berubah. Segala sesuatu yang lain bisa.
Perbedaan itu mendorong keseluruhan proyek. Dalam kasus jangkar, ligan penghubung dan VHL dibuat sebagai asam amino bifungsional khusus dan digabungkan secara langsung selama sintesis peptida fase padat, daripada melekat setelah siklisasi (JACK, PROTAC Peptida Siklik Mengembalikan Degradasi HIF-1α yang Dimediasi VHL dalam Hipoksia, 2026). Konsekuensi praktisnya adalah titik perlekatan menjadi pilihan desain yang ditetapkan pada waktu perakitan rantai, bukan variabel yang Anda atur nanti di bangku cadangan.
Setiap keputusan hilir mengikuti komitmen tersebut: gradien mana yang menyelesaikan konjugasinya, pemeriksaan konformasi mana yang memastikan cincin itu selamat, dan pengujian mana yang dapat membedakan degradasi dari sekadar hunian.
Vektor keluar mana yang harus membawa linker?
Pemilihan lokasi konjugasi adalah keputusan pertama yang menghambat pengambilan keputusan berikutnya, dan aturannya sederhana untuk dinyatakan: pilih posisi yang paling kecil kemungkinannya mengganggu pengikatan dan kemungkinan besar terkena pelarut (Strategi terkini untuk desain penghubung PROTAC, 2020). Ketika struktur co-kristal peptida siklik Anda terikat pada target tersedia, aturan itu dapat dijawab melalui inspeksi. Ketika tidak, inspeksi tidak dapat memutuskan pertanyaan, dan berpura-pura sebaliknya membuat program kehilangan waktu berbulan-bulan.
Layanan Titik pelekatan juga bukan merupakan langkah derivatisasi yang Anda lakukan setelah peptida dioptimalkan. Ini adalah pilihan desain perakitan rantai, diperbaiki sebelum sintesis dimulai, seperti yang terjadi pada kasus jangkar. Mengubah pikiran Anda nanti berarti mensintesis ulang peptida, tidak mengedit rantai samping.
Aturan pemeringkatan empiris: mengurutkan kandidat vektor berdasarkan apa yang dipertahankan masing-masing vektor, dalam urutan ini: afinitas sasaran, lalu perilaku kompleks terner, kemudian degradasi. SAR yang sempit pada posisi yang terlihat terkena pelarut merupakan suatu peringatan, bukan kebisingan. Posisi itu secara konformasi menahan beban, dan pemeringkatannya harus dilakukan ulang.
Memasang linker dan elemen E3
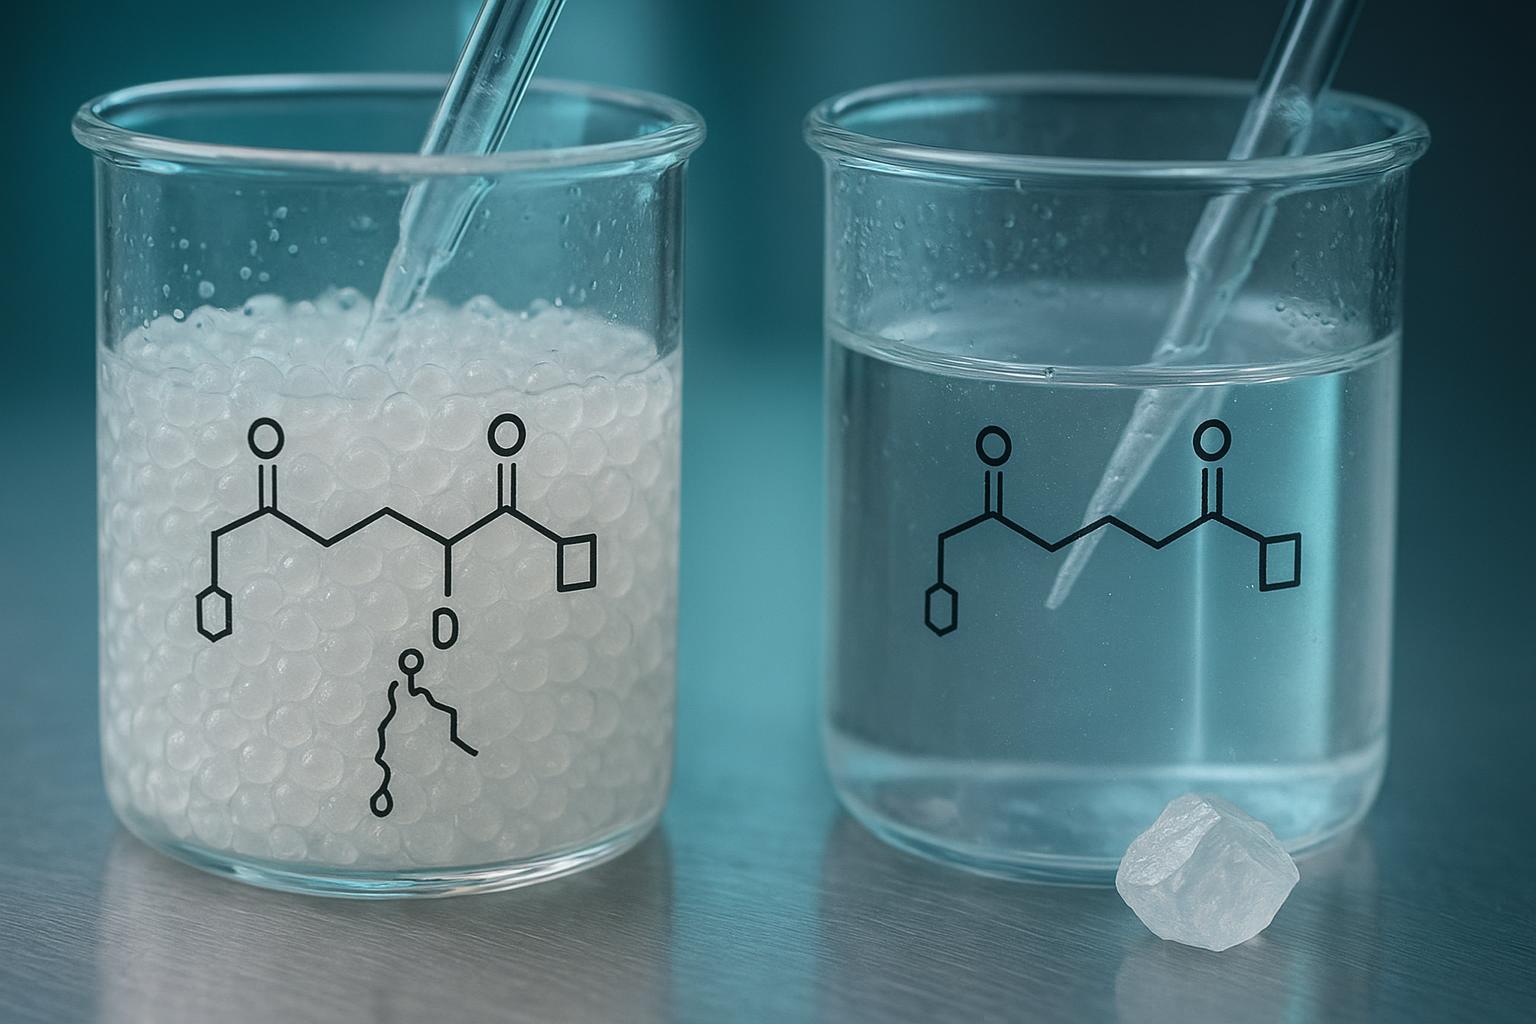
Keputusan rute adalah yang utama, karena konjugasi on-resin dan larutan gagal di tempat yang berbeda. Pemasangan asam amino bifungsional pada resin membangun penghubung ke dalam rantai itu sendiri, jadi skema kelompok pelindung harus menjaga pegangan ortogonal penghubung tetap utuh Toko setiap kopling berikutnya dan langkah siklisasi. Konjugasi solusi setelah siklisasi lebih cepat untuk diulang, tetapi hal ini memaparkan peptida bebas pada kimia aktivasi dua kali dan membuat Anda memurnikan campuran isomer posisi jika residu reaktifnya tidak unik.
Pekerjaan Southampton menunjukkan apa yang didapat dari iterasi tersebut. Seri yang dimulai dengan cyclo-CLLFVY dipindahkan ke hulu ledak generasi kedua, siklo-CLLF(CF3)JIKA(Sdr), membawa penghubung asam amino tidak alami yang lebih panjang yang dimasukkan ke dalam rangkaian daripada ditambahkan setelahnya (McDermott dkk., 2025). Membangun linker ke dalam rantai inilah yang menjadikan panjang linker sebagai variabel desain, bukan masalah pemurnian.
Hal ini penting karena ancaman utama terhadap kemurnian dan pelipatan peptida pada jalur ini adalah epimerisasi, dan itu secara mekanis dapat dihindari. Mengaktifkan asam amino membentuk oksazolon planar yang untuk sementara bersifat kiral pada karbon α, jadi reprotonasi dapat mengembalikan L- atau konfigurasi D. Risiko meningkat dengan aktivasi yang diperpanjang, reagen kopling yang sangat reaktif, dan akumulasi zat antara teraktivasi, dan residu seperti fenilglisin, sistein dan histidin sangat rentan (Bachem; Epimerisasi dalam Sintesis Peptida, 2023).
Besarnya bergantung pada rute, dan studi kelayakan yang dilakukan oleh salah satu vendor menggambarkan penyebarannya, bukan menetapkan patokan: konjugasi rute fragmen dihasilkan secara kasar 13% pembentukan epimer dan dihentikan, sedangkan jalur alternatif menunjukkan 2–3% epimerisasi meningkat menjadi sekitar 5% setelah pemurnian, dan SPPS linier memberikan hasil tertinggi tanpa terdeteksi adanya epimerisasi (Bachem). Bacalah hal tersebut sebagai sinyal tentang kelas rute mana yang membawa risiko, bukan sebagai tingkat yang dapat Anda harapkan pada urutan Anda sendiri. Tentang
Apa yang dapat dan tidak dapat diberitahukan oleh data kemurnian RP-HPLC kepada Anda
Persentase puncak utama tunggal pada 214 nm tidak mengkonfirmasi konjugasi yang benar atau pelipatan yang benar. Ini memberitahu Anda bahwa spesies penyerap UV dalam sampel Anda terelusi sebagai satu pita pada satu gradien. Itu adalah fakta yang berguna, dan ini adalah fakta yang lebih kecil dibandingkan kebanyakan program yang memperlakukannya.
Untuk yang lebih besar, konjugat yang lebih hidrofobik, metode ini menyelesaikan lebih sedikit dibandingkan dengan peptida siklik induk. Elemen linker dan E3 menambah luas permukaan hidrofobik, waktu retensi bergeser, dan spesies yang dipisahkan pada garis dasar pada gradien induk mulai berkolusi. Program pengurai peptida siklus disulfida yang diterbitkan melaporkan praktik persiapannya dengan jelas: satu langkah RP-HPLC pada a 0.1% Gradien TFA air/asetonitril mencapai 26–43%. 40 menit pada 10 mL/min, deteksi di 220 nm, oksidasi dipantau oleh spektrometri massa bersama HPLC, dan pemeriksaan kualitas HPLC akhir sebelum liofilisasi (Perbatasan dalam Imunologi, 2023). Perhatikan apa yang tidak dinyatakan dalam makalah itu: ambang kemurnian apa pun. Angka tersebut merupakan keluaran proses, bukan spesifikasi.
Pemasok biasanya menetapkan kemurnian RP-HPLC ≥95% sebagai dasar evaluasi biologis, ≥98% untuk pekerjaan pengikatan kuantitatif dan respons dosis, dan ≥99% untuk pekerjaan standar referensi, dengan kemurnian yang didefinisikan sebagai area puncak utama dari total area puncak dengan deteksi UV pada 214–220 nm (Genskrip; Proteomik Kreatif, 2025). Perlakukan pita-pita tersebut sebagai konvensi pembelian dan bukan sebagai temuan terukur tentang molekul Anda. Mereka menjelaskan apa yang akan disertifikasi oleh vendor, bukan yang dibutuhkan konjugat Anda.
Kesenjangan ini penting karena kemurnian dan pelipatan peptida adalah pertanyaan yang berbeda, dan RP-HPLC hanya menjawab yang pertama. Epimer yang saling mengelusi, isomer disulfida yang salah lipatan, atau induk yang tidak bereaksi yang kebetulan berjalan pada waktu retensi yang sama, semuanya hadir sebagai puncak tunggal yang bersih. Identitas massal, stereokimia, dan konformasi larutan masing-masing memerlukan metode ortogonal.
Baca matriks sebagai pemeriksaan cakupan, bukan peringkat. RP-HPLC mencakup hidrofobisitas dan kemurnian. LC-MS dan HRMS mencakup identitas massal, itulah cara Anda mengonfirmasi bahwa linker benar-benar terpasang. Chiral LC mencakup stereokimia, itulah cara Anda menangkap epimerisasi di situs konjugasi. Konformasi larutan penutup NMR dan CD, begitulah cara Anda membedakan konjugat terlipat dari konjugat terbuka. Tidak ada satu baris pun yang mencakup lebih dari satu kolom, dan program yang hanya melaporkan baris pertama mempunyai bukti tepat untuk satu dari empat pertanyaan.
Konsekuensi praktis untuk pemilihan lokasi konjugasi: jika paket analitis Anda adalah satu jejak RP-HPLC, Anda belum dapat memastikan apakah vektor keluar yang Anda pilih menghasilkan konjugat yang Anda rancang. Tambahkan metode ortogonal sebelum Anda melakukan rute, tidak setelah pengujian yang mengikat kembali datar.
Verifikasi lipat dan konformasi
Sintesis Peptida Siklisasi membatasi tulang punggung, tetapi hal ini tidak menjamin bahwa konformasi bioaktif dapat bertahan dari penambahan linker. Perbedaan itulah yang menyebabkan bukti konformasi harus ortogonal terhadap bukti kemurnian: setiap kelas metode menjawab pertanyaan yang tidak dapat dijawab oleh kelas metode lainnya.
Chiral LC menyelesaikan stereokimia, jadi ini memberi tahu Anda apakah konjugatnya dirasem pada residu yang Anda pedulikan. Laporan CD tentang struktur sekunder solusi, dan NMR melaporkan kontak spesifik yang menentukan lipatan terikat. Tak satu pun dari ini dapat menggantikan yang lain, dan tidak ada satupun yang menggantikan pembacaan fungsional. Prinsip yang sama mengatur tahap pengujian: sinyal kompleks ternary saja tidak cukup, dan nilai DC50/Dmax seluler saja bersifat fenotipik dan bukan mekanistik (Metode untuk Mempelajari Mekanisme Molekuler dan Mendorong Desain Degrader, diambil 2026-05-14).
Pengambilan Kunci: Kemurnian HPLC yang tinggi bukanlah konjugasi yang benar. Puncak yang bersih dan terkonfirmasi secara massal masih dapat menyebabkan lipatan yang salah pada tahap pengujian.
Untuk paket data Anda, kesenjangan itu adalah risiko untuk ditutup. Konjugat yang lolos kemurnian dan identitas massa tetapi tidak pernah diperiksa konformasinya membawa risiko yang tidak dapat diukur, dan tim pengujian mewarisinya. Perlakukan kemurnian dan pelipatan peptida sebagai dua garis bukti yang terpisah, masing-masing dengan metodenya sendiri dan kriteria penerimaannya sendiri, sebelum materi dilepaskan ke biologi.
Rantai bukti uji fungsional
Klaim degradasi adalah klaim mekanisme, dan tidak ada satu tes pun yang dapat membuktikannya. Rantai bukti memiliki empat mata rantai, dan pengulas akan mencari keempatnya: pembentukan kompleks terner, sasaran di mana-mana, ketergantungan proteasomal, dan potensi kuantitatif dan pembacaan batas atas. Jika paket Anda berhenti setelah tautan pertama, Anda telah menunjukkan pengikatan, bukan degradasi.
Selesaikan rantai dengan data Anda sendiri. Kompleks terner: uji co-kristal atau biofisik yang menunjukkan target, PROTAC dan ligase E3 dalam satu rakitan. Ubiquitinasi: pembacaan langsung atau tidak langsung yang diperoleh target itu sendiri di mana-mana. Ketergantungan proteinosom: penyelamatan oleh inhibitor proteasome. Potensi dan plafon: DC50 dan Dmax dari seri dosis-respons yang sama.
Tautan ketiga adalah yang paling sering dilewati, dan murah untuk menutupnya. Dalam kerja peptida siklik, Kerugian PD-L1 di 2.5 µM setelahnya 4 jam diblokir oleh MG132, itulah yang membedakan degradasi dari efek transkripsional hilir (Perbatasan dalam Imunologi, 2023). Keterlibatan target dapat ditunjukkan dengan cara yang sama: tes pergeseran termal seluler memindahkan DHHC3 dari 49 °C dalam sel yang tidak diberi perlakuan 55 °C dalam sel yang diberi peptida, bukti bahwa senyawa mencapai protein sebelum degradasi diukur (Perbatasan dalam Imunologi, 2023).
Bagan tersebut adalah argumen terkuantifikasi terkuat dalam artikel ini untuk memperlakukan elemen E3 sebagai variabel desain dan bukan sekadar renungan.. Menukar CRBN dengan VHL, dengan bahan kimia hulu ledak yang sama, memindahkan DC50 dari 0.103 µM hingga 1.92 mikron, dan lengan IAP ke 7.530 mikron (Kematian Sel & Penyakit, 2024). Hampir dua kali lipat memisahkan kelompok terbaik dan terburuk dalam pengujian seluler yang sama.
Sekarang kesenjangannya. Seri yang sama melaporkan nilai DC50 tetapi tidak ada Dmax, jadi potensinya sebanding di semua kelompok, sedangkan batas atas degradasi tidak (Kematian Sel & Penyakit, 2024). Suatu senyawa bisa menjadi kuat dan masih menyisakan sebagian besar targetnya. Saat Anda menyerahkan paket dari kimia ke biologi, mintalah kurva dosis-respons penuh, bukan nomor tunggal: dukungan pengujian fungsional berarti kurva, kendali penyelamatan, dan uji pertunangan bersama-sama, karena itulah yang akan diminta oleh pengulas mengenai degradasi HIF-1α atau target lain yang Anda ambil.
Batas keadaan oksigen pada kotak jangkar
PROTAC peptida siklik jangkar mengembalikan degradasi HIF-1α yang dimediasi VHL secara kuat pada 3% O₂, dan tidak menunjukkan degradasi bersih pada 1% O₂. Itu bukanlah kegagalan potensi. Berdasarkan kondisi yang dilaporkan, pengurai tetap terlibat- dan kompeten degradasi di 1% O₂, tapi resintesis target melebihi izin, jadi kolam dalam keadaan tunak tidak pernah jatuh (JACK, PROTAC Peptida Siklik Mengembalikan Degradasi HIF-1α yang Dimediasi VHL dalam Hipoksia, 2026).
Bacalah itu sebagai aturan desain, bukan sebagai catatan kaki: pembacaan degradasi hanya dapat diinterpretasikan terhadap laju resintesis target dalam konteks seluler yang sama. DC50 yang diukur pada satu tekanan oksigen tidak berpindah ke tekanan oksigen lainnya, karena angka yang anda ukur adalah saldo bersih, bukan konstanta izin.
Sebelum Anda membandingkan konjugat Anda dengan DC50 yang diterbitkan, mengkonfirmasi tekanan oksigen, garis sel, dan perilaku resintesis target dalam kondisi yang sama.
Kesalahpahaman umum yang menghabiskan waktu program
Empat kesalahan pengambilan keputusan menyebabkan sebagian besar waktu yang hilang dalam program desain PROTAC peptida siklik. Masing-masing metode ini menggantikan pengukuran yang lebih murah untuk menjawab pertanyaan yang sebenarnya perlu dijawab oleh program.
Kemurnian HPLC yang tinggi bukanlah konjugat yang benar. Sebuah puncak tajam di 95% memberi tahu Anda bahwa materi tersebut homogen dengan satu metode deteksi. Itu tidak memberi tahu Anda bahwa linker berada di residu yang diinginkan, bahwa stereokimia bertahan dari konjugasi, atau ligan E3 masih utuh. Cara mengatasinya adalah karakterisasi ortogonal: LC-MS untuk konfirmasi massal, dan metode kromatografi atau spektroskopi kedua yang memisahkan konjugat dari isomer posisinya.
Pengikatan target yang dipertahankan tidak mencapai degradasi. Uji pengikatan melaporkan hunian. Degradasi membutuhkan ubiquitinasi, keterlibatan proteasomal dan kehilangan target, tidak ada satupun yang terdeteksi oleh pembacaan yang mengikat. Cara mengatasinya adalah dengan memperlakukan pengikatan sebagai sebuah gerbang, bukan titik akhir, dan memerlukan kuantifikasi protein target sebelum mengklaim degradasi.
Kompleks terner dalam pengujian biofisik bukanlah degradasi sel. Pembentukan kompleks terner diperlukan tetapi tidak cukup; kompleks yang stabil masih bisa gagal untuk berkembang di mana-mana. Cara mengatasinya adalah dengan membawa klaim ke dalam sel dan mengukur kadar protein target secara langsung.
DC50 tanpa Dmax adalah gambaran potensi parsial. Potensi dan luasnya merupakan sifat yang terpisah, dan senyawa yang terdegradasi 40% target pada kejenuhan adalah proposisi yang berbeda dari target yang jelas 90%. Cara mengatasinya adalah dengan melaporkan keduanya, selalu, dari seri dosis-respons yang sama.
Kerangka keputusan untuk konversi
Jalankan lima pemeriksaan ini secara berurutan terhadap program Anda sendiri. Masing-masing memiliki mode kegagalan yang terpasang, dan masing-masing lebih murah untuk diperbaiki sebelum perbaikan berikutnya.
-
Beri peringkat calon vektor keluar secara empiris, bukan dengan pemeriksaan. Ekspresikan inhibitor siklik yang sama dengan linker pada dua atau tiga posisi berbeda, jalankan seri konjugat melalui uji pengikatan target, dan biarkan urutan peringkat memilih pemenangnya. Modus kegagalan: memilih vektor yang terlihat paling mudah diakses pada model dan menemukan setelah peningkatan skala bahwa pengikatan telah hilang.
-
Tentukan rute sebelum Anda melakukan linker. Konjugasi pada resin versus larutan menentukan seberapa besar risiko epimerisasi yang Anda tanggung, jadi perlakukan ini sebagai keputusan rute, bukan optimasi yang terlambat. Modus kegagalan: konjugat yang memurnikan dengan bersih tetapi telah kehilangan stereokimia yang menjadi sandaran data pengikatan.
-
Memurnikan, kemudian karakterisasikan secara ortogonal. Kemurnian RP-HPLC dan konfirmasi massa menjawab pertanyaan yang berbeda, dan tidak ada yang melaporkan konformasi. Modus kegagalan: kriteria rilis metode tunggal yang lolos dari kumpulan yang salah lipatan.
-
Verifikasi pelipatan sebelum Anda menghabiskan anggaran pengujian. Dikroisme melingkar, NMR, atau pembacaan pengikatan yang sensitif terhadap struktur mengonfirmasi bahwa konjugat masih menempati konformasi yang diinginkan.
-
Bangun rantai pengujian sebelum mengklaim degradasi. Formasi kompleks terner, keterlibatan sasaran, Peptida Sintetis dan pembacaan degradasi adalah tiga klaim terpisah, dan hasil pengikatan biner hanya mendukung yang pertama.
Pengambilan Kunci: Verifikasi konformasi adalah item yang paling sering dilewati oleh program. Data kemurnian dan konfirmasi massal tidak dapat memberi tahu Anda apakah konjugat terlipat dengan benar, sehingga suatu batch dapat melewati setiap gerbang analitis dan masih gagal secara fungsional.
Urutannya lebih penting daripada satu langkah pun: sebuah program yang memberi peringkat vektor terlebih dahulu dan memverifikasi konformasi sebelum pekerjaan pengujian menghindari sintesis ulang konjugat yang telah dikarakterisasi.
Langkah selanjutnya
Jika program desain PROTAC peptida siklik ada di peta jalan Anda, langkah selanjutnya yang berguna adalah percakapan pelingkupan daripada keputusan pembelian. Bawalah tiga hal: urutan jangkar Anda dan data struktural apa pun, vektor keluar yang Anda pilih atau kandidat yang Anda timbang, dan hasil pengujian yang diterima tim Anda sebagai bukti degradasi. Ketiga masukan tersebut menentukan apakah konversi merupakan instalasi linker langsung atau desain ulang yang memerlukan chemistry baru.
Untuk tim yang membutuhkan partner sintesis dan karakterisasi, Perubahan MOL menyatakan kemampuan sintesis fermentasi fase padat dan mikroba, pemurnian lingkungan terkendali, HPLC/MS dan QC sterilitas, dan skala mg-ke-kg. Kisaran tersebut paling penting ketika program konjugasi berpindah dari materi skala analitis ke kuantitas yang diperlukan oleh rangkaian pengujian fungsional. Produksi Peptida
Pengambilan Kunci: Konstruksi yang dijelaskan di sini adalah reagen penelitian. Terjemahan klinis apa pun memerlukan validasi independen, dan tidak ada apa pun dalam panduan ini yang dapat menggantikan konfirmasi analitis dan biologis Anda.
Penyingkapan: organisasi penulis menyediakan layanan sintesis dan karakterisasi peptida dari jenis yang dibahas dalam artikel ini.
Diskusikan program konjugasi khusus. Bagikan urutan jangkar Anda, vektor keluar target dan titik akhir pengujian yang diperlukan, dan meminta paket dokumentasi analitis (metode kemurnian, gradien, Konfirmasi MS dan pelipatan data) bersamaan dengan panggilan pelingkupan. Mulailah diskusi program.
Pertanyaan yang sering diajukan
Apa yang harus saya lakukan jika tidak ada struktur co-kristal peptida siklik saya yang terikat pada target?
Beri peringkat posisi keterikatan kandidat secara empiris alih-alih menunggu struktur. Ekspresikan peptida dengan penghubung pada setiap kandidat residu, lalu ukur secara berurutan: afinitas target dipertahankan, pembentukan kompleks terner dengan ligase E3, dan degradasi seluler. Posisi yang menoleransi substitusi akan mempertahankan afinitasnya; yang tidak didiskualifikasi. Perlakukan hubungan struktur-aktivitas yang sempit pada posisi kandidat sebagai sinyal berhenti, karena vektor keluar mungkin terkubur di antarmuka pengikatan.
Apakah penghubung yang lebih panjang selalu lebih baik untuk PROTAC peptida siklik?
TIDAK. Panjang dan komposisi penghubung mengubah geometri kompleks terner, dan geometri mendorong potensi di kedua arah. Yang sering dikutip 5-15 jendela atom berasal dari rekap sekunder yang halaman utamanya tidak dapat dibaca dalam proses ini, jadi perlakukan rentang tertentu sebagai hipotesis awal untuk diuji pada serangkaian kecil, bukan spesifikasi untuk dirancang.
Bagaimana cara membedakan epimerisasi dari masalah pelipatan pada data analitik saya?
Gunakan metode ortogonal, karena satu puncak utama RP-HPLC tidak dapat memisahkan kedua mode kegagalan. Chiral LC atau NMR menyelesaikan stereokimia pada residu yang terkena; dichroism melingkar dan laporan NMR tentang konformasi solusi. Epimerisasi dikenal sebagai bahaya kimia konjugasi dan bukan topik pembicaraan vendor, jadi ketika kemurnian dan pelipatan peptida keduanya terlihat dapat diterima dan aktivitas masih menurun, jalankan pemeriksaan stereokimia sebelum mendesain ulang linker.
Berapakah kadar minimum yang ditetapkan untuk mengklaim degradasi, bukan penghambatan?
Empat pengukuran: formasi kompleks terner, sasaran di mana-mana, ketergantungan proteasomal dikonfirmasi oleh penyelamatan tipe MG132, dan DC50 dan Dmax kuantitatif dari kurva dosis-respons. Kompleks terner saja tidak cukup, karena pengikatan tanpa transfer di mana-mana tidak membuktikan apa pun tentang degradasi. DC50 dan Dmax sendiri bersifat fenotipik: mereka menunjukkan target menghilang tanpa menunjukkan proteasome yang menyebabkannya. Laporkan set tersebut bersama-sama, dan sebutkan garis sel dan titik waktu untuk masing-masingnya.