此次改造是一次重新设计, 不是附加组件
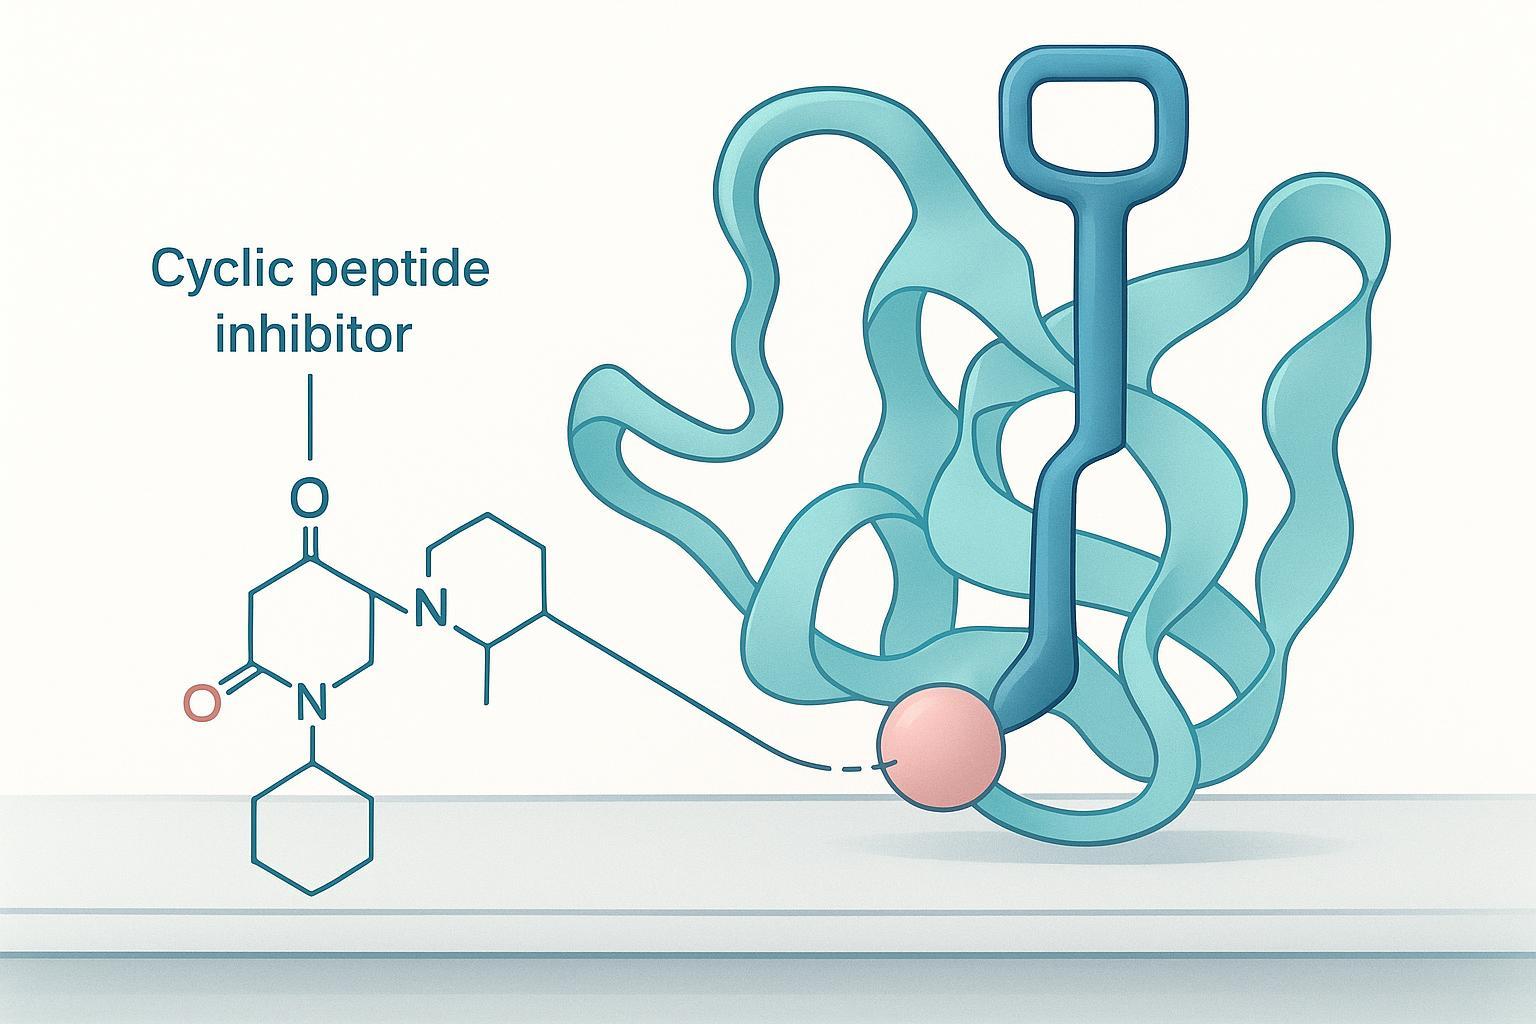
通过占据 PAS-B 口袋来抑制 HIF-1α 的环肽是一把钥匙就能安装一把锁. 将其变成降级器意味着将手柄焊接到该钥匙上: 一个链接器加上一个 VHL 招募元件, 定位,使环仍然位于口袋中,同时新臂伸出以招募连接酶. 牙齿无法改变. 其他都可以.
这种区别推动了整个项目. 在锚案例中, 连接子和 VHL 配体作为定制双功能氨基酸内置,并在固相肽合成过程中直接掺入, 而不是环化后附着 (杰克斯, 环肽 PROTAC 恢复缺氧时 VHL 介导的 HIF-1α 降解, 2026). 实际结果是,连接点成为链条组装时固定的设计选择, 不是您稍后在工作台上调整的变量.
每个下游决策都源于该承诺: 哪个梯度解析共轭, 哪种构象检查证实环幸存下来, 哪种检测可以区分退化和单纯的占用.
哪个退出向量应携带链接器?
接合位点的选择是第一个决定,制约着以后的每一个决定, 规则很简单: 选择最不可能干扰结合且最有可能暴露于溶剂的位置 (目前 PROTAC 连接子的设计策略, 2020). 当与靶标结合的环肽的共晶结构可用时, 该规则可以通过检查来回答. 当它不是时, 检查不能决定问题, 假装不然,程序就会损失几个月的时间.
服务 连接点也不是肽优化后固定的衍生化步骤. 这是一种链条装配设计选择, 在合成开始之前修复, 就像锚案例一样. 稍后改变主意意味着重新合成肽, 不编辑侧链.
经验排名规则: 根据每个候选向量保留的内容对候选向量进行排名, 按这个顺序: 目标亲和力, 然后是三元复合体行为, 然后降解. 看起来有偿付能力的头寸的较窄SAR是一个警告, 不是噪音. 该位置在构象上是承重的, 并且排名必须重做.
安装链接器和 E3 元素
路线决定是第一位的, 因为树脂上和溶液缀合在不同的地方失败. 双功能氨基酸在树脂上的安装将连接子构建到链本身中, 因此保护基团方案必须通过以下方式保持链接器的正交句柄完整 店铺 每个后续偶联和环化步骤. 环化后溶液共轭的迭代速度更快, 但它会将游离肽暴露于活化化学两次,并且如果反应残基不是唯一的,则可以纯化位置异构体的混合物.
南安普顿的工作展示了迭代的意义. 该系列从环-CLLFVY开始转向第二代弹头, 环CLLF(CF3)如果(溴), 携带更长的非天然氨基酸接头内置于序列中而不是随后附加 (麦克德莫特等人。, 2025). 将连接子构建到链中使得连接子长度成为设计变量而不是纯化问题.
这很重要,因为这条路线上肽纯度和折叠的主要威胁是差向异构化, 从机制上来说这是可以避免的. 激活氨基酸形成平面恶唑酮,其 α-碳暂时为非手性, 所以重质子化可以返回 L- 或 D 配置. 风险随着激活时间的延长而上升, 高反应性偶联剂, 和累积的活化中间体, 以及苯甘氨酸等残留物, 半胱氨酸和组氨酸尤其容易 (巴赫姆; 肽合成中的差向异构化, 2023).
幅度取决于路线, 一家供应商的可行性工作说明了差异,而不是设定了基准: 片段路线缀合大致产生 13% 差向异构体形成并被终止, 而替代途径显示 2-3% 的差向异构化上升至约 5% 纯化后, 线性 SPPS 产率最高,未检测到差向异构化 (巴赫姆). 将其视为有关哪些路线类别存在风险的信号, 不是您可以按照自己的顺序预期的速率. 关于
RP-HPLC 纯度数据可以告诉您什么,不能告诉您什么
单个主峰百分比 214 nm 既不能确认正确的缀合,也不能确认正确的折叠. 它告诉您样品中的紫外线吸收物质在一个梯度上作为一个谱带洗脱. 这是一个有用的事实, 这是一个比大多数程序所认为的更小的事实.
对于较大的, 更疏水的缀合物, 该方法的解析度低于母体环肽. 连接体和 E3 元件增加疏水表面积, 保留时间发生变化, 在母梯度上基线分离的物种开始共洗脱. 已发表的二硫环化肽降解剂程序清楚地报道了其制备实践: RP-HPLC 一步 0.1% TFA 水/乙腈梯度运行 26–43% 40 分钟在 10 毫升/分钟, 检测于 220 纳米, 通过质谱法和 HPLC 监测氧化, 以及冻干前的最终 HPLC 质量检查 (免疫学前沿, 2023). 注意该论文没有说明的内容: 任何纯度阈值. 该数字是过程输出, 不是规格.
供应商通常指定 ≥95% RP-HPLC 纯度作为生物学评估的底线, 定量结合和剂量反应工作≥98%, 参考标准工作≥99%, 纯度定义为 214–220 nm 处 UV 检测的主峰面积除以总峰面积 (金斯瑞; 创意蛋白质组学, 2025). 将这些条带视为购买惯例,而不是对您的分子的测量结果. 它们描述了供应商将认证的内容, 不是您的结合物需要的.
差距很重要,因为肽纯度和折叠是不同的问题, RP-HPLC 仅回答第一个. 共洗脱差向异构体, 错误折叠的二硫键异构体, 或碰巧在相同保留时间运行的未反应母体均以干净的单峰形式出现. 大众身份, 立体化学, 和溶液构象都需要正交方法.
读取矩阵作为覆盖率检查, 不是排名. RP-HPLC 涵盖疏水性和纯度. LC-MS 和 HRMS 涵盖质量鉴定, 这是确认链接器实际安装的方式. 手性 LC 涵盖立体化学, 这就是在结合位点捕获差向异构化的方法. NMR 和 CD 覆盖溶液构象, 这就是区分折叠共轭物和未折叠共轭物的方法. 没有单行覆盖多于一列, 仅报告第一行的程序恰好有四个问题之一的证据.
接合位点选择的实际结果: 如果您的分析包是一个 RP-HPLC 痕量分析包, 您还无法判断您选择的退出向量是否产生了您设计的共轭. 在提交路线之前添加正交方法, 结合测定结果平坦后不会.
折叠和构象验证
多肽合成 环化限制了主干, 但它并不能保证生物活性构象在连接子添加后仍然存在. 这种区别就是为什么构象证据必须与纯度证据正交: 每个方法类都回答了其他方法类不能回答的问题.
手性 LC 解析立体化学, 所以它告诉您缀合物是否在您关心的残基处外消旋. CD 报告溶液二级结构, 以及关于定义绑定折叠的特定接触的 NMR 报告. 这些都不能替代另一个, 并且它们都不能替代功能读数. 测定阶段遵循相同的原理: 仅三元复信号是不够的, 细胞 DC50/Dmax 值仅是表型而非机制 (研究分子机制和驱动降解器设计的方法, 检索到的 2026-05-14).
要点: 高 HPLC 纯度不是正确的缀合物. 干净且经过质量确认的峰仍可能将错误的折叠带入分析阶段.
对于您的数据包, 这个差距就是缩小的风险. 通过纯度和质量鉴定但从未进行构象检查的缀合物会带来未量化的风险, 检测团队继承了它. 将肽纯度和折叠视为两条独立的证据线, 每个都有自己的方法和自己的验收标准, 在材料被释放到生物学之前.
功能分析证据链
退化声明是机制声明, 并且没有任何一种检测能够携带它. 证据链有四个环节, 审稿人会寻找所有四个: 三元络合物形成, 靶标泛素化, 蛋白酶体依赖性, 以及定量效力和上限读数. 如果您的包裹在第一个链接后停止, 你已经证明了绑定, 不降解.
根据您自己的数据沿着链条进行工作. 三元络合物: 显示目标的共晶或生物物理测定, PROTAC 和 E3 连接酶在一个组件中. 泛素化: 目标本身获得泛素的直接或间接读数. 蛋白酶体依赖性: 蛋白酶体抑制剂的救援. 效力和上限: DC50 和 Dmax 来自同一剂量反应系列.
第三个链接是最常被跳过的链接, 而且关闭起来很便宜. 在环肽工作中, PD-L1 丢失 2.5 µM 之后 4 小时被 MG132 封锁, 这就是降解与下游转录效应的区别 (免疫学前沿, 2023). 目标参与度可以用同样的方式显示: 细胞热位移分析将 DHHC3 从 49 °C 未经处理的细胞 55 肽处理细胞中的°C, 证据表明该化合物在测量任何降解之前就到达了蛋白质 (免疫学前沿, 2023).
该图表是本文中最有力的量化论点,它将 E3 元素视为设计变量而不是事后的想法. 将 CRBN 替换为 VHL, 具有相同的弹头化学成分, 将 DC50 移至 0.103 µM 至 1.92 微米, 和 IAP 臂 7.530 微米 (细胞死亡 & 疾病, 2024). 在同一细胞测定中,最好的组和最差的组相差近两个数量级.
现在差距. 同系列报告了 DC50 值,但没有 Dmax, 因此,各臂的效力具有可比性,而退化上限则不同 (细胞死亡 & 疾病, 2024). 化合物可能很有效,但仍能保留大部分目标. 当你把一个包裹从化学转到生物学时, 索取完整的剂量反应曲线, 不是单一的数字: 功能分析支持意味着曲线, 救援控制, 和参与度分析一起, 因为这是审稿人对 HIF-1α 降解或您提出的任何其他目标的要求.
锚壳的氧态极限
锚定环肽 PROTAC 可在以下条件下强力恢复 VHL 介导的 HIF-1α 降解 3% 氧气, 并显示没有净退化 1% 氧气. 这不是效力失败. 在报告的条件下,降解器保持接合状态- 和降解能力 1% 氧气, 但目标的再合成速度超过了清除速度, 所以稳态池永远不会下降 (杰克斯, 环肽 PROTAC 恢复缺氧时 VHL 介导的 HIF-1α 降解, 2026).
将其视为设计规则而不是脚注: 降解读数只能根据相同细胞环境中目标的再合成率来解释. 在一种氧张力下测量的 DC50 不会转移到另一种氧张力下, 因为您测量的数字是净余额, 不是间隙常数.
在将您的偶联物与已发布的 DC50 进行比较之前, 确认氧压, 细胞系, 以及相同条件下目标的再合成行为.
浪费计划时间的常见误解
环肽 PROTAC 设计程序中的大部分时间损失是由四个决策错误造成的. 每个都用一种更便宜的测量来替代程序实际需要回答的问题.
高 HPLC 纯度不是正确的缀合物. 单个尖峰位于 95% 通过一种检测方法告诉您材料是均质的. 它不会告诉您连接子位于预期的残基上, 立体化学在缀合中幸存下来, 或者E3配体是完整的. 解决办法是正交表征: 用于质量确认的 LC-MS, 以及将缀合物与其位置异构体分离的第二种色谱或光谱方法.
保留的靶标结合未实现降解. 结合测定报告占用情况. 降解需要泛素化, 蛋白酶体参与和靶标丢失, 结合读数均未检测到. 解决方法是将绑定视为门, 不是端点, 并在声称降解之前要求对目标蛋白进行定量.
生物物理测定中的三元复合物不是细胞降解. 三元络合物的形成是必要的但还不够; 稳定的复合物仍然可能无法泛素化. 解决方法是将声明带入细胞并直接测量目标蛋白水平.
没有 Dmax 的 DC50 是部分效能图. 效力和程度是独立的属性, 和一种可降解的化合物 40% 饱和目标与清除目标的命题是不同的命题 90%. 解决方法是报告两者, 总是, 来自相同的剂量反应系列.
转换的决策框架
针对您自己的程序按顺序运行这五项检查. 每一个都附有一个故障模式, 并且在下一个之前修复每个都更便宜.
-
根据经验对候选退出向量进行排名, 不是通过检查. 在两个或三个不同位置表达具有连接子的相同环状抑制剂, 通过靶标结合测定运行缀合物系列, 让排名顺序选出获胜者. 失效模式: 选择模型上看起来最容易访问的向量,并在放大后发现绑定消失了.
-
在提交链接器之前确定路线. 树脂上缀合与溶液缀合决定了您所承担的差向异构化风险有多大, 所以将其视为路线决策而不是后期优化. 失效模式: 纯化干净但失去了结合数据所依赖的立体化学的缀合物.
-
净化, 然后正交表征. RP-HPLC 纯度和质量确认回答不同的问题, 也没有人报告构象. 失效模式: 通过错误折叠批次的单一方法放行标准.
-
在花费检测预算之前验证折叠. 圆二色性, 核磁共振, 或结构敏感的结合读数确认缀合物仍占据预期构象.
-
在声称降解之前构建检测链. 三元络合物形成, 目标参与度, 合成肽 和退化读数是三个独立的声明, 并且二进制绑定结果仅支持第一个.
要点: 构象验证是程序最常跳过的项目. 纯度数据和质量确认无法告诉您缀合物是否正确折叠, 因此批次可以通过每个分析门,但仍然无法正常工作.
顺序比任何单个步骤都更重要: 首先对载体进行排序并在分析工作之前验证构象的程序避免了重新合成已经表征的缀合物.
后续步骤
如果您的路线图上有环肽 PROTAC 设计程序, 有用的下一步是进行范围界定对话,而不是购买决定. 带三样东西: 您的锚序列和任何结构数据, 您选择的退出向量或您正在权衡的候选人, 以及您的团队将接受的检测读数作为退化证据. 这三个输入决定转换是直接连接器安装还是需要新化学物质的重新设计.
对于需要综合和表征合作伙伴的团队, MOL 改变固相和微生物发酵合成能力, 受控环境净化, HPLC/MS 和无菌 QC, 和毫克到公斤的比例. 当缀合物程序从分析规模材料转向功能测定系列所需的数量时,该范围最为重要. 多肽生产
要点: 这里描述的构建体是研究试剂. 任何临床翻译都需要独立验证, 本指南中的任何内容都不能替代您自己的分析和生物学确认.
披露: 作者的组织提供本文讨论的肽合成和表征服务.
讨论定制结合程序. 分享您的锚定序列, 目标退出向量和所需的测定终点, 并索取分析文件包 (纯度法, 坡度, MS确认和折叠数据) 与范围界定调用一起. 开始程序讨论.
常见问题
如果我的环肽没有与靶标结合的共晶结构,我该怎么办?
根据经验对候选附件位置进行排名,而不是等待结构. 在每个候选残基处表达带有接头的肽, 然后依次测量: 保留目标亲和力, 使用 E3 连接酶形成三元复合物, 和细胞降解. 容忍替代的立场保持其亲和力; 不符合者将被取消资格. 将候选位置处的狭窄结构-活动关系视为停止信号, 因为退出向量可能隐藏在绑定界面中.
对于环肽 PROTAC 来说,连接体越长越好吗??
不. 连接子长度和组成改变三元复合物几何形状, 几何形状在两个方向上驱动效力. 经常被引用的 5-15 原子窗口来自二次回顾,其主要页面在此运行中无法读取, 因此,将任何特定范围视为在小系列中进行测试的起始假设, 不是设计依据的规范.
如何根据分析数据区分差向异构化和折叠问题?
使用正交方法, 因为单个 RP-HPLC 主峰无法区分两种失效模式. 手性 LC 或 NMR 解析受影响残基的立体化学; 溶液构象的圆二色性和 NMR 报告. 差向异构化是共轭化学的已知危险,而不是供应商的讨论点, 因此,当肽纯度和折叠看起来都可以接受并且活性仍然下降时, 在重新设计链接器之前运行立体化学检查.
声称降解而不是抑制的最低检测设置是多少?
四次测量: 三元络合物形成, 靶标泛素化, MG132型救援证实蛋白酶体依赖性, 以及来自剂量反应曲线的定量 DC50 和 Dmax. 单独三元配合物是不够的, 因为没有泛素化转移的结合不能证明降解. DC50 和 Dmax 单独是表型: 他们显示目标消失了,但没有显示引起它的蛋白酶体. 一起举报集合, 并说明每个细胞系和时间点.