Yleiskatsaus
Tymosiini beeta 4 (TV4) on pienimolekyylinen proteiini, joka koostuu useista aminohappotähteistä ja on laajalti jakautunut ihmiskehon eri kudoksiin ja soluihin.[1][2] Yhtenä tärkeimmistä aktiinia säätelevistä molekyyleistä ihmiskehossa, sillä on useita biologisia toimintoja ja sillä on ratkaiseva rooli kudosten uudistamisessa, uudistaminen, haavan paranemista, aktiinitasapainon ylläpitäminen, kasvaimen kehittyminen ja metastaasit, solujen apoptoosi, tulehdus, angiogeneesi, karvatupen kehitys, ja muut fysiologiset ja patologiset prosessit.
Biologiset toiminnot ja toimintamekanismit
Tβ4 on yksi tärkeimmistä aktiinia säätelevistä molekyyleistä ihmiskehossa ja sillä on useita biologisia toimintoja, jolla on merkittävä rooli kudosten uudistamisessa, uudistaminen, haavan paranemista, aktiinitasapainon ylläpitäminen, kasvaimen kehittyminen ja metastaasit, solujen apoptoosi, tulehdus, angiogeneesi, karvatupen kehitys, ja muut fysiologiset ja patologiset prosessit.
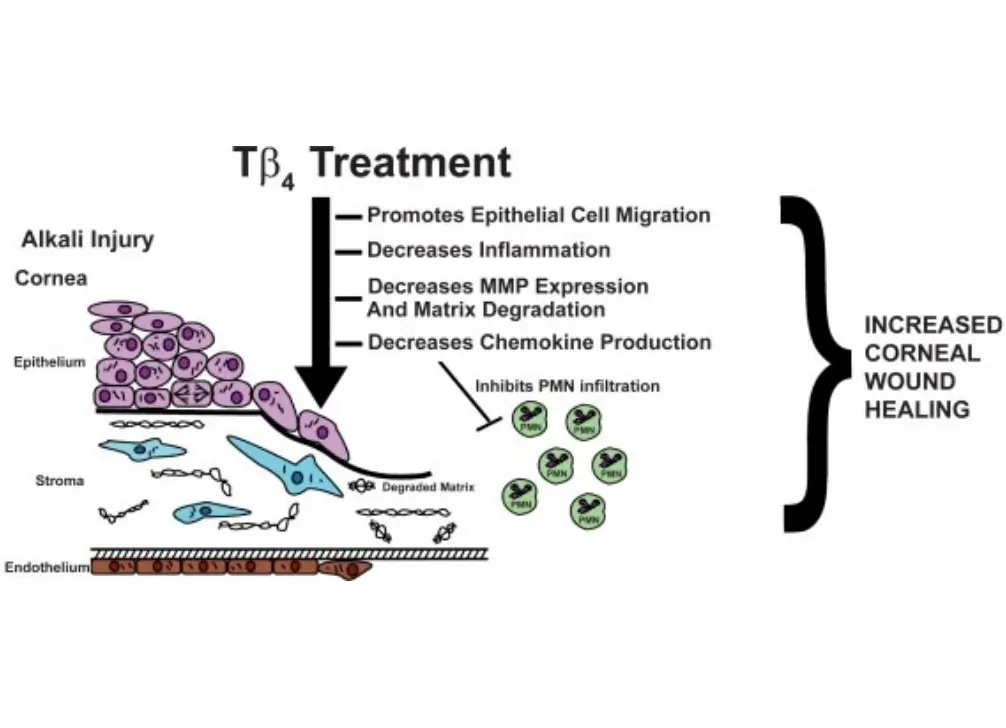
Lähde: Hammaslääkärin puhelinlinja
- Aktiinia säätelevä tekijä: Aktiinin osuus on noin 10% ei-lihassolujen kokonaisproteiinista ja on olennainen osa solun rakenteessa, solujen liikettä, ja haavan paranemista. Tβ4:n läsnäolo soluissa riittää eristämään kaikki aktiinimonomeerit ja osallistumaan aktiinin polymeroitumisen ja depolymeroinnin säätelyyn. Tβ4 voi sitoutua aktiinimonomeereihin a 1:1 suhde, estää F-aktiinipolymeerien muodostumisen. Tβ4:n sitoutumiseen aktiiniin liittyy sitoutuneen veden dissosioituminen. Tp4:n C-terminaali sitoutuu aktiini His-40:een, aiheuttaa konformaatiomuutoksia aktiinimonomeereissä. Tβ4-molekyyli sisältää aktiinia sitovan domeenin (LUKITTU), joka on tärkein sähköstaattinen kosketuskohta. Sen N-terminaalinen fragmentti voi estää aktiinin polymeroitumisen steerisen esteen kautta. Yksin toimiessaan, Tβ4 voi estää aktiinin polymeroitumista ja nukleotidien vaihtoa aktiinissa. Tämä on ristiriidassa toisen aktiinia sitovan proteiinin roolin kanssa, Profiili, joka edistää ADP:n ja ATP:n vaihtoa, nopeuttaa aktiinin kokoonpanoa. [1][2]Tβ4 ja Profilin voivat synergistisesti säädellä aktiinin kokoonpanoa. Tβ4 voi säädellä G-aktiinin ja F-aktiinin välistä konversiota. On raportoitu, että Tβ4:n pitoisuus saavuttaa 300 pmol erittäin liikkuvissa verisoluissa, kun taas pitoisuus, joka tarvitaan Tp4:n sitoutumiseen G-aktiiniin, on pienempi kuin 20 pmol. Keskittymisen lisääntyessä, Tβ4 vähentää F-aktiinin depolymerointikykyä. Tämä voi olla syy siihen, miksi Tβ4 säätelee solun mikrofilamenttijärjestelmän toimintaa.
Edistää endoteelisolujen migraatiota ja angiogeneesiä: Tutkimukset kanan korioallantoiskalvolla (CAM) angiogeneesimalli on osoittanut, että kun endoteelisolut erilaistuvat putkimaisiksi rakenteiksi, Tp4:n mRNA-pitoisuus kasvaa viisinkertaiseksi, ja transfektio Tβ4:llä nopeuttaa putkimaisten rakenteiden muodostumista endoteelisoluklooneissa. Lisäksi, Tutkimukset ovat osoittaneet, että Tβ4 voi olla vuorovaikutuksessa transglutaminaasin välittämän fibriinin ja kollageenin kanssa (Tekijä XIIIa) ja niillä on tärkeä rooli veren hyytymisprosessissa. Lisäksi, täyspaksuisessa ihovauriokokeessa ikääntyville diabeettisille hiirille, Tβ4 voi nopeuttaa laajojen ihohaavojen ja syvien palovammojen paranemista, edistää ihon ja sarveiskalvon paranemista, ja osoittaa kykynsä nopeuttaa haavan paranemista.
Solujen apoptoosin esto: Tβ4:llä on merkittävä suojaava vaikutus sarveiskalvon epiteelisoluihin, joita syövyttävät aineet, kuten bentsalkoniumkloridi tai etanoli, vahingoittavat. Tβ4-geenin ilmentymisen lisääntyminen on hyödyllistä solujen hypoksiaresistenssin lisäämiseksi.[2][3]
Keskeisten tulehdusmolekyylien säätely: Haavan paraneminen on monimutkainen biologinen prosessi, joka voidaan jakaa kolmeen erilliseen vaiheeseen: tulehdus, solujen lisääntyminen, ja kudosten uudelleenmuotoilu, relevanttien proteiinien geenin ilmentymisen ollessa ylös- ja sitten alasäädelty kussakin vaiheessa. Kroonisille haavoille, tätä säätelyprosessia voivat häiritä tekijät, kuten ikä, taustalla olevia sairauksia, ja immunosuppressiiviset lääkkeet, mikä johtaa liialliseen tulehduksellisten molekyylien tuotantoon, liiallinen tulehdus, ja esti solujen lisääntymistä ja kudosten uudelleenmuodostumista. Tutkimukset ovat osoittaneet, että Tβ4 voi vähentää vapaiden radikaalien määrää, hidastaa lipidien peroksidaatiota, estävät tulehduksellisten sytokiinien, kuten IL-1, tuotantoa, makrofagien tulehduksellinen proteiini 1α (MIP1a), MIP1β, monosyyttien kemotaktinen proteiini-1 (MCP-1), vähentää tromboksaanin ja prostaglandiini 2α:n tasoja, siten lievittää tulehdusta. Siksi, sitä voidaan käyttää tulehdussairauksien, kuten segmentaalisen suolitulehduksen ja lihasatrofian, hoitoon.
Aikuisen epikardiaalisen kantasolujen erilaistumisen stimulointi: Tβ4:llä on ratkaiseva rooli sepelvaltimoiden kehityksen eri osissa ja se voi merkittävästi stimuloida lepotilassa olevien aikuisten hiiren epikardiaalisiirteiden kasvua, palauttaa fibroblastien moniteho, sileät lihassolut, ja endoteelisolut, ja saamaan aikaan niiden erilaistumisen.[1][2] Tβ4-geenin katkaisu sydämessä johtaa Tβ4:n angiogeenisen katkaisutuotteen tasojen merkittävään laskuun (AcSDKP). Vaikka AcSDKP-injektio ei voi palauttaa sydäntä, se voi merkittävästi parantaa aikuisen hiiren epikardiaalisen esisolujen erilaistumista endoteelisoluiksi. Tämä viittaa siihen, että Tβ4 ja AcSDKP ovat tehokkaita sepelvaltimon ja uudissuonittumisen stimulaattoreita, ja Tp4-indusoidut aikuisen hiiren epikardiaaliset solut voivat toimia verisuonten regeneraation lähteenä, mikä johtaa vaurioituneen verisuoniston jatkuvaan regeneroitumiseen matalalla tasolla sydänvaurion jälkeen.
Hiustuppien kehityksen stimulointi: Tβ4 edistää muuttoa, erilaistuminen, ja karvatupen kantasolujen solunulkoisen matriisin rekonstruktio, sääteleen siten hiusten kasvua. Rotilla ja hiirillä tehdyissä tutkimuksissa on havaittu, että hiusten kasvusyklin aikana, spesifinen osajoukko karvatupen keratinosyyttejä, jotka ovat peräisin pullistuma-alueelta, ekspressoivat voimakkaasti Tβ4:ää, kun taas ihon kantasoluja on myös karvatupen pullistumassa. Kun Tβ4-pitoisuus on nanomolaarisella tasolla, kantasolujen migraatio ja erilaistuminen tehostuvat, ja Tp4:n läsnäolo lisää myös matriksin metalloproteinaasi-2:n ilmentymistä ja eritystä (MMP-2), solunulkoinen matriisia hajottava entsyymi.
Suhde kasvaimen muodostumiseen: Tβ4-geenin lisääntymistä on havaittu useissa kasvainsoluissa, mukaan lukien medullaarinen kilpirauhassyöpä, paksusuolen syöpä, erittäin pahanlaatuinen melanooma, rintasyöpä, ja suun okasolusyöpä. Tp4 voi tehokkaasti indusoida verisuonten endoteelin kasvutekijän ilmentymisen, edistää angiogeneesiä ja aktivoi solujen migraatio-ominaisuuksia, johtaa kasvaimen pahanlaatuisuuteen. Tβ4:n ilmentymisen ylössäätely johtaa E-kadheriinin ilmentymisen vähenemiseen, solujen adheesion heikkeneminen, ja matriksin metalloproteinaasien lisääntynyt ilmentyminen, tarjoaa kasvuetua ja invasiivisia ominaisuuksia syöpäsoluille, edistää siten pahanlaatuisuutta. Tβ4:llä on anti-apoptoottisia ominaisuuksia, ja Tp4:n lisääntynyt ilmentyminen voi vähentää solun apoptoosin laajuutta, mahdollisesti johtuen Tβ4:stä, joka estää sytokromi c:n vapautumista ja häiritsee apoptoosiprosessin alkamista, joka on toinen tärkeä pahanlaatuisten kasvainten ominaisuus.
Sarveiskalvon korjauksen edistäminen: Tymosiini β4 on osoittanut kykynsä edistää haavan paranemista erilaisissa sarveiskalvovauriomalleissa ja säädellä tiettyjen avainsytokiinien tuotantoa. Tutkimukset ovat osoittaneet, että tymosiini β4 voi vähentää matriisin metalloproteinaasien ilmentymistä, edistää solunulkoisen matriisin uusiutumista, ja aktivoivat sytokiinejä. Erityisesti, se estää matriisin metalloproteinaasien toimintaa, vastoin tymosiini β4:llä käsitellyistä ihovauriomalleista tehtyä johtopäätöstä. [1][2][3]Tämä viittaa siihen, että tiettyjen entsyymien säätelyreitit kudoksen korjausprosessissa voivat olla joko ylös- tai alasäädeltyjä..
Valmistusmenetelmä
Tällä hetkellä, tymosiini beetalla on kaksi päälähdettä 4 (TV4) käytetään kliinisissä ja tutkimusympäristöissä: uuttaminen naudan kateenkorvasta ja kemiallinen synteesi. Tβ4:n uuttaminen naudan kateenkorvasta ei ole vain kallista, vaan sitä rajoittavat myös materiaalin saatavuus ja uuttotekniikat, tuloksena on alhainen puhtaus ja alhainen pitoisuus. Epäpuhtauksien läsnäolo tuo myös monia ongelmia, varsinkin kun otetaan huomioon virusten lisääntyminen karjassa, mikä vaikeuttaa uuttoprosessia. Geenitekniikan kehityksen myötä, geenitekniikan menetelmien hyödyntäminen Tβ4:n tuottamiseksi tulee uudeksi suunnaksi. Meidän laboratoriossa, aiomme suorittaa keinotekoisesti syntetisoidun Tβ4:n tandem-ilmentämisen kasveissa saadakseen siirtogeenisiä kasveja, joilla on tehokas Tβ4:n ilmentyminen. Verrattuna luonnollisesti uutettuun Tβ4:ään, Siirtogeenisiä kasveja käyttämällä tuotetun Tp4:n etuna on korkeampi bioaktiivisuus, korkeampi puhtaus, ja vähemmän sivuvaikutuksia. Lisäksi, se edustaa optimaalista lähestymistapaa tuotantokustannusten alentamiseen, minimoimalla saastumisen, ja mahdollistaa laajamittaisen tuotannon.[3]
Tausta
Tymosiini beeta 4 on peptidi, joka koostuu 43 aminohappotähteet, joiden isoelektrinen piste on 5.1 ja se on erittäin säilynyt nisäkkäissä. Se on pikemminkin sytoplasminen proteiini kuin ydinproteiini, toisin kuin tymosiini alfa tai vastaavat tymosiinit. [2][3]Tymosiini beeta 4 osallistuu erilaisiin fysiologisiin toimintoihin, mukaan lukien immuunitoiminta, hermoston kehitys, haavan paranemista, ja aktiiniproteiinin toiminnot.
Toisin kuin tymosiini alfa tai vastaavat tymosiinit, tymosiini beeta 4 on sytoplasminen proteiini eikä ydinproteiini. Se sisältää vähemmän hydrofobisia aminohappoja eikä sisällä Lys-Lys-Xaa-Lys-rakennealuetta. Kemialliset konformaatiotutkimukset ovat osoittaneet, että tymosiini beeta 4 on olemassa ja toimii yhtenä ketjuna. Siinä on sisäinen toistoalue tähteiden välillä 31-43 ja 18-30, kuudella identtisellä aminohapolla. Vaikka tähteiden välillä on kaksi erittäin kierteistä aluetta 4-12 ja 32-40, tymosiini beeta 4 ei muodosta proliinikäännettä. Biologisen leviämisen ja ilmentymisen kannalta, tymosiini beeta 4 puhdistettiin alun perin kateenkorvasta. Siksi, sen uskottiin alun perin olevan kateenkorvahormoni, joka vaikuttaa varhaisen vaiheen T-solujen kypsymiseen. Kuitenkin, tymosiini beeta 4 esiintyy laajalti muissa kudoksissa, elimiä, ja solut, korkeimmat pitoisuudet pernassa, kateenkorva, keuhkoihin, ja peritoneaaliset makrofagit, perässä aivot, maksa, munuaiset, kivekset, ja sydän. Jopa ei-retikuloendoteliaalijärjestelmän solut, kuten fibroblastit, voivat syntetisoida tymosiini beeta 4. Tymosyyteillä on seitsemän kertaa korkeammat tymosiinibeetan tasot 4 mRNA kuin kateenkorvan stroomasolut, ja tymosiini beeta 4 ilmentymistä havaitaan erilaisissa verisolutyypeissä. Tymosiini beetan tutkimukset 4 cDNA ovat osoittaneet, että siitä puuttuu signaalipeptidi.[1] Vaikka kehossa on myös erittyviä proteiineja, joista puuttuu signaalipeptidejä, kuten interleukiini-1 (IL-1) ja endoteelin kasvutekijät, Asiantuntijat uskovat edelleen, että tymosiini beeta 4 on epätodennäköistä, että se on erittyvä proteiini ja on todennäköisemmin välttämätön tietyille solun perustoiminnoille.
Sovellus
Perus- ja sovellettu tutkimus endoteelisolujen toiminnan optimoinnista tymosiinibeetalla 4 (TV4)
Ikeemisten sydän- ja verisuonitautien ilmaantuvuus ja kuolleisuus ovat kasvaneet vuosi vuodelta, aiheuttaa vakavan uhan ihmisten terveydelle. Näiden sairauksien patogeneesi on erittäin monimutkainen, ja endoteelisolujen toimintahäiriöllä on ratkaiseva rooli iskeemisten sydän- ja verisuonisairauksien kehittymisessä. Vaikka kypsät endoteelisolut voivat korjata endoteelivaurioita, niiden uusiutumiskyky on rajallinen. Endoteeliset progenitorisolut (EPC:t) ovat eräänlainen verisuonten endoteelisolujen esiastesolu ja niillä on mahdollisuus erilaistua endoteelisoluiksi. Lukuisat tutkimukset ovat osoittaneet, että EPC:t näyttelevät erilaisia rooleja verisuonten korjaamisessa ja uudissuonituksissa. Kuitenkin, EPC-siirron kliininen soveltaminen kohtaa edelleen monia haasteita. Useat sydän- ja verisuonitaudit tai riskitekijät, kuten ikääntyminen, verenpainetauti, hyperkolesterolemia, ja diabetes voivat vähentää kiertävien EPC:iden määrää ja heikentää niiden toimintaa, rajoittaa suuresti niiden käyttöä iskeemisissä sydän- ja verisuonisairauksissa. Siksi, EPC:iden toiminnan parantaminen on tärkeä strategia tulevassa EPC-siirtoterapiassa.[1][2]
Tymosiini beeta 4 (TV4), pienimolekyylipainoinen proteiini, joka koostuu 43 aminohappotähteet, on osallisena erilaisten biologisten vasteiden, kuten angiogeneesin, välittämisessä, haavan paranemista, ja tulehduksen hallintaan. Aiemmat tutkimuksemme ovat osoittaneet, että Tβ4 voi tehostaa ihmisen ääreisveren EPC:iden proliferaatiota ja migraatiota samalla kun se estää niiden apoptoosia ja vanhenemista. Tβ4 lisää merkittävästi EPC:iden angiogeenistä kykyä, jotka osoittavat annoksesta riippuvaa suhdetta maksimivaikutuksella klo 1000 /ml (verrokkiryhmään verrattuna, 33.33±1,86 vs 18,34±2,02, P<0.05). Western blot -analyysi osoittaa, että Tβ4 edistää Akt Ser473:n ja eNOS Ser1177:n fosforylaatiota, myös annoksesta riippuvainen suhde. Akt siRNA ja eNOS siRNA estävät molemmat merkittävästi Tβ4:n pro-angiogeenisiä vaikutuksia EPC:ihin.
- Ihohaavojen hoito
- Sydän- ja aivoverisuonivammojen hoito
- Silmävammojen hoito
- Muut sovellukset
Biologisten toimintojensa vuoksi, mukaan lukien endoteelisolujen migraation edistäminen, estää solujen apoptoosia, anti-inflammatoriset vaikutukset, ja edistää karvatupen kehitystä, Tβ4 osoittaa myös merkittävää potentiaalia ihonhoidossa, ihon ikääntymisen torjuntaan, ja edistää hiusten kasvua, muun muassa terveydenhuoltoon.

Jinling Liu
Profiili: Jinling Liu on erikoistunut peptidilääkkeiden prosessimuuntamiseen laboratoriomittakaavasta (milligramman taso) kaupallisen mittakaavan tuotantoon (kilon taso). Hän on sitoutunut vähentämään merkittävästi peptidien tuotantokustannuksia ja minimoimaan ympäristön saastumista optimoimalla pilkkoutumisolosuhteet, kondensaatioreagenssien suhteiden parantaminen, ja jatkuvan virtauksen synteesitekniikan käyttöönotto. Hän on johtanut useiden peptidiprojektien optimointia, saavuttaa onnistuneesti edullisia kustannuksia, erittäin puhdasta massatuotantoa 100 kilogramman mittakaavassa.
- Peptiditoimittajan asteikko vs. erikoistuminen: 2026 Ostajan opas 2026年9月24日
- Peptidin valmistuskapasiteetti: Kolikkopelien suunnittelu & Toimittajan pätevyys 2026年9月23日
- Peptidien ulkoistaminen: Mitä 39,79 miljardin dollarin ennuste tarkoittaa 2026年9月23日
- FAIR peptidin toksisuustiedot: MAOMAO Triage -opas 2026年9月23日
- Peptidikandidaatin varmistus: 5-Vaiheen validointiopas 2026年9月22日
Faktantarkistusprosessimme
Pidämme sisällössämme etusijalla tarkkuutta ja eheyttä. Näin säilytämme korkeat standardit:
- Asiantuntijan arvostelu: Kaikki artikkelit ovat aiheen asiantuntijoiden arvioimia.
- Lähteen validointi: Tietojen taustalla on uskottava, ajantasaiset lähteet.
- Läpinäkyvyys: Mainitsemme selkeästi viittaukset ja paljastamme mahdolliset ristiriidat.
Arvostelulautakuntamme
Kokeneet ammattilaiset tarkistavat sisältömme huolellisesti tarkkuuden ja osuvuuden varmistamiseksi.
- Pätevät asiantuntijat: Jokaisen artikkelin arvioivat alakohtaiset asiantuntijat.
- Ajantasaiset näkemykset: Otamme mukaan uusimmat tutkimukset, suuntauksia, ja standardeja.
- Sitoutuminen laatuun: Arvostelijat varmistavat selkeyden, oikeellisuus, ja täydellisyyttä.
Etsi asiantuntijoiden arvioima tarra lukeaksesi sisältöä, johon voit luottaa.