Тиз җавап
How expanded genetic codes reshape ncAA selection, peptide library design, conjugation strategy and the sequence fidelity controls that prove what you buil
Пептид дизайны өчен генетик кодларның киңәйтелгәннәре чынлыкта үзгәрә
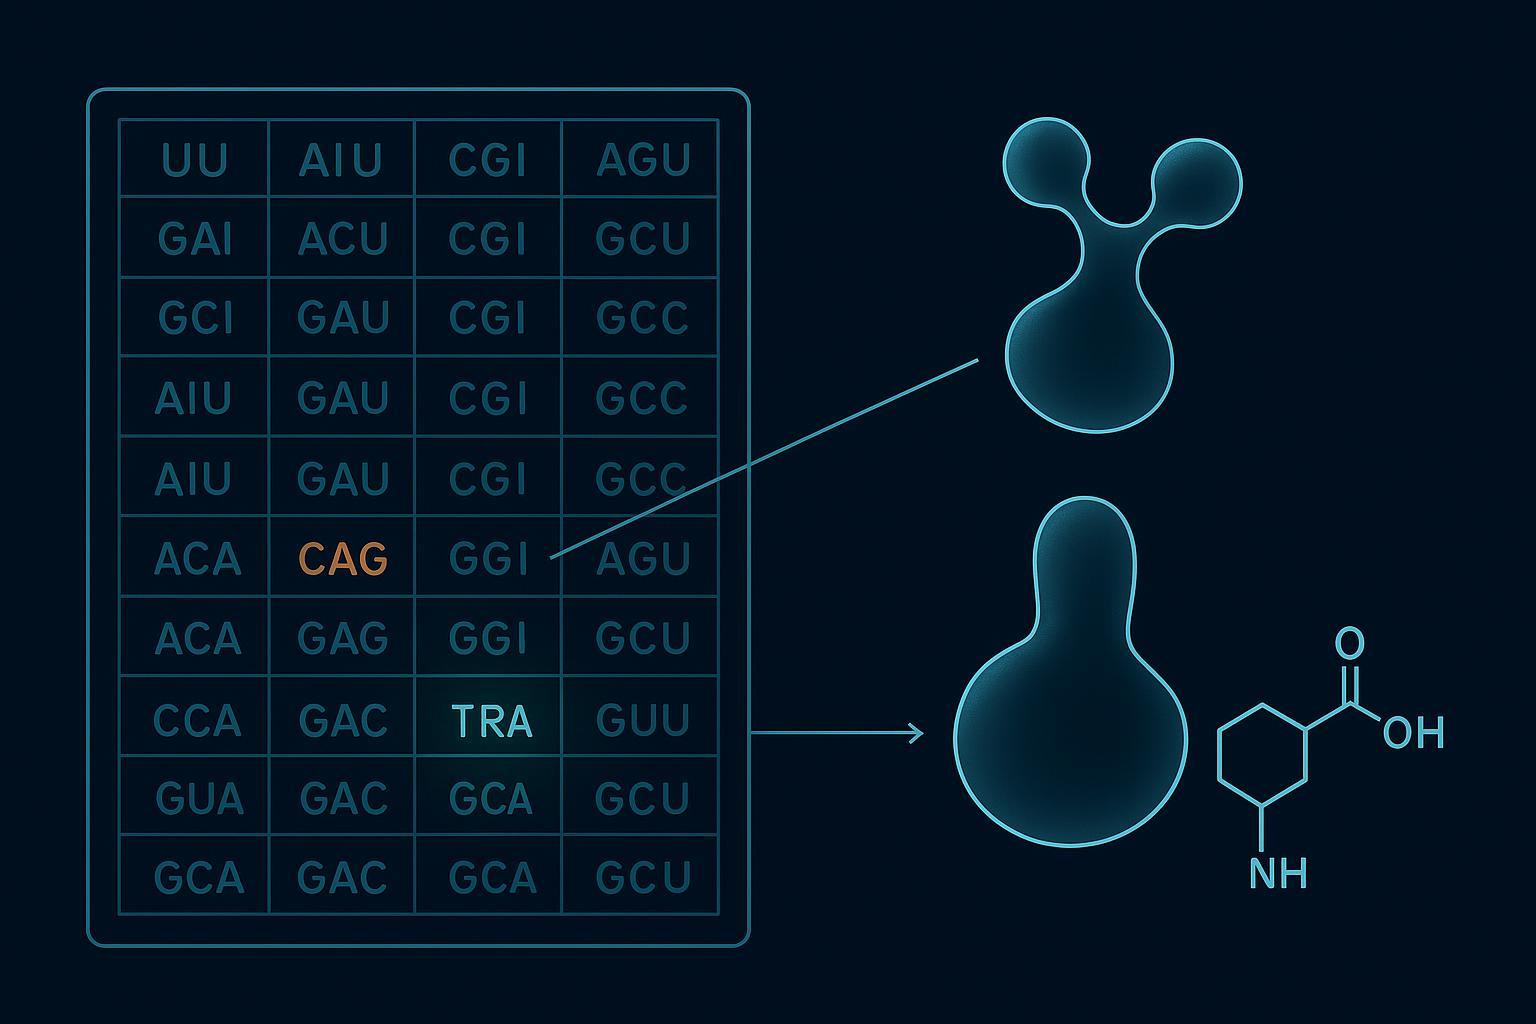
Стандарт генетик код билгеләнә 64 кодлар: 61 код кодлары һәм 3 кодларны туктату, һәм һәрбер мәгънә кодоны берсен күрсәтә 20 каноник аминокислоталар (Аддген генетик коды киңәйтү коллекциясе, соңгы тапкыр каралды 19 Ноябрь 2025). Зурайтылган генетик код бу биремне яңадан яза. Бер яки берничә код кодон реинимациясе аша каноник булмаган аминокислотага юнәлтелә, махсус оргональ tRNA тарафыннан урнаштырылган сайт / аминоацил-tRNA синтетаз парлары, үз инженерлы tRNA гына зарядка ясыйлар һәм хуҗада башка бернәрсә дә юк.
Бу билгеләмә ул бикләнгән уңышсызлык режимыннан азрак мөһим. Эмбер (UAG) бастыру тукталыш кодоны аша укый, шуңа күрә ул чыгару факторы белән турыдан-туры көндәшлек итә 1. Басу бу ярышны югалтканда, Нәтиҗә - вакытыннан алда туктату һәм киселгән продукт, кабатланган югалту яки RF1-нокаут хуҗалары киметү өчен махсус эшләнгән (Табигать биотехнологиясе, 11 Сентябрь 2024). Sense-кодонны бүтән билгеләү уңышсыз була: яңадан билгеләнгән кодон үзенең төп мәгънәсе белән көндәшлек итә, шуңа күрә продукт кыска чылбыр түгел, каноник характеристика булган катнашма буларак килә.
Ачкыч юл: Эмберне кысу кисү белән уңышсыз; тойгы-кодонны билгеләү катнашма белән уңышсыз. Уңыш һәм чисталык мөстәкыйль хәрәкәт итә, һәм сез мирас итеп алган уңышсызлык режимы сез сайлаган код стратегиясе белән куелган, тәэмин итүченең нинди оста булуы белән түгел.
[Диаграмма: UAG белән 64 кодлы өстәл һәм бер мәгънәле кодон күрсәтелгән, һәрберсе аның ортогональ tRNA / синтетаз парына укланган]
Ни өчен корал тартмасы караудан тизрәк күчте
Күпчелек командалар химиядән артта калалар. А. 2025 карау санауны тәмамлый 300 генетик кодны киңәйтүдә уңышлы кулланылган каноник булмаган аминокислоталар (Табигать элемтәләре, 29 Сентябрь 2025), шул вакытта эзләү нәтиҗәләрендә иң күп китерелгән күзәтү 2014. Плазмид дәрәҗәсендәге ресурслар якынрак темпта тордылар: Аддгенның киңәйтелгән GCE коллекциясе исемлеге якынча 150 синтетаз плазмидлары һәм 26 бактерия штаммнары, соңгы тапкыр каралган эчтәлек белән 19 Ноябрь 2025 (Аддген). Әгәр сезнең сайлау кыска исемлеге ун еллык күзәтүдән төзелгән булса, булганына караганда кечерәк корал тартмасын тасвирлый.
Генетик кодлар ничек киңәйтелгән, каноник булмаган аминокислотаны сайлау
Шул ук кодон стратегиясе шулай ук каноник булмаган аминокислотаны сайлау шартларын билгели, монда пар сайлау, калдык сайлау түгел, мәҗбүри чикләү. Кайсы tRNA-синтетаз парын куллана алуыгызны дүрт фактор хәл итә: субстрат, кодон стратегиясе, кабул итүче организм, һәм берьюлы бердән артык ncAA кодларга кирәкме. Алар аша бу тәртиптә эшләгез һәм калдык каталогындагы күпчелек ирек юкка чыга.
Ике платформа өстенлек итә. .Әр сүзнең Methanocaldococcus jannaschii TyrRS / tRNA ^ Тир пар тиросинга охшаган һәм хуш исле чылбырларны кабул итә. Пирролизил-ТРНА синтетаз скафолды һәм аның эволюцион вариантлары лизинга охшаган һәм зур калдыклар ала., һәм структур төрлелеккә түзә. Игътибар итегез, RF1 нокаут - бастыру эффективлыгын күтәрә торган төп стратегия, өченче пар түгел.
|
Хезмәтләр Feзенчәлек |
М.. jannaschii TyrRS / tRNA ^ Тыр |
PylRS / tRNA ^ Pyl вариантлары |
|---|---|---|
|
Субстрат күләме |
Тиросинга охшаган, хуш исле |
Лизинга охшаган, зур, структур яктан төрле |
|
Кодон стратегиясе |
Эмбер (UAG) бастыру |
Эмбер, очер, яисә мәгънә-кодонны билгеләү |
|
Хост яраклашуы |
E.. coli, чүпрә, имезүчеләр күзәнәкләре |
E.. coli, имезүчеләр күзәнәкләре, күзәнәксез системалар |
|
Мультиплексинг яраклылыгы |
Чикләнгән; субстрат толерантлыгы |
Оргональ парны киңәйтү өчен яхшырак |
Мультиплексинг - кыр хәрәкәтләнгән урында. А. 2024 кодон-кысу стратегиясе билгеләнде 12 үзара ортогональ tRNA-синтетаз парлары билгеле GCE ресурслар җыелмасына туры килә, сезнең дизайнда бер чылбырда ике яки күбрәк аерылып торган ncAA кирәк булса, бу мөһим.
Аннары рибосома нәрсә урнаштыра ала һәм SPPS гына эшли ала торган чик бар. --Аминокислота арка сөягендә ян чылбыр модификациясе GCE белән туры килә. β-аминокислоталар, а,α-бүленгән калдыклар, депсипептидларда, һәм күп N-метилат калдыклары юк; алар бары тик SPPS яки витрода гына. Әгәр сезнең максат калдыклары бу исемлектә утырса, пар сайлау аны коткара алмас.
Намус белән уку кысу эффективлыгы
Басу эффективлыгы диапазон, һәм диапазон штамм һәм репортер белән бәйләнгән нәрсәне аңлата. Элегерәк системалар бер амбар код өчен якынча 10–20% китерделәр. Оптимальләштерелгән һәм эволюцияләнгән системалар контекстка карап 50–117% ка җитәләр, һәм RF1 бетерелгән C321 штаммында 76-104%. Бу саннар төрле конструкцияләрне сурәтли, шуңа күрә алар иң күп санны сайлап күтәрелә торган баскыч түгел.
Берләштерү эффективлыгы шулай ук танылган укулар белән бер үк метрик түгел. Уку дәвам итә 1% Top10, турында 3% BL21, һәм кадәр 17% MG1655, кадәр югары 47.5% RF1 бетерелгән фонда бирелгән амбар сайтында. Берсе күпме ncAA урнаштырганыңны үлчәя; бүтән аның белән күпме ялгыш аминокислота куясыз.
Практик нәтиҗәләр: процент кына атаган спецификация, штаммны һәм хәбәрче исемен әйтмичә, спецификация түгел. Эффективлык фигурасын кабул иткәнче икесен дә сора.
Непаноник булмаган аминокислоталар белән пептид китапханәләрен проектлау
Пар төзәтелгәннән соң, сез сайлаган дисплей платформасы сезнең китапханәдә бөтенләй булмаган аминокислоталар түшәмен куя. mRNA дисплей һәм RaPID ncAA толерантлыгында иң югары утыралар, чөнки бөтен цикл витрода эшли: флексизим турыдан-туры tRNA зарядлый, шуңа күрә рибосома беркайчан да хуҗа синтетаз белән көндәш булырга тиеш түгел, һәм арка сөяге үзгәртелгән калдыклар уйный. Рибосома дисплей югары, ләкин системага бәйле, толерантлык лизат һәм чыгару-фактор көйләү белән үзгәрә. Фаз дисплей эшләп кала, чөнки фейдж дисплей каноник булмаган калдыкларны амбер-кодлау ярдәмчесе фазасы аша йөртә ала, хуҗа техника калдыкларның саклануына карамастан. Чүпрә күрсәтү - дүртнең иң кыскасы.
Позиция платформа кебек мөһим. Глобаль ncAA диверсификациясенә каршы позиция буенча дизайн мәйданын бүлде: бер яки берничә билгеләнгән сайт механик зонага яки бер конвигация тоткасына туры килә һәм характерлау җиңел булып кала, киң таралган алмашлык тотрыклылыкка яки протеазга каршы тору экраннарына туры килә һәм калдыкны тикшерү авыррак..
Кайда китапханә дизайны маршрут сайлау белән очраша
Омуртка үзгәртелгән калдык тирәсендә төзелгән китапханә генетик кодны киңәйтү белән бөтенләй чыгарыла алмый, дисплей карары һәм җитештерү карары эзлеклелектә түгел, ә бергә кабул ителергә тиеш. Тотрыклылык нәтиҗәсе - бу чикләнүне кабул итәргә кирәк. Бер ингибитор сериясендә, циклик β2,3 калдыклары сарумның ярты гомерен үткән 168 сәгатьләр 37 Кеше зарарында ° C., каршы 4.6 тиешле аланин варианты өчен сәгатьләр; шул ук әсәрдә икенче скафолдка ирештеләр 48 сәгатьләр белән Кибет 4.2 сәгатьләр. N-метиляция протеиназ-К тотрыклылыгын киңәйтте 6 минутлар 110 минутлар үз анализында, һәм Д-аминокислотаны алыштыру ярты гомерне минутларда сәгатьләргә күчерде. Бу саннарның берсе дә пептидларны класс буларак гомумиләштерми: һәрберсе үз скандына һәм анализына карый. Практик нәтиҗәләр тар һәм нык. Әгәр сезнең тотрыклылык максаты арка сөяген үзгәртү таләп итә икән, маршрут сезнең өчен сайланган, һәм китапханә баштан ук шул чик эчендә эшләнергә тиеш.
Сайтка хас конфигурация стратегиясе киңәйтелгән кодлар ярдәмендә кушылган
Бу маршрут карары туры конвигациягә керә, монда ncAA тоткычы позиция контролен сатып ала, бернинди канон калдыклары туры килми, һәм ул уңышсызлыкны бетерү урынына уңышсызлык режимын үзгәртә. Билгеләнгән позициядә урнаштырылган биоортогональ тоткыч иң югары позицияле контрольне һәм пептид конвигация стратегиясенең иң түбән максатчан йөген бирә., ләкин сез идарә иткән уңышсызлык - тулы булмаган кертү яки эшкәртелмәгән башлангыч материал, ялгыш максатчан түгел. Ystистин химоселектив һәм арзан, ләкин артык алкиляция, оксидлаштыру һәм дезулфид белән чабу гадәти. Лизин кушылуы региоизомер катнашмаларын бирә. N-терминал химиясе лизинда яхшыра, ләкин эзлеклелектә кала- һәм контекстка бәйле.
|
Химия |
Сайлап алу |
Кинетика |
Бакыр |
Уңышсызлык режимы |
|---|---|---|---|---|
|
СПААК (азид + циклоктин) |
Биек |
Урта |
Кирәк түгел |
Азид тоткычы |
|
CuAAC (азид + алкин) |
Биек |
Тиз |
Кирәк |
Бакыр-арадаш реакцияләр |
|
Тетразин-ТКО |
Пептид синтезы Биек |
Иң тиз |
Кирәк түгел |
Гидролизланган тетразин |
|
Электрофилик ncAA циклизациясе |
Геометрия алдан оештырылганда югары |
Эчтәлек |
Кирәк түгел |
Көндәшлекара продукт |
Меню кыска. SPAAC бакырсыз һәм гади; CuAAC - иң нык, ләкин бакыр сизгерлеге - җаваплылык; тетразин-ТКО этикеткалары иң тиз; һәм электрофилик ncAA циклизациясе геометрия тәртипкә китерелгәндә күзәнәк һәм чиста, өчен икеләтә био-ортогональ ncAA тоткычлары (Табигать элемтәләре, 2023).
Биоортогональ конвигация һәм химик суд процессы арасында сайлау
Туган химик лигация һәм ncAA конвигациясе төрле проблемаларны чишә һәм аларны алыштырмый. NCL - максат арка сөяген үзгәртү таләп иткәндә маршрут, D-калдык, яисә бер ортогональ пар зарядланмый торган сегмент; Аның алшартлары - яшерен бәйләнеш һәм тиоэстер сегменты. ncAA конвигациясе - максат, билгеле бер бәйләнеш ноктасына мохтаҗ стандарт α арка сөяге пептиды булганда маршрут., һәм аның шарты - пар, аның субстрат масштабы тоткычны кабул итә, көндәш каноник алгарышны басучы хуҗа яки экстракт..
Практик нәтиҗәләр: ncAA карары белән бер үк вакытта конвигация карарын кабул итегез. Сайланган парның тоткычы яңадан ясалмый, алмаштыру түгел.
Аналитик контроль эзлеклелеген раслый
Кайсы юлны урнаштырсагыз да, контроль пакет синтез таләбен яклаучы спецификациягә әйләндерә, һәм ул беренче лот ясалганчы эшләнергә тиеш, тайпылыштан соң җыелмаган. Каноник булмаган калдык ташучы теләсә нинди пептид өчен, эзлеклелек аналитик контроль биш элементта тора: LC-MS / MS тарафыннан үзгәртелгән калдыкны үз эченә алган пептид плюс һәм эзлекле-локальләштерелгән фрагмент ионнарын төгәл масса раслау.; кертү-эффективлык күләме, каноник мискорпорантларга яки язылмаган продуктка каршы ncAA булган пептидның өлеше; синтетик белешмәгә яки ортогональ хирга яки тоту вакыты ысулына каршы диастеромер / эпимер контроле, чөнки стандарт LC-MS эпимерларны еш аера алмый; тискәре контроль белән ортогональ тәрҗемә системасын тикшерү һәм максатчан читтән торып уку мөмкинлеге юк; һәм, элементлы тамгалы ncAAлар өчен селен яки бор вариантлары өчен, аминокислота анализы яки ICP-MS (2026 төгәл биоконжуация һәм сайтка кертү турында күзәтү, алынды 2026-02-04).
Беренче лот алдыннан кабул итү критерийларын кую
Eachәр контроль санны йөрткәндә генә файдалы була. Калдыкка масса төгәллеген бәйләгез, кертү-эффективлык чикләрен аны үлчәүче анализның чишү көченә бәйләгез, һәм эпимер контроле белән чагыштырган белешмә стандартны атауны таләп итә. Кайда пептид ата-аналарга кандидат, фармакопиаль лимит дозадан алынган: USP <85> эндотоксин чикләрен куя = К / М., K = белән 5 ЕС / кг / сәгате булмаган маршрутлар өчен һәм K = 0.2 ЕС / кг / сәг, мг яки кеше максималь дозасы өчен күрсәтелә. I Q2(R2) тикшерү параметрларын куя, һәм MHRA ALCOA принциплары әйләнә-тирәдәге мәгълүмат бөтенлеген көтә.
Беренче лот алдыннан спецификациягә язылмаган контроль - сез тайпылыштан соң сөйләшәчәк контроль.
Масштаб: SPSS, CFPS һәм Лот-Лотка тугрылык куркынычы
Аннары бу контроль масштабта яшәргә тиеш, чөнки сезнең тикшерү партиясен җитештергән маршрут автоматик рәвештә сезнең клиник партиягезне җитештерүче маршрут түгел, һәм тугрылык куркынычы профиле аның белән үзгәрә. Каты фазалы пептид синтезы миллиграммада граммга кадәр эшли, дистәләрчә йөзләрчә граммга кадәр әзерлек һәм сәнәгать эш процессы белән, һәм килограмм масштабына кайбер эзлеклелек. Күзәнәксез системалар гадәттә литрга мг китерә: турында 96 ± 3 протеин йөртү өчен мг / Л. 40 охшаш каноник булмаган аминокислоталар, оптимальләштерелгән RF1 дефицит экстракт якынча барып җитте 1,780 ± 30 sfGFP өчен мг / Л. (күзәнәксез ncAA кертү әдәбияты, 2020). Күзәнәксез һәм каты фазалы маршрутлар арасындагы масштаблы чокыр реаль, һәм ул һәр этапта тугрылык куркынычы өстенлек итә.
Бу бүленүдән ике күп-күп куркыныч туа. Амбер кысу астында, кисү һәм эшкәртү продуктлары хуҗа торышы белән төрле, пычраклык профиле, максатчан полоса үзгәрмәсә дә, ферментация арасында эшләргә мөмкин. Код-кодны билгеләү, гомуми уңыш тигез булганда, каноник булмаган-каноник катнашу кими ала, димәк, уңышны гына чыгару тесты аны тотмый.
Практик нәтиҗәләр: Алдагы бүлектән тугрылык контроле һәр лот өчен чыгарылыш спецификациясенә керә, квалификация партиясендә генә түгел.
Эшләгәнче партнердан нәрсә сорарга
Сөйләшүгә алты сорау алыгыз. Кайсы каноник булмаган аминокислота һәм ортогональ пар? Кайсы код стратегиясе, амбарны кысу яки код-кодны яңадан билгеләү? Кайсы хуҗа яки күзәнәксез экстракт, һәм аның документлаштырылган бастыру эше нәрсә? Кайсы юл, һәм кертелгән калдыкны саклыймы?? Биш тугрылык контроле кайсы лотта эшли? Whatәм нинди кабул итү критерийлары беренче ясалганчы үткәнне билгели?
Структуралаштырылган дизайн-QC эш процессы моны хуплый. MOL үзгәртүләре ncAA сайлау өчен тигезләнергә мөмкин, синтез маршруты һәм аналитик чыгару критерийлары, дизайн этабында килешенгән контрольләр масштабта эшләнгән контрольләр. Лот дәрәҗәсендәге контроль панельне язмача сорагыз, һәм аны эшләгәнче үз спецификациягез белән чагыштырыгыз.
Зурайтылган генетик кодлар турында гомуми ялгыш карашлар
Дүрт хата программа рецензиясендә еш күрсәтелә, алар турыдан-туры атарга тиеш.
Беренчесе - киңәйтелгән генетик код яңадан язылган геномны аңлата. Практикада бу гадәттә аңлата берсе кодон һәм бер ортогональ пар, башкача үзгәртелмәгән хуҗага өстәлде.
Икенчесе - югары кертү эффективлыгы югары чисталык дигән сүз. Икесе каршы якка хәрәкәт итә ала: сафлык төшкәндә тойгы-кодны яңадан билгеләү уңышны саклый ала, чөнки яңадан билгеләнгән кодон якын танылган tRNAларда, шулай ук ортогональ парда кулланыла ала.
Өченчесе - теләсә нинди каноник булмаган аминокислотаны теләсә нинди җитештерү маршрутына урнаштырырга мөмкин. Омуртка-модификация бүленеше каты чик, өстенлек түгел: арка сөяген үзгәртә торган калдыкларны рибосомаль кертү белән урнаштырып булмый, һәм рибосоманы таләп иткән калдыкларны SPPS ясап булмый.
Дүртенче проблема - тест.
⚠️ Кисәтү: Бер тулы масса эзлеклелекне расламый. Modifiedзгәртелгән калдыкны үз эченә алган фрагмент ионнарысыз, эпимер яки якындагы позициядә бер үк спецификация уза ала.
Корал тартмасы кая бара
Бу ялгыш карашлар чистартылды, сәяхәт юнәлеше берьюлы күбрәк код куллануга юнәлтелгән. Монда беренче эш бер ортогональ парга таянган, Соңгы системалар күрсәткәнчә, үзара кулланылган ортогональ парлар бер күзәнәктә эшли ала, төрле каноник булмаган аминокислоталарның күп сайтлы кертелүен уйлау эксперименты түгел, дизайн варианты итә.
Икенче смена - архитектура. Кызык, күзәнәксез һәм экстрактка нигезләнгән системаларга күчә, алар хуҗа геномның даими үзгәрүеннән саклыйлар, конструкцияне проектлау һәм сынау арасындагы циклны кыскарта. Шул ук вакытта, дүрт-нуклеотид кодоны эше кодон мәйданын стандарттан арттыра 64, бүтән бүлмәне киңәйтү.
Намуслы саклык үзгәрми: бастыру эффективлыгы ncAA булып кала- һәм эзлеклелектә контекстка бәйле, һәм һәрбер каноник булмаган аминокислота һәр маршрутка туры килми. Шуңа күрә бәяләү базасы Синтетик пептидлар Бу кулланма, билгеле бер пар яки платформа түгел, сакларга кирәк: махсус пептид дизайны өчен киңәйтелгән генетик кодлар үзгәрүен дәвам итәчәк, ләкин сез төзегәнне раслаучы контрольләр булмаячак.
Киләсе адымнар
Пептид дизайны өчен киңәйтелгән генетик кодлар турында беренче техник сөйләшүгә билгеле бер эзлеклелек һәм тугрылык таләбе китерегез, гомуми тикшерү түгел. Түбәндәге бәяләү тикшерү исемлеге бу кулланмадагы дүрт өлештән торган партнерны хеджсыз җавап бирә алган сорауларга әйләндерә:
-
Кайсы ортогональ пар, һәм сезнең экспресс хуҗагызда нинди кысу эффективлыгы күзәтелде?
-
Кайсы код стратегиясе: амбар бастыру, код-кодны кабат билгеләү, яки дүртпочмаклы кодон?
-
Бу эзлеклелек өчен нинди маршрут: SPSS, күзәнәксез синтез, яки ферментация, һәм нигә ул?
-
Кайсы химия, һәм ул чылбырдагы калдыкларга ортогональ булып кала?
-
Биш эзлеклелектә аналитик контрольнең кайсысы лотка эшләнә, һәм кабул итү критерийлары нинди?
Бишенә дә җавап бирә алган партнер, һәм бирелгән ncAA яки маршрут эшләмәгән урында ачык итеп әйтегез, түбән цитатадан кыйммәтрәк. MOL үзгәртүләре бу төр дизайн-QC сөйләшүен хуплый 300+ функциональ төркемнәр, SPPS һәм микробиаль ферментация, мг-дан-кг масштабы, һәм HPLC / MS һәм тудыру QC класс астында 100 чистарту шартлары.
Ачыклау: MOL Changes - бу кулланманың иганәчесе. Aboveгарыдагы база һәм бәяләү критерийлары тикшерү һәм чагыштыру максатларында тәкъдим ителгән. Турында
Еш бирелә торган сораулар
Нинди киңәйтелгән генетик код?
Зурайтылган генетик код - тәрҗемә системасы, анда стандарт код урынына каноник булмаган аминокислотаны күрсәтү өчен бер яки берничә код бирелгән.. Кабатлау глобаль түгел, ә максатчан: ортогональ tRNA һәм аның аминоацил-tRNA синтетаз парлары кертелә, шуңа күрә синтетаза аның танылган инженер TRNA гына зарядка ала., хуҗаның үз тәрҗемә техникасын кагылмыйча калдыру. Стандарт 64-кодлы рамкада, бу протеомның калган өлешен яңадан язмыйча, сайланган урында яңа химик функция урнаштыру өчен урын калдыра.
Күпме каноник булмаган аминокислоталар генетик кодланырга мөмкин?
А. 2025 күзәтү сметасы генетик кодланган каноник булмаган аминокислоталар санын арттыра 300, бу сан теләсә нинди система китерә алганны түгел, ә кырның кумулятив корал тартмасын тасвирлый. Практик сан күпкә кечерәк, чөнки һәр ncAA туры килгән ортогональ пар һәм реинимациягә түзә торган хуҗа кирәк. Баш бит номерын каядыр күрсәтелгәннәргә өстән бәйләнгән итеп карагыз, сез заказ бирә алган меню буларак түгел.
Амбарны бастыру белән сизү-кодонны билгеләү арасында нинди аерма бар?
Эмберне бастыру UAG тукталыш кодоны аша укый һәм чыгару факторы белән турыдан-туры көндәшлек итә 1, шуңа күрә аның характеристик уңышсызлык режимы киселгән продукт. Sense-кодонны яңадан билгеләү гадәттә стандарт калдыкны кодлаган кодны алыштыра, шуңа күрә аның уңышсызлык режимы катнаш халык: чисталык төшкәндә уңыш югары булырга мөмкин, чөнки кыргый типтагы калдык әле ncAA белән берләштерелгән. Бу аерма сезгә нинди контроль кирәклеген билгели, кисү тулы массада күрсәтелә, ә трансплантация юк.
Кайсы каноник булмаган аминокислоталар генетик кодны киңәйтү белән түгел, SPPS ярдәмендә ясалырга мөмкин?
β-аминокислоталар, а,α-бүленгән калдыклар, депсипептид бәйләнешләре һәм күп N-метилат калдыклары гадәттә каты фазалы синтез яки витро химия ярдәмендә генә мөмкин., чөнки рибосома аларны субстратлар итеп кабул итмәячәк. Генетик кодланган класс таррак: side-аминокислота арка сөягенә корылган чылбыр модификациясе. Селеноцистеин - табигый очрак, инженер пар аша түгел, ә махсус техника аша кодланган. Пептид җитештерү
Каноник булмаган аминокислотаның билгеләнгән урынга кертелгәнен ничек раслыйсыз??
Тастыру төгәл масса плюс эзлеклелеген-локальләштерелгән фрагмент ионнарын таләп итә, гадәттә LC-MS / MS тарафыннан, кушылу эффективлыгы һәм синтетик сылтамага каршы эпимер контроле белән бергә. Тулы масса гына җитми, чөнки ул максатлы сайтны позицияле изомердан яки охшаш массаны бетерү вариантыннан аера алмый.. Фрагмент ионнары калдыкны локальләштерә; масса сезгә үзгәргәнне генә әйтә.
Каноник булмаган аминокислоталар бердән артык сайтка кертелергә мөмкинме?
Әйе, ләкин күп сайтлы кушылу бер сайтлы эш процессын кабатлау урынына аналитик йөкне арттыра. Additionalәрбер өстәмә позиция үзен бастыру яки яңадан билгеләү вакыйгасын өсти, һәм ncAA алып барган продуктның өлеше һәрбер тупланган мәйданда позицияләр тупланган саен төшә, шуңа күрә халык өлешчә үзгәртелгән төрләрнең бүленешенә әверелә. Консерв бу таратуны чишәме, юкмы икәнен алдан хәл итәргә кирәк, чөнки бер сайт өчен расланган ысул дүрттә автоматик рәвештә отчет бирми.
Генетик кодны киңәйтү клиник этаптагы пептид җитештерү өчен масштаблымы?
Масштаблылыгы кайсы маршрутны сайлавыгызга бәйле, һәм ике маршрут төрлечә уңышсыз. Күзәнәксез протеин синтезы бу мәкаләдә алдан хәбәр ителгән диапазонда уңышны күрсәтте, ләкин бу саннар билгеләнгән эксперименталь системалардан килә һәм GMP процессына автоматик рәвештә күчерелми. Каты фазалы синтез таразалары кыска эзлеклелектә алданрак фаразлана, ләкин SPPS-ның калдыкларына барып җитә алмый. Клиник этап эше өчен, практик сорау - химия масштабы түгел, ә сезнең аналитик пакетыгыз шул масштабта лот-лот эзлеклелеген раслый аламы?.
Йомгаклау
Сез сайлаган кодон стратегиясе сез мирас итеп алган уңышсызлык режимын билгели, шуңа күрә эзлеклелекне раслаучы контроль пакет беренче лотка кадәр күрсәтелергә тиеш, аннан соң түгел. Бу кулланма аша эшләнгән җеп: Гадәттәге пептид дизайны өчен киңәйтелгән генетик кодлар синтез проблемасы булганчы бәяләү проблемасы.
Партнер язмача яклый алган дүрт карар - каноник булмаган аминокислота һәм сезнең эзлеклелектә аны бастыру тәртибе., китапханә дизайны һәм маршрутны ничек кысуы, коньигуация химиясе һәм ул нәрсә калдыра, һәм аларның методлары һәм чикләре белән аналитик кабул итү критерийлары. Аларның һәрберсе икенчесен тарый.
Сәяхәт юнәлеше бергә кулланылган үзара ортогональ парларга таба, хуҗасыз геномны кагылмаган күзәнәксез һәм экстракт нигезендәге системалар, һәм дүрт-нуклеотид кодлары, булган код мәйданын стандарттан узып китәләр 64. Намуслы саклык - бастыру эффективлыгы ncAA һәм аның тирәсендәге эзлеклелектә тора, һәм һәр ncAA һәр маршрутка туры килми.
Беренче техник сөйләшү өчен нигез булып Киләсе адымнарда тикшерү исемлеген кулланыгыз.
Автор турында: [Автор исеме], [таныклык], пептид дизайны һәм MOL үзгәртүләре өчен аналитик контроль стратегиясе турында яза.
Ачыклау: MOL үзгәртүләре пептид дизайны белән тәэмин итә, синтез һәм аналитик хезмәтләр, бу кулланмада каралган мөмкинлекләрне кертеп.