カスタムペプチド設計のための拡張された遺伝コードが実際に何を変えるのか
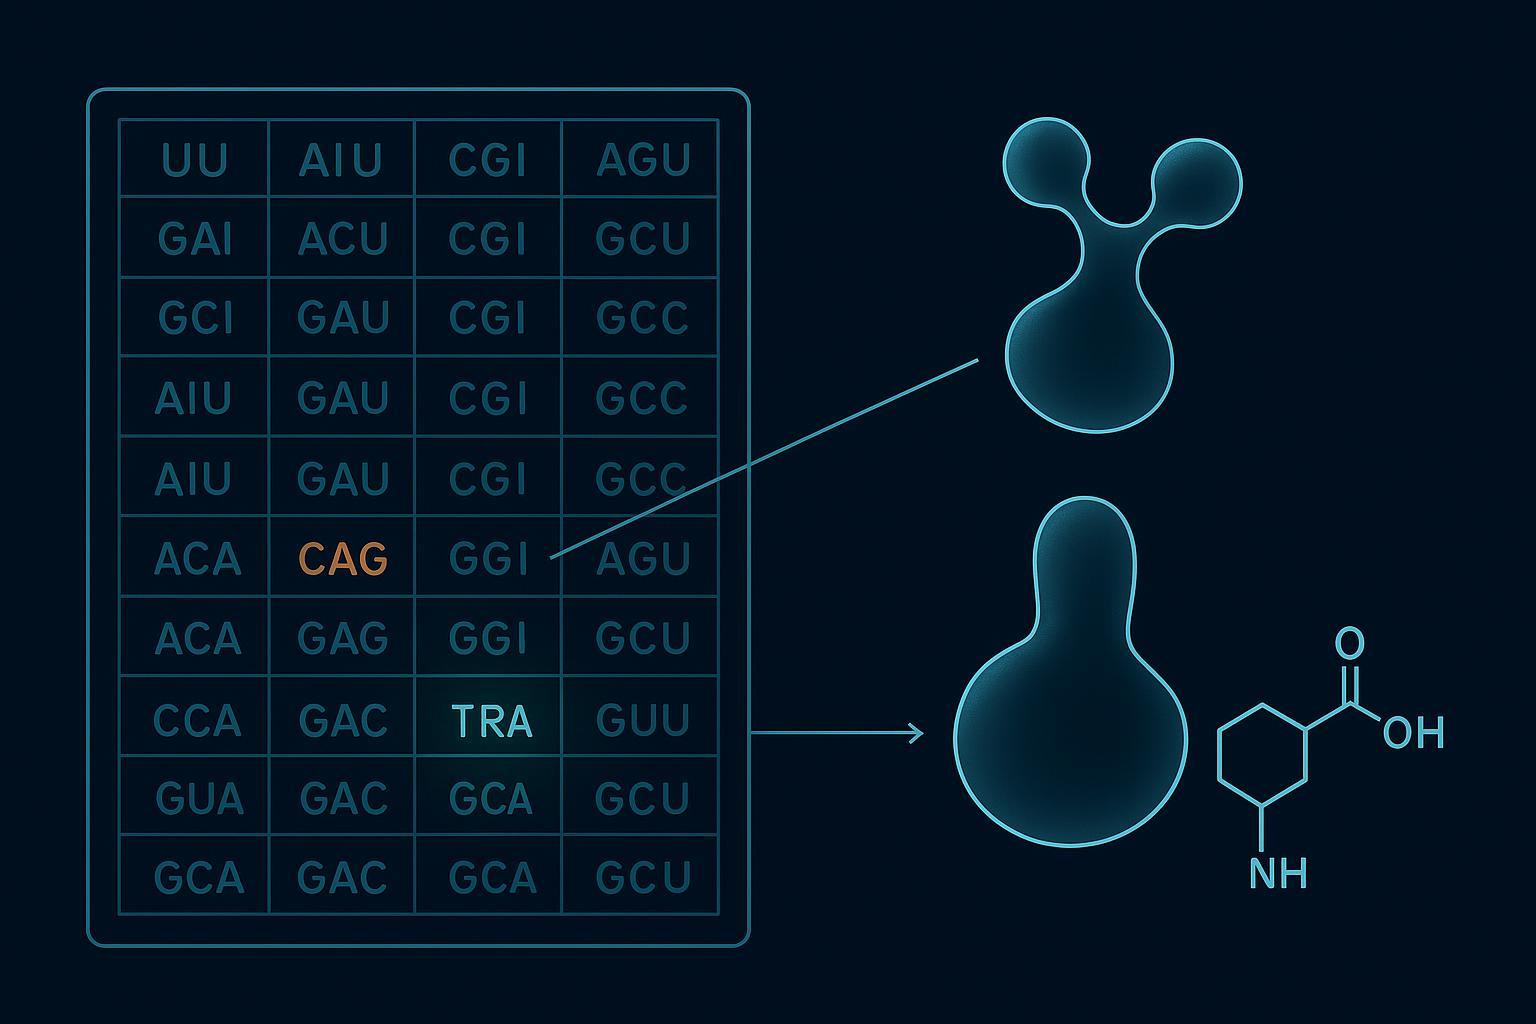
標準的な遺伝暗号は次のように割り当てます。 64 コドン: 61 センスコドンと 3 停止コドン, そして、各センスコドンは次のいずれかを指定します。 20 正規アミノ酸 (Addgene Genetic Code Expansion コレクション, 最後にレビューした 19 11月 2025). 拡張された遺伝コードがその割り当てを書き換える. コドン再割り当てにより、1 つ以上のコドンが非標準アミノ酸にリダイレクトされます。, 直交tRNAによって部位特異的にインストールされる / アミノアシル-tRNAシンセターゼのペアで、宿主内で独自に操作されたtRNAのみをチャージし、他には何もチャージしない.
その定義は、それがロックする故障モードよりも重要です. アンバー (UAG) サプレッションは終止コドンを介して読み取ります, したがって、リリースファクターと直接競合します 1. 抑圧がそのレースに負けたとき, その結果、途中で終了し、製品が切り捨てられます。, 再コードされたホストまたは RF1 ノックアウトホストは、損失を軽減するように特別に設計されています。 (ネイチャーバイオテクノロジー, 11 9月 2024). センスコドンの再割り当ては別の方法で失敗します: 再割り当てされたコドンは依然として元の意味と競合します, そのため、製品は短い鎖ではなく、正規の誤組み込み物質を含む混合物として到着します。.
重要なポイント: アンバー抑制が切り捨てにより失敗する; センスコドンの再割り当ては混合により失敗する. したがって、収量と純度は独立して変化します, そして、あなたが継承する失敗モードは、選択したコドン戦略によって設定されます。, サプライヤーの熟練度によるものではない.
[図: UAG と 1 センス コドンが強調表示されたラベル付き 64 コドン表, それぞれの矢印は直交する tRNA/シンセターゼのペアを示しています]
ツールボックスがレビューよりも早く動いた理由
ほとんどのチームが到達する標準物質は化学よりも遅れています. あ 2025 レビューでカウントオーバー 300 非標準アミノ酸が遺伝暗号の拡張に使用されることに成功 (ネイチャーコミュニケーションズ, 29 9月 2025), 一方、このトピックに関する検索結果で最も引用されたレビューの日付は 2014. プラスミドレベルのリソースは急速に進歩しています: Addgene の拡大する GCE コレクションのリストは大まかに 150 シンテターゼプラスミドと 26 細菌株, 最後にレビューされたコンテンツを含む 19 11月 2025 (アドジーン). あなたの選択候補リストが 10 年前のレビューに基づいて作成された場合, 存在するツールボックスよりも小さいツールボックスについて説明しています。.
拡張された遺伝暗号が非標準的なアミノ酸の選択をどのように再構成するか
同じコドン戦略は、非標準的なアミノ酸選択の条件も設定します, どこでペアを選択するか, 残留物の選択ではない, 拘束制約です. どの tRNA 合成酵素ペアを使用できるかは 4 つの要素によって決まります: 基板フィット, コドン戦略, 宿主生物, 複数の ncAA を一度にエンコードする必要があるかどうか. この順序で作業を進めると、残基カタログ内の見かけ上の自由度のほとんどが失われます。.
2 つのプラットフォームが独占. の メタノカルドコッカス・ジャンナスキー TyrRS/tRNA^Tyr ペアはチロシン様および芳香族側鎖を受け入れます. ピロリシル tRNA 合成酵素の足場とその進化した変異体は、リジンのような嵩高い残基を受け取ります, より多くの構造の多様性を許容します. RF1ノックアウトは抑制効率を高める宿主戦略であることに注意してください, 3番目のペアではありません.
|
サービス 特徴 |
M. ジャンナスキー TyrRS/tRNA^Tyr |
PylRS/tRNA^Pyl バリアント |
|---|---|---|
|
基板の範囲 |
チロシン様, 芳香族 |
リジン様, かさばる, 構造的に多様な |
|
コドン戦略 |
アンバー (UAG) 抑制 |
アンバー, 黄土, またはセンスコドンの再割り当て |
|
ホストの互換性 |
E. 大腸菌, 酵母, 哺乳類細胞 |
E. 大腸菌, 哺乳類細胞, 無細胞システム |
|
多重化適合性 |
限定; 基板の重なり許容差 |
直交ペア拡張に適しています |
多重化は分野が動いているところです. あ 2024 コドン圧縮戦略を特定 12 既知の GCE リソース セットと互換性のある相互に直交する tRNA シンセターゼ ペア, これは、デザインが 1 つのチェーンに 2 つ以上の異なる ncAA を必要とする場合に重要です。.
次に、リボソームがインストールできるものと SPPS のみがインストールできるものの境界があります。. α-アミノ酸骨格の側鎖修飾は GCE 互換です. β-アミノ酸, ある,α-二置換残基, デプシペプチド中, 多くの N-メチル化残基はそうではありません。; それらは SPPS のみまたは in vitro のみです. 対象の残留物がそのリストに載っている場合, ペアを選択しないとそれは救われません.
正直なところ、読み取り抑制効率
抑制効率は範囲です, 範囲は株とレポーターが付加されたもののみを意味します. 以前のシステムでは、単一のアンバー コドンに対して約 10 ~ 20% が配信されていました。. 最適化され進化したシステムは状況に応じて 50 ~ 117% に達します, RF1 欠失 C321 株では 76 ~ 104%. これらの図はさまざまな構造を説明しています, したがって、最大の数字を選択して登れるはしごではありません.
取り込み効率も、ほぼ同族のリードスルーと同じ指標ではありません。. リードスルーは約 1% トップ10入り, について 3% BL21で, そして最大まで 17% MG1655で, までの高さに達する 47.5% RF1 で削除されたバックグラウンドの特定のアンバー サイトで. 1 つはインストールされている ncAA の量を測定します; もう1つは、一緒にインストールされた間違ったアミノ酸の量を測定します.
実際的な結果: パーセンテージのみを指定する仕様, 菌株とレポーターの名前は明かさない, 仕様ではありません. 効率の数値を受け入れる前に、両方を尋ねてください.
非標準アミノ酸を使用したペプチドライブラリの設計
ペアが固定されたら, 選択したディスプレイ プラットフォームによって、ライブラリーに含めることができる非標準アミノ酸の上限が決まります。. 全サイクルがインビトロで実行されるため、mRNA ディスプレイと RaPID は ncAA 耐性で最も高く評価されます。: フレキシザイムはtRNAを直接荷電します, そのため、リボソームは宿主合成酵素と競合する必要がありません。, バックボーン修飾された残基はそのまま残ります. リボソーム表示は上位にランクされますが、システムに依存します, 耐性はライセートとリリースファクターの設定によって変化するため. ファージディスプレイは引き続き動作可能, ファージディスプレイは、アンバーコード化ヘルパーファージを介して非標準残基を運ぶことができるため、, どの残基が生き残るかは宿主機構によって制限されますが、. 酵母の表示は 4 つの中で最も制限されています。.
プラットフォームと同じくらいポジションも重要. ポジションごとの ncAA の多様化とグローバルな ncAA の多様化が設計空間を分割する: 単一または少数の定義された部位は機構プローブまたは 1 つの結合ハンドルに適しており、特徴付けが容易です, 一方、広範な置換は安定性またはプロテアーゼ耐性のスクリーニングに適しており、残基ごとに検証するのははるかに困難です。.
ライブラリ設計がルート選択と出会う場所
バックボーンが修飾された残基を中心に構築されたライブラリーは、遺伝暗号の拡張によってはまったく作成できません。, そのため、表示の決定と生産の決定は順番に行うのではなく、一緒に行う必要があります。. 安定性の見返りがあるからこそ、その制約を受け入れる価値があるのです. 1つの阻害剤シリーズで, 環状β2,3残基により血清半減期が延長される 168 の時間 37 ヒト血清中の℃, に対して 4.6 対応するアラニンバリアントの場合は時間; 同じ作業の2番目の足場に到達しました 48 時間対 店 4.2 時間. N-メチル化によりプロテイナーゼ K の安定性が向上 6 数分からおよそ 110 独自のアッセイで数分, D-アミノ酸置換により、半減期が数分から数時間に短縮されました。. これらの図はいずれもペプチドをクラスとして一般化したものではありません: それぞれが独自の足場とアッセイに属します. 実際の結果は狭くて堅実である. 安定性のターゲットにバックボーンの変更が必要な場合, ルートはあなたのために選ばれます, そしてライブラリは最初からその制限内で設計する必要があります.
拡張されたコードによって可能になるサイト固有の活用戦略
そのルート決定はそのまま活用に反映されます, ここで、ncAA ハンドルは、正規残基が一致できない位置制御を購入します。, そしてそれは、障害をなくすのではなく、障害モードを変更します。. 定義された位置に取り付けられた生体直交ハンドルにより、あらゆる部位特異的ペプチド結合戦略において最高の位置制御と最低のオフターゲット負荷が得られます。, しかし、その後対処できる失敗は、不完全な取り込みまたは未反応の出発物質です。, ターゲットを間違えないこと. システインは化学選択的で安価です, まだ過剰アルキル化, 酸化とジスルフィドのスクランブルは日常的です. リジンカップリングにより位置異性体混合物が得られる. N末端化学はリジンで改善されるが、配列は維持される- そしてコンテキストに依存する.
|
化学 |
選択性 |
動力学 |
銅 |
それが生み出す故障モード |
|---|---|---|---|---|
|
SPAAC (アジド + シクロオクチン) |
高い |
適度 |
不要 |
未反応アジドハンドル |
|
CuAAC (アジド + アルキン) |
高い |
速い |
必須 |
銅を介した副反応 |
|
テトラジン-TCO |
ペプチド合成 高い |
最速 |
不要 |
加水分解テトラジン |
|
求電子的ncAA環化 |
ジオメトリが事前に構成されている場合に高 |
分子内 |
不要 |
競合する分子間生成物 |
メニューが短い. SPAAC は銅を使用しておらず、運用がシンプルです; CuAAC は最も堅牢ですが、銅線過敏症が問題となります; テトラジン-TCO ラベルを最速でラベル化; 求電子的 ncAA 環化は分子内で行われ、幾何学構造が事前に組織化されている場合にはクリーンです。, 報告されているように 二重生体直交 ncAA ハンドル (ネイチャーコミュニケーションズ, 2023).
生体直交結合とネイティブケミカルライゲーションの選択
ネイティブケミカルライゲーションとncAAコンジュゲーションは異なる問題を解決するものであり、代替品ではありません. NCL は、ターゲットでバックボーンの変更が必要な場合のルートです, D残基, または直交ペアが充電しないセグメント; その前提条件は、実行可能なライゲーションジャンクションとチオエステルセグメントです。. ncAA コンジュゲーションは、ターゲットが 1 つの定義された結合点を必要とする標準的なα-バックボーン ペプチドである場合のルートです。, その前提条件は、サブストレート スコープがハンドルと、競合する正規リードスルーを抑制するホストまたは抽出を受け入れるペアです。.
実際的な結果: ncAA の決定と同時に活用の決定を行う. 選択したペアが充電しないハンドルは再設計です, 代わりではない.
シーケンスの忠実性を証明する分析コントロール
どの活用ルートに落ち着いても, 制御パッケージは、合成の主張を防御可能な仕様に変換するものです, 最初のロットが製造される前に設計する必要があります, ずれて組み立てられていない. 非標準残基を有するペプチドの場合, 配列忠実度の分析制御は 5 つの要素に依存します: LC-MS/MS による、インタクトなペプチドと修飾残基にわたる配列位置特定フラグメントイオンの正確な質量確認; 取り込み効率の定量, ncAA を有するペプチドの割合と標準的な誤組み込み物質または未標識の産物を意味します。; 合成参照または直交キラルまたは保持時間法に対するジアステレオマー/エピマー対照, 標準的な LC-MS ではエピマーを区別できないことが多いため; ネガティブコントロールを使用した直交翻訳システムの検証と検出可能なオフターゲットリードスルーなし; そして, セレンやホウ素のバリアントなどの元素タグ付き ncAA の場合, アミノ酸分析またはICP-MS (2026 精密なバイオコンジュゲーションと部位特異的組み込みに関するレビュー, 取得した 2026-02-04).
最初のロットの前に合格基準を設定する
各コントロールは、番号が付いている場合にのみ役に立ちます。. 質量精度を確認中の残留物に結び付ける, 取り込み効率の閾値をそれを測定するアッセイの分解能に結び付ける, そして、エピマーコントロールに、比較する参照標準の名前を付けるよう要求します。. ペプチドが非経口投与の候補である場合, 薬局方の限界は用量に由来する: 米国薬局 <85> エンドトキシン限界 = K/M を設定します, K = の場合 5 非髄腔内ルートの EU/kg/時間、および K = 0.2 EU/kg/時間くも膜下腔内, ヒトへの最大投与量の mg または mL あたりで表されます。. I Q2(R2) 検証パラメータを設定します, MHRA ALCOA の原則は、その周囲のデータ整合性への期待を枠組み化しています。.
最初のロットの前に仕様書に記載されていない制御は、逸脱後に交渉することになる制御です。.
スケールアップ: SPSS, CFPS とロット間の忠実度のリスク
これらのコントロールはスケールアップ後も存続する必要があります, なぜなら、研究バッチを生成したルートが自動的に臨床バッチを生成するルートになるわけではないからです。, それに伴い忠実度のリスクプロファイルも変化します. 固相ペプチド合成はバッチあたりミリグラムからグラムで動作します, 数十グラムから数百グラムに達する調製および工業用ワークフロー, いくつかのシーケンスをキログラムスケールに変換. 無細胞システムは通常、1 リットルあたり mg を供給します: について 96 ± 3 タンパク質担持量の mg/L 40 同一の非標準アミノ酸, 一方、最適化されたRF1欠損抽出物はおおよその量に達しました。 1,780 ± 30 sfGFP の mg/L (無細胞ncAA組み込み文献, 2020). 無細胞ルートと固相ルートの間のスケールの隔たりは現実的です, そしてそれによって、各段階でどの忠実度リスクが支配的になるかが決まります.
この分割により、ロット間の 2 つのリスクが発生します. アンバー抑制中, トランケーションとリードスルーの製品はホストの状態によって異なります, そのため、ターゲットバンドが変化していないように見えても、不純物プロファイルは発酵実行間で変化する可能性があります。. センスコドン再割り当て中, 総収量は横ばいのままですが、非正規対正規の比率は変動する可能性があります, つまり、yield-only リリーステストでは検出されないということです。.
実際的な結果: 前のセクションの忠実度コントロールは、すべてのロットのリリース仕様に含まれます。, 資格バッチだけでなく.
コミットする前にパートナーに尋ねるべきこと
6 つの質問を会話に取り入れてください. 非標準アミノ酸と直交ペアはどれですか? どのコドン戦略か, アンバー抑制またはセンスコドンの再割り当て? どの宿主または無細胞抽出物か, 文書化された抑制パフォーマンスはどのようなものですか? どの活用ルートか, 取り込まれた残留物は保存されますか?? 5 つの忠実度コントロールのうち、すべてのロットで実行されるのはどれですか? そして、最初のロットが製造される前に、どのような合格基準が合格ロットを定義するのか?
構造化された設計から QC までのワークフローがこれをサポートします。. MOL の変更を使用して ncAA の選択を調整できる, 合成ルートと分析リリース基準を一度に受け渡し, したがって、設計段階で合意された制御は、大規模に実行される制御となります。. ロットレベルのコントロールパネルを書面で要求する, コミットする前に自分の仕様と比較してください.
拡張遺伝暗号に関するよくある誤解
プログラムのレビューでは 4 つのエラーが頻繁に現れるため、直接名前を付ける価値があります。.
1つ目は、拡張された遺伝暗号は書き換えられたゲノムを意味するということです。. 実際には通常、それは意味します 1 つの再割り当てされたコドンと 1 つの直交ペア, それ以外は変更されないホストに追加される.
2つ目は、取り込み効率が高いほど純度が高いことを意味します。. 二人は逆方向に動くこともできる: センスコドンの再割り当ては純度が低下しても収量を維持できる, 再割り当てされたコドンは、直交ペアだけでなく、ほぼ同族の tRNA にも利用できるようになるためです。.
3 つ目は、任意の非標準アミノ酸を任意の生産ルートに組み込むことができることです。. バックボーン変更の分割は次のとおりです。 厳しい境界線, 好みではありません: 骨格を変化させる残基はリボソームへの組み込みによって導入することができない, そしてリボソームを必要とする残基はSPPSでは作ることができません。.
4 番目はリリーステストに関するものです.
⚠️警告: 単一の完全な塊では配列が確認されない. 修飾残基にまたがるフラグメントイオンなし, エピマーまたは近くの位置に誤って取り込まれたものは、同じ仕様に合格する可能性があります.
ツールボックスが向かう先
それらの誤解が解けたところで, 進行方向は、より多くのコードを一度に使用する方向です. 初期の研究では単一の直交ペアに依存していました, 最近のシステムは、相互に直交するペアを一緒に使用すると同じセル内で動作できることを示しました。, これが、さまざまな非標準アミノ酸のマルチサイト組み込みを思考実験ではなく設計オプションにする理由です。.
2 番目のシフトは建築上のものです. 宿主ゲノムの永久的な改変を回避する無細胞および抽出ベースのシステムに関心が移っている, これにより、構造の設計とテストの間のサイクルが短縮されます。. それと並行して, 4 ヌクレオチドのコドン作業により、利用可能なコドン スペースが標準を超えて拡張されます 64, 配置転換に利用できる部屋を広げる.
正直な警告は変わっていない: 抑制効率はncAAのまま- シーケンスコンテキスト依存, すべての非標準アミノ酸がすべてのルートと互換性があるわけではありません. だからこそ、 合成ペプチド このガイド, 特定のペアやプラットフォームではなく, 残しておく価値のある部分です: カスタムペプチド設計のための拡張された遺伝コードは変化し続ける, しかし、あなたが構築したものを証明するコントロールはそうではありません.
次のステップ
カスタムペプチド設計のための拡張遺伝コードに関する最初の技術的な会話に、特定の配列と特定の忠実度要件を持ち込む, 一般的な問い合わせではありません. 以下の評価チェックリストは、このガイドの 4 部構成のフレームワークを、パートナーがヘッジなしで回答できる質問に変換します。:
-
どの直交ペア, 発現宿主においてどのような抑制効率が観察されているか?
-
どのコドン戦略か: アンバー抑制, センスコドンの再割り当て, または四重項コドン?
-
このシーケンスのルート: SPSS, 無細胞合成, または発酵, そしてなぜそれが?
-
どの共役化学, それはすでに鎖にある残基と直交したままですか??
-
5 つの配列忠実度分析コントロールのうち、ロットごとに実行されるのはどれですか, そして受け入れ基準は何ですか?
5つすべてに答えられるパートナー, 特定の ncAA またはルートが機能しない場所を明確に述べます, 低い見積もりよりも価値がある. MOL Changes は、この種の設計から QC までの対話をサポートします。 300+ 官能基, SPPSと微生物発酵, mgからkgへのスケール, クラスの下での HPLC/MS および無菌 QC 100 クリーンルームの状態.
開示: MOL Changes はこのガイドのスポンサーです. 上記の枠組みと評価基準は、調査と比較を目的として提示されています。. について
よくある質問
拡張された遺伝暗号とは何ですか?
拡張遺伝暗号は、標準アミノ酸の代わりに非標準アミノ酸を指定するために 1 つ以上のコドンが再割り当てされた翻訳システムです。. 再割り当てはグローバルではなくターゲットを絞って行われます: 直交 tRNA とそのアミノアシル tRNA シンテターゼのペアが導入され、シンセターゼは同族の操作された tRNA のみをチャージします。, ホスト自身の翻訳機械はそのままにしておく. 標準的な 64 コドンフレーム内, プロテオームの残りの部分を書き換えることなく、選択した位置に新しい化学機能をインストールする余地を残します。.
遺伝的にコード化できる非標準アミノ酸の数?
あ 2025 レビューの推定では、遺伝的にコード化可能な非標準アミノ酸の数が超過していると推定されています 300, ただし、この図は、単一のシステムが提供できるものではなく、その分野の累積的なツールボックスを示しています。. 実際の数ははるかに少ないです, 各 ncAA には互換性のある直交ペアと再割り当てを許容するホストが必要であるためです。. 見出しの番号を、どこかで実証されている内容の上限として扱う, 注文できるメニューではありません.
アンバーサプレッションとセンスコドン再割り当ての違いは何ですか?
アンバーサプレッションは、UAG 停止コドンを読み取り、放出因子と直接競合します。 1, したがって、その特徴的な故障モードは切り捨てられた製品です. センスコドンの再割り当てにより、通常は標準残基をコードするコドンが交換されます, したがって、その障害モードは混合集団です: 純度が低下しても収量は高く維持できる, 野生型残基が依然として ncAA と一緒に組み込まれているためです。. その違いにより、必要なコントロールが決まります, 切り捨てはそのままの状態で表示されますが、誤訳は表示されないためです。.
遺伝コード拡張ではなくSPPSによって作成できる非標準アミノ酸はどれですか?
β-アミノ酸, ある,α-二置換残基, デプシペプチド結合と多くの N-メチル化残基は、通常、固相合成または in vitro 化学によってのみアクセスできます。, リボソームがそれらを基質として受け入れないため、. 遺伝的にコード化可能なクラスはより狭い: α-アミノ酸骨格に構築された側鎖修飾. セレノシステインは自然な例外です, 設計されたペアではなく、独自の専用機械を通じてエンコードされる. ペプチドの生産
非標準アミノ酸が目的の部位に組み込まれたことをどのように確認しますか?
確認には正確な質量と修飾残基にわたる配列局在化フラグメントイオンが必要です, 通常はLC-MS/MSによる, 取り込み効率の定量と、合成基準に対するエピマー対照を併用. インタクトな質量だけでは、目的の部位を位置異性体や同様の質量の欠失変異体と区別できないため不十分です。. フラグメントイオンは残基を局在化させるものです; 大衆は何かが変わったことを伝えるだけだ.
非標準アミノ酸を複数の部位に組み込むことはできますか?
はい, しかし、複数サイトを組み込むと、単一サイトのワークフローを単純に繰り返すよりも分析の負担が倍増します。. 追加の位置ごとに、独自の抑制イベントまたは再割り当てイベントが追加されます。, そして、すべての意図された部位でncAAを保持する製品の割合は、位置が蓄積するにつれて低下します, そのため、個体群は部分的に改変された種の分布になります。. アッセイがその分布を解決するかどうかを事前に決定する必要があります, 1 つのサイトで検証された方法では、4 つのサイトでは自動的にレポートされないためです。.
遺伝コード拡張は臨床段階のペプチド生産に拡張可能ですか?
スケーラビリティは選択したルートによって決まります, 2 つのルートは異なる方法で失敗します. 無細胞タンパク質合成では、この記事の前半で報告した範囲の収率が実証されています。, but those figures come from defined experimental systems and do not transfer automatically to a GMP process. Solid-phase synthesis scales more predictably for shorter sequences but cannot reach the residues that are SPPS-only. For clinical-stage work, the practical question is not whether the chemistry scales but whether your analytical package can prove lot-to-lot sequence fidelity at that scale.
結論
The codon strategy you choose determines the failure mode you inherit, so the control package that proves sequence fidelity has to be specified before the first lot, それ以降ではない. That is the thread running through this guide: expanded genetic codes for custom peptide design are an evaluation problem before they are a synthesis problem.
パートナーが書面で弁護できなければならない 4 つの決定は、非標準アミノ酸と配列コンテキストにおけるその抑制挙動です。, ライブラリの設計とそれがルートをどのように制約するか, 共役化学とそれがそのまま残すもの, 分析的許容基準とその方法と限界. それぞれが次を狭めます.
進行方向は、一緒に使用される相互に直交するペアに向かう方向です。, 宿主ゲノムをそのまま残す無細胞および抽出ベースのシステム, 標準を超えて利用可能なコドンスペースを拡張する 4 ヌクレオチドのコドン 64. 正直な注意点は、抑制効率は依然として ncAA とその周囲の配列に依存するということです。, すべての ncAA がすべてのルートと互換性があるわけではありません.
最初の技術的な会話の基礎として「次のステップ」のチェックリストを使用します。.
著者について: [著者名], [資格], MOL Changes のペプチド設計と分析制御戦略について執筆.
開示: MOL Changes はペプチド設計を提供します, 合成および分析サービス, このガイドで説明されている機能を含む.