Điều gì đã mở rộng mã di truyền cho thiết kế peptide tùy chỉnh thực sự thay đổi
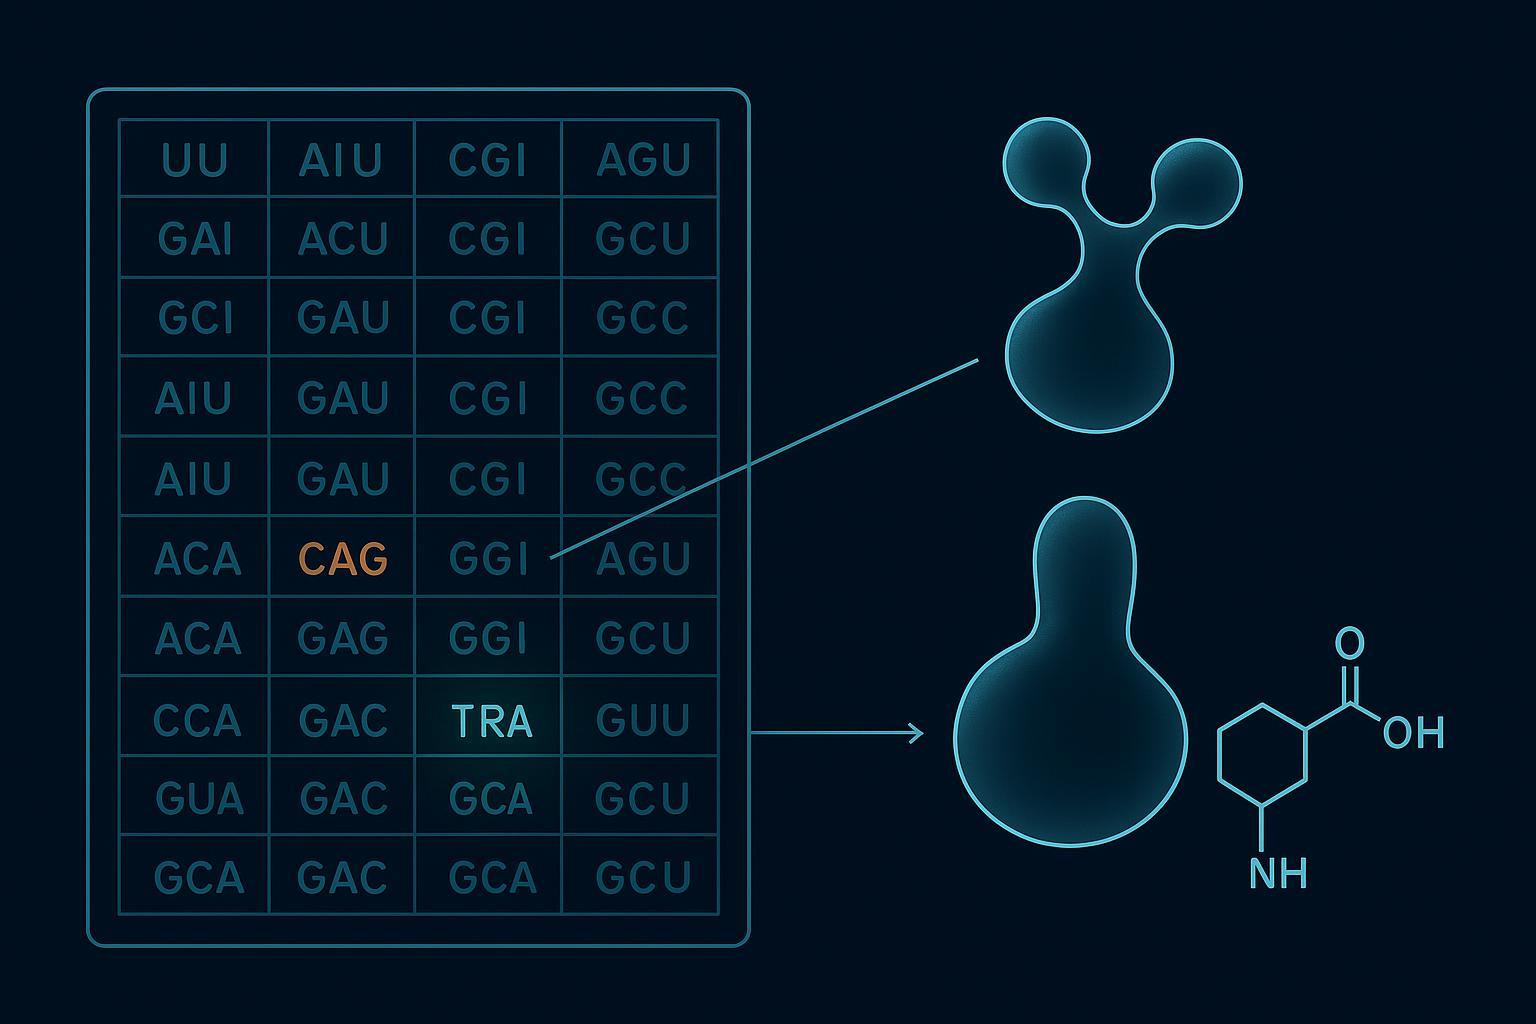
Mã di truyền chuẩn được gán 64 codon: 61 codon cảm giác và 3 dừng codon, và mỗi codon giác quan xác định một trong các 20 axit amin chính tắc (Bộ sưu tập mở rộng mã di truyền Addgene, xem xét lần cuối 19 Tháng mười một 2025). Một mã di truyền mở rộng viết lại sự phân công đó. Một hoặc nhiều codon được chuyển hướng đến một axit amin không canonical thông qua việc tái phân bổ codon, được cài đặt theo trang web cụ thể bởi một tRNA trực giao / Cặp aminoacyl-tRNA synthetase chỉ tích điện cho tRNA được thiết kế riêng của nó và không tích điện cho vật chủ nào khác.
Định nghĩa đó ít quan trọng hơn chế độ lỗi mà nó khóa vào. Hổ phách (UAG) sự ức chế đọc qua một codon dừng, nên nó cạnh tranh trực tiếp với hệ số phát hành 1. Khi sự đàn áp thua cuộc đua đó, kết quả là sản phẩm bị chấm dứt sớm và bị cắt bớt, sự mất mát được mã hóa lại hoặc các máy chủ loại bỏ RF1 được thiết kế đặc biệt để giảm (Công nghệ sinh học tự nhiên, 11 Tháng 9 2024). Việc gán lại Sense-codon thất bại theo cách khác: codon được gán lại vẫn cạnh tranh với ý nghĩa ban đầu của nó, vì vậy sản phẩm xuất hiện dưới dạng hỗn hợp chứa các chất không hợp nhất chính tắc chứ không phải là một chuỗi ngắn.
Chìa khóa mang đi: Việc ngăn chặn hổ phách không thành công do cắt ngắn; việc gán lại sense-codon không thành công do hỗn hợp. Năng suất và độ tinh khiết do đó di chuyển độc lập, và chế độ thất bại mà bạn kế thừa được đặt theo chiến lược codon bạn chọn, không phải bởi nhà cung cấp có tay nghề như thế nào.
[SƠ ĐỒ: bảng 64-codon được gắn nhãn với UAG và một codon cảm giác được tô sáng, mỗi mũi tên hướng tới cặp tRNA/synthetase trực giao của nó]
Tại sao Hộp công cụ lại di chuyển nhanh hơn các bài đánh giá
Tài liệu tham khảo mà hầu hết các đội tiếp cận đều có độ trễ hóa học. MỘT 2025 đánh giá đưa số lượng lên trên 300 axit amin không canonical được sử dụng thành công trong việc mở rộng mã di truyền (Truyền thông thiên nhiên, 29 Tháng 9 2025), trong khi bài đánh giá được trích dẫn nhiều nhất trong kết quả tìm kiếm về chủ đề này là 2014. Tài nguyên cấp độ Plasmid đã giữ tốc độ gần hơn: Danh sách bộ sưu tập GCE mở rộng của Addgene đại khái 150 plasmid tổng hợp và 26 chủng vi khuẩn, với nội dung được xem xét lần cuối vào 19 Tháng mười một 2025 (gen bổ sung). Nếu danh sách rút gọn lựa chọn của bạn được xây dựng từ đánh giá cách đây một thập kỷ, nó mô tả một hộp công cụ nhỏ hơn hộp công cụ hiện có.
Làm thế nào các mã di truyền mở rộng định hình lại sự lựa chọn axit amin phi canononical
Chiến lược codon tương tự đó cũng đặt ra các điều kiện lựa chọn axit amin không chuẩn hóa, lựa chọn cặp ở đâu, không còn dư lượng lựa chọn, là ràng buộc ràng buộc. Bốn yếu tố quyết định cặp tRNA-synthetase nào bạn có thể sử dụng: chất nền phù hợp, chiến lược codon, sinh vật chủ, và liệu bạn có cần mã hóa nhiều ncAA cùng một lúc không. Hãy xử lý chúng theo thứ tự đó và hầu hết sự tự do rõ ràng trong danh mục dư lượng sẽ biến mất.
Hai nền tảng thống trị. các Methanocaldococcus jannaschii Cặp TyrRS/tRNA^Tyr chấp nhận chuỗi bên thơm và giống tyrosine. Giàn giáo pyrrolysyl-tRNA synthetase và các biến thể tiến hóa của nó có dư lượng cồng kềnh và giống lysine, và chịu đựng được sự đa dạng về cấu trúc hơn. Lưu ý rằng loại bỏ RF1 là chiến lược máy chủ giúp nâng cao hiệu quả ngăn chặn, không phải cặp thứ ba.
|
Dịch vụ Tính năng |
M. jannaschii TyrRS/tRNA^Tyr |
Các biến thể PylRS/tRNA^Pyl |
|---|---|---|
|
phạm vi cơ chất |
Giống Tyrosine, thơm |
giống lysine, cồng kềnh, đa dạng về cấu trúc |
|
Chiến lược codon |
Hổ phách (UAG) đàn áp |
Hổ phách, đất son, hoặc gán lại giác quan-codon |
|
Khả năng tương thích của máy chủ |
E. coli, men, tế bào động vật có vú |
E. coli, tế bào động vật có vú, hệ thống không có tế bào |
|
Sự phù hợp đa kênh |
Giới hạn; dung sai chất nền chồng chéo |
Phù hợp hơn với việc mở rộng cặp trực giao |
Ghép kênh là nơi trường đang di chuyển. MỘT 2024 chiến lược nén codon được xác định 12 các cặp tRNA-synthetase trực giao lẫn nhau tương thích với bộ tài nguyên GCE đã biết, điều này quan trọng nếu thiết kế của bạn cần hai hoặc nhiều ncAA riêng biệt trong một chuỗi.
Sau đó, có ranh giới giữa những gì ribosome có thể cài đặt và những gì chỉ SPPS mới có thể. Các sửa đổi chuỗi bên trên xương sống axit α-amino tương thích với GCE. axit β-amino, Một,dư lượng α bị thay thế, trong depsipeptide, và nhiều dư lượng N-methyl hóa không; chúng chỉ có SPPS hoặc chỉ có trong ống nghiệm. Nếu dư lượng mục tiêu của bạn nằm trong danh sách đó, không có lựa chọn cặp nào sẽ cứu được nó.
Đọc Ức chế hiệu quả một cách trung thực
Hiệu quả ngăn chặn là một phạm vi, và phạm vi chỉ có ý nghĩa gì đó với sự căng thẳng và phóng viên kèm theo. Các hệ thống trước đó cung cấp khoảng 10–20% cho một codon màu hổ phách. Hệ thống được tối ưu hóa và phát triển đạt 50–117% tùy theo ngữ cảnh, và 76–104% ở chủng C321 đã bị xóa RF1. Những con số đó mô tả các cấu trúc khác nhau, vì vậy chúng không phải là một cái thang bạn có thể leo lên bằng cách chọn số cao nhất.
Hiệu quả kết hợp cũng không phải là thước đo giống như khả năng đọc gần giống nhau. Đọc qua chạy về 1% trong Top10, Về 3% trong BL21, và lên đến 17% trong MG1655, đạt cao như 47.5% tại một địa điểm màu hổ phách nhất định trên nền đã bị xóa RF1. Một thước đo số lượng ncAA bạn cài đặt; cái còn lại đo xem bạn cài đặt sai bao nhiêu axit amin cùng với nó.
Hệ quả thực tế: một đặc điểm kỹ thuật chỉ nêu tên một tỷ lệ phần trăm, mà không nêu tên chủng và người báo cáo, không phải là một đặc điểm kỹ thuật. Yêu cầu cả hai trước khi bạn chấp nhận một con số hiệu quả.
Thiết kế thư viện peptide với axit amin phi núi
Khi cặp đã được cố định, nền tảng hiển thị mà bạn chọn đặt ra mức trần về số lượng axit amin phi chuẩn mà thư viện của bạn có thể chứa. màn hình mRNA và RaPID có dung sai ncAA cao nhất vì toàn bộ chu trình chạy trong ống nghiệm: flexizyme sạc trực tiếp tRNA, vì vậy ribosome không bao giờ phải cạnh tranh với synthetase của vật chủ, và các dư lượng được sửa đổi theo xương sống vẫn tiếp tục hoạt động. Màn hình Ribosome xếp hạng cao nhưng phụ thuộc vào hệ thống, vì dung sai thay đổi theo thiết lập lysate và hệ số phát hành. Hiển thị phage vẫn hoạt động được, bởi vì việc hiển thị thể thực khuẩn có thể mang các dư lượng không chuẩn hóa thông qua thể thực khuẩn trợ giúp mã hóa màu hổ phách, mặc dù bộ máy chủ hạn chế dư lượng nào tồn tại. Hiển thị men là hạn chế nhất trong bốn.
Vị trí quan trọng như nền tảng. Đa dạng hóa NCAA theo vị trí so với toàn cầu chia không gian thiết kế: một hoặc một vài vị trí được xác định phù hợp với một thăm dò cơ học hoặc một tay cầm liên hợp và dễ mô tả, trong khi sự thay thế phổ biến phù hợp với sự ổn định hoặc màn hình kháng protease và khó xác minh dư lượng bằng dư lượng hơn nhiều.
Nơi thiết kế thư viện đáp ứng sự lựa chọn tuyến đường
Một thư viện được xây dựng xung quanh phần dư được sửa đổi xương sống hoàn toàn không thể được tạo ra bằng cách mở rộng mã di truyền, vì vậy quyết định trưng bày và quyết định sản xuất phải được đưa ra cùng nhau thay vì theo trình tự. Lợi ích ổn định là điều làm cho ràng buộc đó đáng được chấp nhận. Trong một loạt chất ức chế, Dư lượng β2,3 tuần hoàn đã đẩy thời gian bán hủy trong huyết thanh qua 168 giờ lúc 37 °C trong huyết thanh người, chống lại 4.6 giờ cho biến thể alanine tương ứng; giàn giáo thứ hai trong cùng một công việc đã đạt được 48 giờ so với Cửa hàng 4.2 giờ. Quá trình N-methyl hóa mở rộng tính ổn định của proteinase-K từ 6 khoảng vài phút đến 110 phút trong thử nghiệm riêng của mình, và sự thay thế axit D-amino đã chuyển thời gian bán hủy từ vài phút sang vài giờ trong. Không có số liệu nào trong số này khái quát hóa peptide như một lớp: mỗi cái thuộc về giàn giáo và thử nghiệm riêng của nó. Hệ quả thực tế là hẹp và chắc chắn. Nếu mục tiêu ổn định của bạn yêu cầu sửa đổi đường trục, con đường đã được chọn cho bạn, và thư viện phải được thiết kế bên trong giới hạn đó ngay từ đầu.
Chiến lược liên hợp dành riêng cho từng trang web được kích hoạt bằng mã mở rộng
Quyết định tuyến đường đó mang thẳng vào cách chia động từ, trong đó tay cầm ncAA mua quyền kiểm soát vị trí mà không có phần dư chuẩn nào có thể sánh được, và nó thay đổi chế độ lỗi hơn là loại bỏ lỗi. Một tay cầm trực giao sinh học được lắp đặt tại một vị trí xác định mang lại khả năng kiểm soát vị trí cao nhất và gánh nặng ngoài mục tiêu thấp nhất so với bất kỳ chiến lược liên hợp peptide cụ thể nào tại địa điểm, nhưng lỗi mà bạn gặp phải là do sự kết hợp không hoàn chỉnh hoặc nguyên liệu ban đầu không phản ứng, không nhắm mục tiêu sai. Cysteine có tính chọn lọc hóa học và rẻ tiền, nhưng vẫn bị kiềm hóa quá mức, quá trình oxy hóa và xáo trộn disulfide là chuyện thường ngày. Sự ghép lysine tạo ra hỗn hợp đồng phân regio. Hóa học đầu N cải thiện lysine nhưng vẫn giữ nguyên trình tự- và phụ thuộc vào ngữ cảnh.
|
Hoá học |
Tính chọn lọc |
Động học |
đồng |
Chế độ lỗi nó tạo ra |
|---|---|---|---|---|
|
SPAAC (azit + cyclooctyne) |
Cao |
Vừa phải |
Không bắt buộc |
Tay cầm azide không phản ứng |
|
cuAAC (azit + ankin) |
Cao |
Nhanh |
Yêu cầu |
Phản ứng phụ qua trung gian đồng |
|
Tetrazin-TCO |
Tổng hợp peptit Cao |
Nhanh nhất |
Không bắt buộc |
Tetrazin thủy phân |
|
Chu kỳ ncAA điện di |
Cao khi hình học được tổ chức trước |
Nội phân tử |
Không bắt buộc |
Sản phẩm liên phân tử cạnh tranh |
Thực đơn ngắn. SPAAC không có đồng và vận hành đơn giản; CuAAC mạnh nhất nhưng độ nhạy đồng lại là vấn đề; nhãn tetrazine-TCO nhanh nhất; và chu kỳ ncAA điện di là nội phân tử và sạch sẽ khi hình học được tổ chức trước, như đã báo cáo cho tay cầm ncAA trực giao sinh học gấp đôi (Truyền thông thiên nhiên, 2023).
Lựa chọn giữa liên hợp sinh học trực giao và thắt hóa học bản địa
Việc thắt hóa học tự nhiên và liên hợp ncAA giải quyết các vấn đề khác nhau và không thể thay thế. NCL là tuyến đường khi mục tiêu yêu cầu sửa đổi đường trục, dư lượng D, hoặc một phân đoạn mà không có cặp trực giao nào sẽ tính phí; điều kiện tiên quyết của nó là một mối nối thắt khả thi và một đoạn thioester. Liên hợp ncAA là con đường khi mục tiêu là một peptide xương sống α tiêu chuẩn cần một điểm gắn xác định, và điều kiện tiên quyết của nó là một cặp có phạm vi cơ chất chấp nhận phần điều khiển cộng với máy chủ hoặc phần trích xuất ngăn chặn khả năng đọc chuẩn cạnh tranh.
Hệ quả thực tế: đưa ra quyết định chia động từ cùng lúc với quyết định ncAA. Tay cầm mà cặp đã chọn sẽ không sạc là thiết kế lại, không phải là sự thay thế.
Kiểm soát phân tích chứng minh tính trung thực của trình tự
Dù bạn chọn con đường chia động nào, gói kiểm soát là thứ chuyển đổi yêu cầu tổng hợp thành thông số kỹ thuật có thể bảo vệ được, và nó phải được thiết kế trước khi sản xuất lô hàng đầu tiên, không được lắp ráp sau khi sai lệch. Đối với bất kỳ peptide nào mang dư lượng không chính tắc, kiểm soát phân tích độ trung thực trình tự dựa trên năm yếu tố: Xác nhận khối lượng chính xác của peptit nguyên vẹn cộng với các ion mảnh định vị trình tự bao trùm phần dư đã được biến đổi bằng LC-MS/MS; định lượng hiệu quả hợp nhất, nghĩa là phần peptit mang ncAA so với các chất không hợp nhất chính tắc hoặc sản phẩm không được dán nhãn; chất điều khiển diastereomer/epimer so với chuẩn tổng hợp hoặc phương pháp bất đối trực giao hoặc phương pháp thời gian lưu, bởi vì LC-MS tiêu chuẩn thường không thể phân biệt được các epime; xác thực hệ thống dịch trực giao với các điều khiển phủ định và không phát hiện được khả năng đọc ngoài mục tiêu; Và, đối với các ncAA được gắn thẻ phần tử chẳng hạn như các biến thể selen hoặc boron, phân tích axit amin hoặc ICP-MS (2026 xem xét về sự kết hợp sinh học chính xác và sự kết hợp cụ thể tại địa điểm, đã lấy lại 2026-02-04).
Đặt tiêu chí chấp nhận trước lô đầu tiên
Mỗi điều khiển chỉ trở nên hữu ích khi nó mang một số. Liên kết độ chính xác khối lượng với dư lượng được xác nhận, gắn ngưỡng hiệu quả kết hợp với khả năng phân giải của xét nghiệm đo lường nó, và yêu cầu bộ điều khiển epimer đặt tên cho tiêu chuẩn tham chiếu mà nó so sánh với. Trường hợp peptit là ứng cử viên cho đường tiêm, giới hạn dược điển phụ thuộc vào liều lượng: USP <85> đặt giới hạn nội độc tố = K/M, với K = 5 EU/kg/giờ đối với các tuyến không nằm trong vỏ não và K = 0.2 EU/kg/giờ trong vỏ não, được biểu thị trên mỗi mg hoặc mỗi mL liều tối đa cho con người. Tôi quý 2(R2) đặt các tham số xác nhận, và các nguyên tắc MHRA ALCOA định hình các kỳ vọng về tính toàn vẹn dữ liệu xung quanh chúng.
Một biện pháp kiểm soát không được ghi vào thông số kỹ thuật trước lô đầu tiên là biện pháp kiểm soát mà bạn sẽ thương lượng sau khi có sai lệch.
Mở rộng quy mô: SPSS, CFPS và Rủi ro về tính trung thực giữa các lô
Những biện pháp kiểm soát đó sau đó phải tồn tại khi mở rộng quy mô, bởi vì lộ trình tạo ra lô nghiên cứu của bạn không tự động là lộ trình tạo ra lô lâm sàng của bạn, và hồ sơ rủi ro về độ trung thực sẽ thay đổi theo nó. Quá trình tổng hợp peptide pha rắn hoạt động ở mức miligam đến gam mỗi mẻ, với quy trình công việc chuẩn bị và công nghiệp đạt tới hàng chục đến hàng trăm gram, và một số chuỗi thành thang đo kilôgam. Các hệ thống không có tế bào thường cung cấp mg mỗi lít: Về 96 ± 3 mg/L đối với chất mang protein 40 axit amin không phải canon giống hệt nhau, trong khi chiết xuất thiếu hụt RF1 được tối ưu hóa đã đạt được khoảng 1,780 ± 30 mg/L đối với sfGFP (tài liệu về hợp nhất ncAA không có tế bào, 2020). Khoảng cách quy mô giữa các tuyến pha rắn và không có tế bào là có thật, và nó định hình rủi ro về độ trung thực nào chiếm ưu thế ở từng giai đoạn.
Hai rủi ro lô-to-lô xảy ra sau sự phân chia đó. Dưới sự đàn áp hổ phách, các sản phẩm cắt ngắn và đọc qua thay đổi tùy theo trạng thái máy chủ, do đó cấu hình tạp chất có thể thay đổi giữa các lần lên men ngay cả khi dải mục tiêu trông không thay đổi. Dưới sự phân công lại codon giác quan, tỷ lệ không chuẩn so với chuẩn có thể trôi đi trong khi tổng sản lượng không đổi, điều đó có nghĩa là thử nghiệm phát hành chỉ mang lại lợi nhuận sẽ không bắt được nó.
Hệ quả thực tế: các biện pháp kiểm soát độ trung thực từ phần trước thuộc về thông số phát hành cho mỗi lô, không chỉ ở đợt xét tuyển.
Những điều cần hỏi đối tác trước khi cam kết
Đưa sáu câu hỏi vào cuộc trò chuyện. Cặp axit amin không chính tắc và trực giao nào? Chiến lược codon nào, ức chế hổ phách hoặc phân công lại codon giác quan? Máy chủ nào hoặc chiết xuất không có tế bào, và hiệu suất ngăn chặn được ghi lại của nó là gì? Con đường liên hợp nào, và nó có bảo quản được cặn kết hợp không? Kiểm soát nào trong năm kiểm soát độ trung thực chạy trên mọi lô? Và tiêu chí chấp nhận nào xác định lô hàng đã qua trước khi lô hàng đầu tiên được thực hiện?
Quy trình làm việc từ thiết kế đến QC có cấu trúc hỗ trợ điều này. Thay đổi MOL có thể được sử dụng để căn chỉnh lựa chọn ncAA, lộ trình tổng hợp và tiêu chí phát hành phân tích trong một lần chuyển giao, vì vậy các biện pháp kiểm soát được thống nhất ở giai đoạn thiết kế là các biện pháp kiểm soát được thực hiện trên quy mô lớn. Yêu cầu bảng điều khiển cấp lô bằng văn bản, và so sánh nó với đặc điểm kỹ thuật của riêng bạn trước khi cam kết.
Những quan niệm sai lầm phổ biến về mã di truyền mở rộng
Bốn lỗi xuất hiện thường xuyên trong quá trình đánh giá chương trình đến mức chúng đáng được đặt tên trực tiếp.
Đầu tiên là mã di truyền mở rộng có nghĩa là bộ gen được viết lại. Trong thực tế nó thường có nghĩa là một codon được gán lại và một cặp trực giao, được thêm vào một máy chủ không thay đổi.
Thứ hai là hiệu quả kết hợp cao hơn có nghĩa là độ tinh khiết cao hơn. Hai vật có thể chuyển động ngược chiều nhau: việc gán lại codon giác quan có thể giữ được năng suất trong khi độ tinh khiết giảm, bởi vì codon được gán lại hiện có sẵn cho các tRNA gần giống nhau cũng như cho cặp trực giao.
Thứ ba là bất kỳ axit amin không chuẩn hóa nào cũng có thể được đưa vào bất kỳ lộ trình sản xuất nào. Sự phân chia sửa đổi xương sống là một ranh giới cứng, không phải là một sở thích: dư lượng làm thay đổi xương sống không thể được cài đặt bằng cách kết hợp ribosome, và các dư lượng cần có ribosome không thể được tạo ra bởi SPPS.
Mối quan tâm thứ tư về thử nghiệm phát hành.
⚠️ Cảnh báo: Một khối nguyên vẹn duy nhất không xác nhận trình tự. Không có các mảnh ion trải dài trên phần cặn đã biến tính, một epimer hoặc sự kết hợp sai ở vị trí gần đó có thể đạt cùng thông số kỹ thuật.
Hộp công cụ đang hướng tới đâu
Với những quan niệm sai lầm đã được xóa bỏ, hướng đi là sử dụng nhiều mã hơn cùng một lúc. Nơi công việc ban đầu dựa vào một cặp trực giao duy nhất, các hệ thống gần đây đã chỉ ra rằng các cặp trực giao lẫn nhau được sử dụng cùng nhau có thể hoạt động trong cùng một ô, đó là điều làm cho việc kết hợp nhiều vị trí của các axit amin không chuẩn hóa khác nhau trở thành một lựa chọn thiết kế thay vì một thử nghiệm suy nghĩ.
Sự thay đổi thứ hai là kiến trúc. Sự quan tâm đã chuyển sang các hệ thống dựa trên chiết xuất và không có tế bào để tránh việc sửa đổi vĩnh viễn bộ gen chủ., giúp rút ngắn chu trình giữa việc thiết kế một công trình và thử nghiệm nó. Bên cạnh đó, Công việc codon bốn nucleotide mở rộng không gian codon có sẵn vượt quá tiêu chuẩn 64, mở rộng phòng có sẵn để phân công lại.
Lời cảnh báo trung thực không thay đổi: hiệu quả ngăn chặn vẫn là ncAA- và phụ thuộc vào bối cảnh theo trình tự, và không phải mọi axit amin không chuẩn đều tương thích với mọi lộ trình. Chính vì vậy mà khung đánh giá trong Peptide tổng hợp hướng dẫn này, thay vì bất kỳ cặp hoặc nền tảng cụ thể nào, là phần đáng để giữ lại: mã di truyền mở rộng cho thiết kế peptide tùy chỉnh sẽ tiếp tục thay đổi, nhưng các biện pháp kiểm soát chứng minh những gì bạn đã xây dựng sẽ không.
Các bước tiếp theo
Đưa ra một trình tự cụ thể và yêu cầu về độ trung thực cụ thể cho cuộc trò chuyện kỹ thuật đầu tiên về mã di truyền mở rộng cho thiết kế peptide tùy chỉnh, không phải là một cuộc điều tra chung chung. Danh sách kiểm tra đánh giá dưới đây biến khuôn khổ gồm bốn phần trong hướng dẫn này thành những câu hỏi mà đối tác có thể trả lời mà không cần phòng ngừa rủi ro:
-
Cặp trực giao nào, và hiệu quả triệt tiêu đã được quan sát thấy đối với nó trong máy chủ biểu thức của bạn?
-
Chiến lược codon nào: đàn áp hổ phách, chuyển nhượng lại sense-codon, hoặc một codon bốn nhân?
-
Tuyến đường nào cho trình tự này: SPSS, tổng hợp không có tế bào, hoặc lên men, và tại sao cái đó?
-
hóa học liên hợp nào, và nó có trực giao với các phần còn lại đã có trong chuỗi không?
-
Biện pháp kiểm soát phân tích độ trung thực nào trong số năm biện pháp kiểm soát được thực hiện trên mỗi lô, và tiêu chí chấp nhận là gì?
Một đối tác có thể trả lời cả năm, và nói rõ ràng nơi nào một ncAA hoặc tuyến đường nhất định sẽ không hoạt động, có giá trị hơn một báo giá thấp hơn. MOL Changes hỗ trợ kiểu đối thoại giữa thiết kế và QC này trên 300+ nhóm chức năng, SPPS và quá trình lên men vi sinh vật, thang đo mg/kg, và HPLC/MS và QC vô trùng thuộc Loại 100 điều kiện phòng sạch.
Tiết lộ: MOL Changes là nhà tài trợ của hướng dẫn này. Khung và tiêu chí đánh giá trên được trình bày nhằm mục đích nghiên cứu và so sánh. Về
Câu hỏi thường gặp
mã di truyền mở rộng là gì?
Mã di truyền mở rộng là một hệ thống dịch mã trong đó một hoặc nhiều codon được ấn định lại để xác định một axit amin không chính tắc thay vì axit amin chuẩn.. Việc phân công lại được nhắm mục tiêu chứ không phải toàn cầu: một tRNA trực giao và cặp synthetase aminoacyl-tRNA của nó được đưa vào để synthetase chỉ tích điện cho tRNA được thiết kế cùng nguồn gốc của nó, để nguyên bộ máy dịch thuật của chủ nhà. Trong khung 64 codon tiêu chuẩn, chừa chỗ để cài đặt chức năng hóa học mới tại vị trí đã chọn mà không cần viết lại phần còn lại của hệ protein.
Có bao nhiêu axit amin không canonical có thể được mã hóa di truyền?
MỘT 2025 ước tính đánh giá đặt số lượng axit amin không mã hóa có thể mã hóa di truyền ở mức trên 300, mặc dù con số đó mô tả hộp công cụ tích lũy của trường hơn là những gì bất kỳ hệ thống đơn lẻ nào có thể cung cấp. Số lượng thực tế nhỏ hơn nhiều, bởi vì mỗi ncAA cần một cặp trực giao tương thích và một máy chủ có thể chấp nhận việc gán lại. Hãy coi số tiêu đề là giới hạn trên của những gì đã được chứng minh ở đâu đó, không phải là một thực đơn mà bạn có thể gọi món.
Sự khác biệt giữa việc triệt tiêu hổ phách và việc gán lại codon giác quan là gì?
Việc ức chế hổ phách đọc qua codon dừng UAG và cạnh tranh trực tiếp với hệ số phát hành 1, vì vậy chế độ lỗi đặc trưng của nó là sản phẩm bị cắt bớt. Việc gán lại codon giác quan hoán đổi một codon thường mã hóa phần dư tiêu chuẩn, nên kiểu thất bại của nó là dân số hỗn hợp: năng suất có thể duy trì ở mức cao trong khi độ tinh khiết giảm, bởi vì dư lượng kiểu hoang dã vẫn được kết hợp cùng với ncAA. Sự khác biệt đó quyết định bạn cần điều khiển nào, vì phần cắt ngắn xuất hiện nguyên vẹn trong khi dịch sai thì không.
Những axit amin không chuẩn nào có thể được tạo ra bởi SPPS thay vì mở rộng mã di truyền?
axit β-amino, Một,dư lượng α bị thay thế, Các liên kết depsipeptide và nhiều gốc N-methyl hóa thường chỉ có thể tiếp cận được bằng phương pháp tổng hợp pha rắn hoặc hóa học in vitro, vì ribosome sẽ không chấp nhận chúng làm chất nền. Lớp mã hóa di truyền hẹp hơn: sửa đổi chuỗi bên được xây dựng trên xương sống axit α-amino. Selenocysteine là ngoại lệ tự nhiên, được mã hóa thông qua máy móc chuyên dụng của riêng nó thay vì thông qua một cặp được thiết kế. Sản xuất peptit
Làm thế nào để bạn xác nhận rằng một axit amin không chuẩn hóa đã được kết hợp tại vị trí dự định?
Việc xác nhận yêu cầu khối lượng chính xác cộng với các ion mảnh định vị theo trình tự trải rộng trên phần dư đã được sửa đổi, thông thường bằng LC-MS/MS, cùng với việc định lượng hiệu quả kết hợp và kiểm soát epime đối với tham chiếu tổng hợp. Chỉ riêng khối lượng nguyên vẹn là không đủ vì nó không thể phân biệt vị trí dự định với đồng phân vị trí hoặc biến thể bị xóa có khối lượng tương tự. Các mảnh ion là thứ định vị phần cặn; khối lượng chỉ cho bạn biết điều gì đó đã thay đổi.
Các axit amin không chuẩn có thể được kết hợp ở nhiều vị trí không?
Đúng, nhưng việc kết hợp nhiều địa điểm sẽ tăng gấp đôi gánh nặng phân tích thay vì chỉ lặp lại quy trình làm việc tại một địa điểm. Mỗi vị trí bổ sung sẽ thêm sự kiện loại bỏ hoặc phân công lại của chính nó, và tỷ lệ sản phẩm mang ncAA tại mỗi địa điểm dự kiến sẽ giảm khi các vị trí tích lũy, vì vậy quần thể trở thành sự phân bố của các loài bị biến đổi một phần. Bạn cần phải quyết định trước xem xét nghiệm có giải quyết được sự phân bố đó hay không, bởi vì một phương pháp được xác thực cho một trang web sẽ không tự động báo cáo trên bốn trang web.
Việc mở rộng mã di truyền có thể mở rộng để sản xuất peptide ở giai đoạn lâm sàng không?
Khả năng mở rộng tùy thuộc vào tuyến đường bạn chọn, và hai tuyến đường thất bại khác nhau. Quá trình tổng hợp protein không có tế bào đã chứng minh hiệu suất trong phạm vi được báo cáo trước đó trong bài viết này, nhưng những số liệu đó đến từ các hệ thống thử nghiệm đã xác định và không tự động chuyển sang quy trình GMP. Quy mô tổng hợp pha rắn dễ dự đoán hơn đối với các chuỗi ngắn hơn nhưng không thể đạt tới các dư lượng chỉ có SPPS. Đối với công việc ở giai đoạn lâm sàng, câu hỏi thực tế không phải là liệu thang đo hóa học mà là liệu gói phân tích của bạn có thể chứng minh độ chính xác của trình tự từng lô ở thang đo đó hay không.
Phần kết luận
Chiến lược codon bạn chọn sẽ xác định chế độ thất bại mà bạn kế thừa, vì vậy gói kiểm soát chứng minh độ trung thực của trình tự phải được chỉ định trước lô đầu tiên, không theo sau nó. Đó là chủ đề xuyên suốt hướng dẫn này: mã di truyền mở rộng để thiết kế peptide tùy chỉnh là một vấn đề đánh giá trước khi chúng là một vấn đề tổng hợp.
Bốn quyết định mà đối tác phải có khả năng bảo vệ bằng văn bản là axit amin không chuẩn và hành vi ngăn chặn của nó trong bối cảnh trình tự của bạn, thiết kế thư viện và cách nó hạn chế lộ trình, hóa học liên hợp và những gì nó để lại nguyên vẹn, và các tiêu chí chấp nhận phân tích cùng với các phương pháp và giới hạn của chúng. Mỗi cái thu hẹp cái tiếp theo.
Hướng di chuyển hướng về các cặp trực giao lẫn nhau sử dụng cùng nhau, các hệ thống dựa trên chiết xuất và không có tế bào để lại bộ gen chủ không bị ảnh hưởng, và các codon 4 nucleotide mở rộng không gian codon có sẵn vượt quá tiêu chuẩn 64. Lời cảnh báo trung thực là hiệu quả ngăn chặn vẫn phụ thuộc vào ncAA và trình tự xung quanh, và không phải mọi ncAA đều tương thích với mọi tuyến đường.
Sử dụng danh sách kiểm tra trong Bước tiếp theo làm cơ sở cho cuộc trò chuyện kỹ thuật đầu tiên của bạn.
Về tác giả: [Tên tác giả], [thông tin xác thực], viết về thiết kế peptide và chiến lược kiểm soát phân tích cho MOL Changes.
Tiết lộ: MOL Changes cung cấp thiết kế peptide, dịch vụ tổng hợp và phân tích, bao gồm các khả năng được thảo luận trong hướng dẫn này.