Што насамрэч змяняюць пашыраныя генетычныя коды для індывідуальнага дызайну пептыдаў
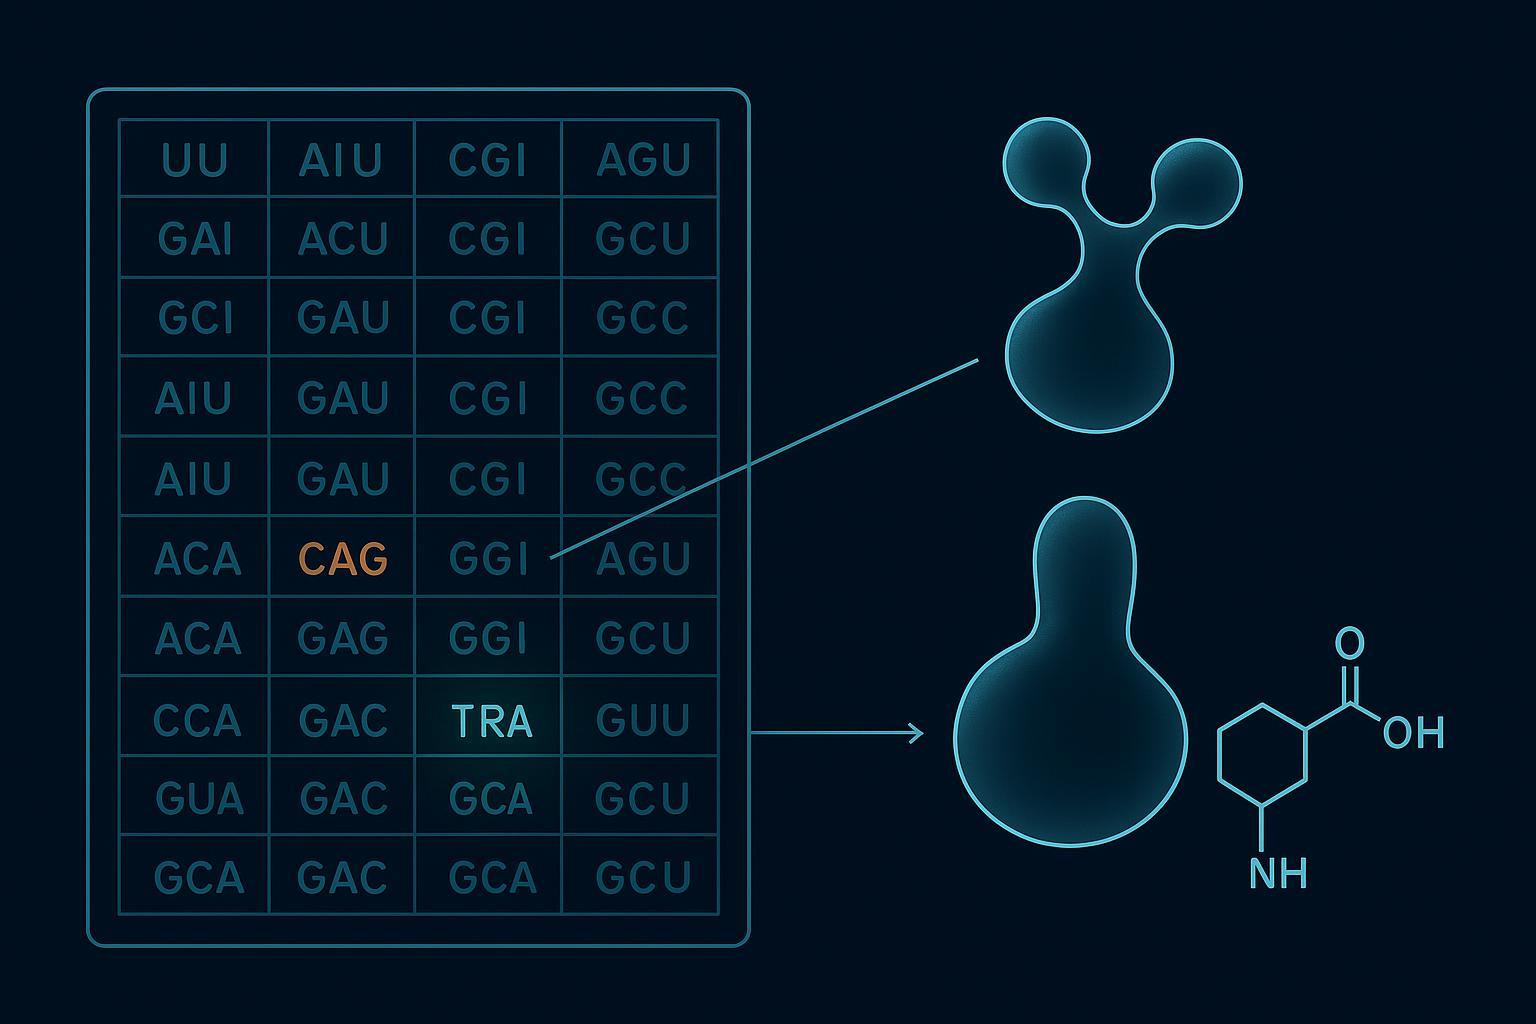
Стандартны генетычны код прысвойвае 64 кадоны: 61 сэнсарныя кодоны і 3 стоп-кодоны, і кожны сэнсавы кодон вызначае адзін з 20 кананічныя амінакіслоты (Калекцыя Addgene Genetic Code Expansion, апошні агляд 19 лістапад 2025). Пашыраны генетычны код перапісвае гэта прызначэнне. Адзін або некалькі кадонаў перанакіроўваюцца на некананічную амінакіслату праз перапрызначэнне кадонаў, усталёўваецца спецыяльна для сайта артаганальнай тРНК / пара амінаацыл-тРНК-сінтэтазы, якая зараджае толькі сваю ўласную сканструяваную тРНК і нічога больш у гаспадара.
Гэта вызначэнне мае меншае значэнне, чым рэжым адмовы, які ён фіксуе. Бурштын (УАГ) падаўленне чытае праз стоп-кодон, таму ён напрамую канкуруе з фактарам вызвалення 1. Калі падаўленне губляе гэтую гонку, у выніку заўчаснае спыненне і ўсечаны прадукт, страты, якія перакадзіраваныя або RF1-накаўт хасты спецыяльна распрацаваны, каб паменшыць (Біятэхналогія прыроды, 11 верасень 2024). Перапрызначэнне сэнсавых кодонаў атрымоўваецца інакш: пераназначаны кодон па-ранейшаму канкуруе са сваім першапачатковым значэннем, so the product arrives as a mixture containing canonical misincorporants rather than a short chain.
Ключ на вынас: Amber suppression fails by truncation; sense-codon reassignment fails by mixture. Yield and purity therefore move independently, and the failure mode you inherit is set by the codon strategy you choose, not by how skilled the supplier is.
[ДЫЯГРАМА: labeled 64-codon table with UAG and one sense codon highlighted, each arrowed to its orthogonal tRNA/synthetase pair]
Чаму Toolbox рухаўся хутчэй, чым агляды
The reference material most teams reach for lags the chemistry. А 2025 review puts the count at over 300 noncanonical amino acids successfully used in genetic code expansion (Камунікацыі прыроды, 29 верасень 2025), while the most-cited review in search results on this topic dates to 2014. Plasmid-level resources have kept closer pace: Addgene’s expanding GCE collection lists roughly 150 synthetase plasmids and 26 бактэрыяльныя штамы, з апошнім разглядам змесціва 19 лістапад 2025 (Addgene). Калі ваш шорт-ліст быў створаны з агляду дзесяцігадовай даўніны, ён апісвае меншы набор інструментаў, чым той, які існуе.
Як пашыраныя генетычныя коды змяняюць некананічны выбар амінакіслот
Тая ж стратэгія кодона таксама ўсталёўвае ўмовы некананічнага адбору амінакіслот, дзе выбар пары, не рэшткавы выбар, з'яўляецца абавязковым абмежаваннем. Чатыры фактары вырашаюць, якую пару тРНК-сінтэтазы вы можаце выкарыстоўваць: прылеганія падкладкі, стратэгія кодона, арганізм гаспадара, і ці трэба вам кадзіраваць больш чым адзін ncAA адначасова. Прапрацуйце іх у такім парадку, і большая частка відавочнай свабоды ў каталогу рэшткаў знікне.
Дамінуюць дзве платформы. The Метанокальдокок джанаскій Пара TyrRS/тРНК^Tyr прымае тыразінападобныя і араматычныя бакавыя ланцугі. Каркас піралізіл-тРНК-сінтэтазы і яго развітыя варыянты прымаюць падобныя на лізін і аб'ёмныя рэшткі, і мірыцца з большай структурнай разнастайнасцю. Звярніце ўвагу, што накаўт RF1 - гэта стратэгія гаспадара, якая павышае эфектыўнасць падаўлення, не трэцяя пара.
|
Паслугі Асаблівасць |
М. яннашчыі TyrRS/тРНК^Tyr |
PylRS/tRNA^Pyl variants |
|---|---|---|
|
Сфера прымянення падкладкі |
Тыразінападобныя, духмяны |
Лизиноподобные, грувасткі, канструктыўна разнастайныя |
|
Стратэгія Codon |
Бурштын (УАГ) падаўленне |
Бурштын, вохра, або перапрызначэнне сэнсавага кодона |
|
Сумяшчальнасць з хостам |
Э. палачка, дрожджы, клеткі млекакормячых |
Э. палачка, клеткі млекакормячых, бясклетачныя сістэмы |
|
Прыдатнасць мультыплексавання |
Абмежаваны; допуск перакрыцця падкладкі |
Лепш падыходзіць для пашырэння артаганальнай пары |
Мультыплексаванне - гэта тое, дзе поле рухаецца. А 2024 выяўлена стратэгія сціску кодонаў 12 узаемна артаганальныя пары тРНК-сінтэтазы, сумяшчальныя з вядомым наборам рэсурсаў GCE, што мае значэнне, калі вашаму праекту патрэбныя два ці больш розных NCAA у адной ланцужку.
Тады існуе мяжа паміж тым, што можа ўсталяваць рыбасома, і тым, што можа толькі SPPS. Мадыфікацыі бакавых ланцугоў на асновы α-амінакіслот сумяшчальныя з GCE. β-амінакіслоты, а,α-двузамешчаных астаткаў, у депсипептидах, і многія N-метыляваныя астаткі такімі не з'яўляюцца; яны прызначаны толькі для SPPS або in vitro. Калі ваш мэтавы рэшту знаходзіцца ў гэтым спісе, ніякі выбар пары не выратуе.
Эфектыўнасць падаўлення чытання. Шчыра кажучы
Эфектыўнасць падаўлення - дыяпазон, і дыяпазон азначае толькі тое, што звязана са штамам і рэпарцёрам. Ранейшыя сістэмы дастаўлялі прыкладна 10–20% для аднаго бурштынавага кодона. Аптымізаваныя і пашыраныя сістэмы дасягаюць 50–117% у залежнасці ад кантэксту, і 76-104% у штаме C321 з выдаленым RF1. Гэтыя лічбы апісваюць розныя канструкцыі, такім чынам, яны не з'яўляюцца лесвіцай, па якой можна падняцца, выбраўшы найбольшы лік.
Эфектыўнасць уключэння таксама не з'яўляецца той самай метрыкай, што амаль роднаснае чытанне. Чытанне прабягае 1% у топ-10, аб 3% у BL21, і да 17% у MG1655, дасягаючы так высока, як 47.5% на дадзеным бурштынавым сайце на фоне, выдаленым RF1. Адзін вымярае, колькі ncAA вы ўсталявалі; іншы вымярае, колькі няправільнай амінакіслоты вы ўсталёўваеце разам з ім.
Практычныя наступствы: спецыфікацыя, якая называе толькі працэнт, не называючы штаму і рэпарцёра, не з'яўляецца спецыфікацыяй. Спытаеце абодва, перш чым прыняць лічбу эфектыўнасці.
Распрацоўка пептыдных бібліятэк з некананічнымі амінакіслотамі
Пасля таго, як пара фіксуецца, платформа адлюстравання, якую вы выбіраеце, усталёўвае столь, на якой некананічныя амінакіслоты ваша бібліятэка наогул можа ўтрымліваць. Дысплей мРНК і RaPID найбольш важныя для талерантнасці да ncAA, таму што ўвесь цыкл праходзіць in vitro: flexizyme зараджае тРНК непасрэдна, таму рыбасома ніколі не павінна канкураваць з сінтэтазай гаспадара, і мадыфікаваныя рэшткі хрыбетніка застаюцца ў гульні. Дысплей рыбасом займае высокі рэйтынг, але залежыць ад сістэмы, паколькі талерантнасць змяняецца разам з лізатам і наладай фактару вызвалення. Фагавы дысплей застаецца працаздольным, таму што фагавы дысплей можа пераносіць некананічныя рэшткі праз дапаможны фаг, які кадуе бурштын, хоць машына гаспадара абмяжоўвае, якія рэшткі выжывуць. Дысплей дрожджаў найбольш абмежаваны з чатырох.
Становішча мае такое ж значэнне, як і платформа. Пазіцыйная дыверсіфікацыя супраць глабальнай дыверсіфікацыі NCAA падзяліла прастору дызайну: адзін або некалькі вызначаных сайтаў падыходзяць для механічнага зонда або аднаго спалучэння, і іх лёгка ахарактарызаваць, у той час як паўсюднае замяшчэнне падыходзіць для праверкі стабільнасці або ўстойлівасці да пратэазы і значна цяжэй праверыць астатак за астаткам.
Дзе дызайн бібліятэкі сустракаецца з выбарам маршруту
Бібліятэка, пабудаваная на аснове мадыфікаванага астатку, наогул не можа быць атрымана шляхам пашырэння генетычнага кода, таму рашэнне аб паказе і вытворчасці павінны прымацца разам, а не паслядоўна. Выйгрыш за стабільнасць - гэта тое, што робіць гэтае абмежаванне варта прыняць. У адной серыі інгібітараў, цыклічныя рэшткі β2,3 падштурхнулі перыяд паўраспаду ў сыроватцы крыві 168 гадзін у 37 °C у сыроватцы крыві чалавека, супраць 4.6 гадзін для адпаведнага варыянту аланін; другі эшафот у той жа працы дасягнуў 48 гадзін супраць Крама 4.2 гадзіны. N-метилирование пашырыла стабільнасць протеиназы-K ад 6 хвілін да прыкладна 110 хвілін у сваім уласным аналізе, і D-амінакіслотныя замены перанеслі перыяд паўраспаду з хвілін на гадзіны ў іх. Ні адна з гэтых фігур не абагульняе пептыды як клас: кожны належыць да свайго ўласнага эшафоту і аналізу. Практычны вынік вузкі і цвёрды. Калі ваша мэта стабільнасці патрабуе мадыфікацыі магістралі, маршрут абраны для вас, і бібліятэка павінна быць распрацавана ўнутры гэтага ліміту з самага пачатку.
Спецыфічныя для сайта стратэгіі спалучэння, уключаныя пашыранымі кодамі
Гэтае рашэнне аб маршруце адразу пераходзіць у кан'югацыю, дзе ручка ncAA купляе пазіцыйны кантроль, з якім не можа параўнацца ніякі кананічны рэшту, і гэта змяняе рэжым адмовы, а не ліквідуе адмову. Біяартаганальная ручка, усталяваная ў вызначаным становішчы, забяспечвае найвышэйшы пазіцыйны кантроль і найменшую пазацэлевую нагрузку з любой стратэгіі кан'югацыі пептыдаў, арыентаванай на сайт, але няўдачай, з якой вы тады спраўляецеся, з'яўляецца няпоўнае ўключэнне або зыходны матэрыял, які не прарэагаваў, не памылкова арыентавацца. Цистеин хемоселективен і танны, яшчэ празмернае алкіляванне, акісленне і дысульфіднае перамешванне з'яўляюцца звычайнай справай. Спалучэнне лізіну дае сумесі рэгіяізамераў. N-канцавая хімія паляпшаецца на лізіне, але застаецца паслядоўнасцю- і залежны ад кантэксту.
|
Хімія |
Выбіральнасць |
Кінетыка |
медзь |
Рэжым адмовы ён вырабляе |
|---|---|---|---|---|
|
СПААК (азід + цыклаоктын) |
Высокі |
Умераны |
Не патрабуецца |
Ручка з азіду без рэакцыі |
|
CuAAC (азід + алкін) |
Высокі |
Хуткі |
абавязковы |
Пабочныя рэакцыі, апасродкаваныя меддзю |
|
Тэтразін-ТСО |
Сінтэз пептыдаў Высокі |
Самы хуткі |
Не патрабуецца |
Гідралізаваны тэтразін |
|
Электрафільная цыклізацыя ncAA |
Высокі, калі геаметрыя загадзя арганізавана |
Унутрымалекулярны |
Не патрабуецца |
Канкуруючы міжмалекулярны прадукт |
Меню кароткае. SPAAC не змяшчае медзі і просты ў эксплуатацыі; CuAAC з'яўляецца найбольш надзейным, але адчувальнасць да медзі - гэта недахоп; тэтразін-TCO этыкеткі самыя хуткія; і электрафільная цыклізацыя ncAA з'яўляецца ўнутрымалекулярнай і чыстай, калі геаметрыя загадзя арганізавана, як паведамляецца за падвойныя біяартаганальныя ручкі ncAA (Камунікацыі прыроды, 2023).
Выбар паміж біяартаганальнай кан'югацыяй і натыўным хімічным лігаваннем
Натыўная хімічная перавязка і кан'югацыя ncAA вырашаюць розныя праблемы і не з'яўляюцца заменай. NCL - гэта маршрут, калі мэта патрабуе мадыфікацыі магістралі, D-астатак, або сегмент, які ніякая артаганальная пара не будзе зараджаць; яго абавязковай умовай з'яўляецца жыццяздольнае злучэнне перавязкі і тиоэфирный сегмент. Кан'югацыя ncAA - гэта шлях, калі мішэнню з'яўляецца стандартны пептыд α-магніта, якому патрэбна адна пэўная кропка прымацавання, і яго перадумовай з'яўляецца пара, чый аб'ём падкладкі прымае дэскрыптар плюс хост або экстракт, які душыць канкуруючае кананічнае чытанне.
Практычныя наступствы: прыняць рашэнне аб кан'югацыі адначасова з рашэннем ncAA. Ручка, якую абраная пара не спаганяе, - гэта рэдызайн, не замена.
Аналітычныя сродкі кантролю, якія пацвярджаюць дакладнасць паслядоўнасці
На якім бы шляху спражэння вы ні спыніліся, пакет кіравання - гэта тое, што пераўтварае патрабаванне сінтэзу ў апраўданую спецыфікацыю, і ён павінен быць распрацаваны да таго, як будзе зроблена першая партыя, не сабраны пасля адхілення. Для любога пептыда, які нясе некананічны астатак, аналітычныя элементы кантролю дакладнасці паслядоўнасці абапіраюцца на пяць элементаў: пацверджанне дакладнай масы непашкоджанага пептыда плюс іёны фрагментаў лакалізацыі паслядоўнасці, якія ахопліваюць мадыфікаваны астатак, з дапамогай ВХ-МС/МС; колькасная ацэнка эфектыўнасці ўключэння, што азначае долю пептыда, які змяшчае ncAA, у параўнанні з кананічнымі дэзінкарпаратынамі або немаркіраваным прадуктам; кантроль дыястэрэамераў/эпімераў у параўнанні з сінтэтычным эталонам або артаганальным хіральным метадам або метадам часу ўтрымання, таму што стандартная ВХ-МС часта не можа адрозніць эпімеры; Праверка сістэмы артаганальнага перакладу з адмоўным кантролем і адсутнасцю выяўленага скразнога прачытання па-за мэтай; і, для NCAA з тэгамі элементаў, такіх як варыянты селену або бору, амінакіслотны аналіз або ИСП-МС (2026 агляд дакладнай биоконъюгации і сайт-спецыфічнага ўключэння, здабыта 2026-02-04).
Ўстаноўка крытэрыяў прыёмкі перад першым лотам
Кожны элемент кіравання становіцца карысным толькі тады, калі ён мае нумар. Прывяжыце дакладнасць масы да астатку, які пацвярджаецца, прывязаць парог эфектыўнасці ўключэння да раздзяляльнай здольнасці аналізу, які яго вымярае, і патрабуюць, каб эпімерны кантроль назваў эталон, з якім ён параўноўвае. Дзе пептыд з'яўляецца парэнтэральным кандыдатам, фармакапейская мяжа вызначаецца дозай: USP <85> усталёўвае мяжа эндатаксінаў = K/M, з K = 5 EU/кг/гадзіну для неінтратэкальных шляхоў і K = 0.2 ЕС/кг/гадзіну интратекально, выяўляецца ў мг або ў мл максімальнай дозы для чалавека. I Q2(R2) задае параметры праверкі, і прынцыпы MHRA ALCOA афармляюць чаканні цэласнасці даных вакол іх.
Кантроль, які не ўпісаны ў спецыфікацыі перад першым лотам, - гэта кантроль, пра які вы будзеце весці перамовы пасля адхілення.
Пашырэнне маштабу: SPSS, CFPS і рызыка дакладнасці ад партыі да партыі
Затым гэтыя элементы кантролю павінны перажыць маштабаванне, таму што маршрут, які вырабіў вашу даследчую партыю, не з'яўляецца аўтаматычна маршрутам, які вырабляе вашу клінічную партыю, і профіль рызыкі дакладнасці змяняецца разам з гэтым. Цвёрдафазны сінтэз пептыдаў працуе з міліграмамі да грамаў на партыю, з падрыхтоўчымі і вытворчымі працэсамі, якія дасягаюць дзесяткаў-сотняў грамаў, і некаторыя паслядоўнасці ў кілаграмовым маштабе. Сістэмы без клетак звычайна пастаўляюць мг на літр: аб 96 ± 3 мг/л для пераносу бялку 40 ідэнтычныя некананічныя амінакіслоты, у той час як аптымізаваны RF1-дэфіцытны экстракт дасягнуў прыкладна 1,780 ± 30 мг/л для sfGFP (літаратура па ўключэнні бясклетачных ncAA, 2020). Разрыў у маштабах паміж бясклетачнымі і цвёрдафазнымі маршрутамі рэальны, і гэта вызначае, якія рызыкі дакладнасці дамінуюць на кожным этапе.
З гэтага падзелу вынікаюць дзве рызыкі "лот-да-лота".. Пад бурштынавым падаўленнем, прадукты скарачэння і прачытання вар'іруюцца ў залежнасці ад дзяржавы, таму профіль прымешак можа змяняцца паміж цыкламі ферментацыі, нават калі мэтавая паласа выглядае нязменнай. Пры пераназначэнні сэнсавых кодонаў, суадносіны некананічных і кананічных можа змяншацца, а агульная прыбытковасць застаецца нязменнай, што азначае, што тэст выпуску толькі на ўраджайнасць не зафіксуе яго.
Практычныя наступствы: элементы кіравання дакладнасцю з папярэдняга раздзела адносяцца да спецыфікацыі выпуску для кожнай партыі, не толькі ў кваліфікацыйнай партыі.
Што спытаць у партнёра перад здзяйсненнем абавязацельстваў
Вазьміце шэсць пытанняў у размову. Якая некананічная амінакіслата і артаганальная пара? Стратэгія якога кодона, падаўленне амбра або пераназначэнне сэнсавых кодонаў? Які гаспадар або бясклетачны экстракт, і якая яго задакументаваная эфектыўнасць падаўлення? Які шлях спражэння, і ці захоўвае ён уключаны рэшту? Які з пяці элементаў кантролю дакладнасці працуе на кожнай партыі? І якія крытэрыі прыёмкі вызначаюць прахадны лот да таго, як будзе зроблены першы?
Гэта падтрымлівае структураваны працоўны працэс ад праектавання да кантролю якасці. Змены MOL можна выкарыстоўваць для ўзгаднення выбару ncAA, маршрут сінтэзу і крытэрыі аналітычнага выпуску ў адной перадачы, таму элементы кіравання, узгодненыя на этапе праектавання, з'яўляюцца сродкамі кіравання ў маштабе. Запытайце панэль кіравання на ўзроўні ўчастка ў пісьмовай форме, і параўнайце яго з вашымі ўласнымі характарыстыкамі, перш чым здзейсніць.
Распаўсюджаныя памылковыя ўяўленні аб пашыраных генетычных кодах
Чатыры памылкі досыць часта з'яўляюцца ў аглядах праграм, таму іх варта назваць непасрэдна.
Па-першае, пашыраны генетычны код азначае перапісаны геном. На практыцы гэта звычайна азначае адзін пераназначаны кодон і адна артаганальная пара, дададзены да хоста, які ў астатнім не змяніўся.
Па-другое, больш высокая эфектыўнасць уключэння азначае больш высокую чысціню. Двое могуць рухацца ў процілеглых кірунках: перапрызначэнне сэнсавых кодонаў можа ўтрымліваць выхад, а чысціня падае, таму што пераназначаны кодон цяпер даступны для амаль роднасных тРНК, а таксама для артаганальнай пары.
Па-трэцяе, любая некананічная амінакіслата можа быць уключана ў любы спосаб вытворчасці. Пазваночнік-мадыфікацыя раскол жорсткая мяжа, не перавага: рэшткі, якія змяняюць касцяк, не могуць быць устаноўлены шляхам уключэння ў рыбасомы, а рэшткі, якія патрабуюць рыбасомы, не могуць быць атрыманы SPPS.
Чацвёрты тычыцца тэставання выпуску.
⚠️ Папярэджанне: Адна цэлая маса не пацвярджае паслядоўнасць. Без іёнаў фрагментаў, якія ахопліваюць мадыфікаваны астатак, эпімер або няправільнае аб'яднанне на суседняй пазіцыі можа прайсці тую ж спецыфікацыю.
Куды ідзе панэль інструментаў
З тымі няправільнымі ўяўленнямі, кірунак руху накіраваны на выкарыстанне большай колькасці кода адначасова. Дзе раннія працы абапіраліся на адну артаганальную пару, апошнія сістэмы паказалі, што ўзаемна артаганальныя пары, якія выкарыстоўваюцца разам, могуць працаваць у адной клетцы, менавіта гэта робіць уключэнне розных некананічных амінакіслот у некалькі сайтаў варыянтам распрацоўкі, а не разумовым эксперыментам.
Другая змена — архітэктурная. Цікавасць перамясцілася ў бок бясклетачных сістэм і сістэм на аснове экстрактаў, якія пазбягаюць пастаяннай мадыфікацыі геному гаспадара, што скарачае цыкл паміж распрацоўкай канструкцыі і яе тэставаннем. Разам з тым, чатырохнуклеатыдная праца кодона пашырае даступную прастору кодона за межы стандарту 64, пашырэнне пакоя, даступнага для пераназначэння.
Шчырая агаворка нязменная: эфектыўнасць падаўлення застаецца ncAA- і кантэкстна-залежны ад паслядоўнасці, і не кожная некананічная амінакіслата сумяшчальная з кожным шляхам. Вось чаму рамкі ацэнкі ст Сінтэтычныя пептыды гэтага кіраўніцтва, а не нейкая канкрэтная пара або платформа, гэта тая частка, якую варта захаваць: пашыраныя генетычныя коды для індывідуальнага дызайну пептыдаў будуць працягваць змяняцца, але элементы кіравання, якія пацвярджаюць, што вы пабудавалі, не будуць.
Наступныя крокі
Прынясіце пэўную паслядоўнасць і канкрэтнае патрабаванне дакладнасці да першай тэхнічнай размовы аб пашыраных генетычных кодах для індывідуальнага дызайну пептыдаў, не агульны запыт. Прыведзены ніжэй кантрольны спіс для ацэнкі ператварае структуру з чатырох частак гэтага кіраўніцтва ў пытанні, на якія партнёр павінен мець магчымасць адказаць без страхавання:
-
Якая артаганальная пара, і якая эфектыўнасць падаўлення назіралася для яго ў вашым экспрэсіі?
-
Стратэгія якога кодона: падаўленне бурштыну, перапрызначэнне сэнсавых кодонаў, або квадруплетны кодон?
-
Які маршрут для гэтай паслядоўнасці: SPSS, бясклетачны сінтэз, або закісанне, а чаму менавіта той?
-
Якая хімія спалучэння, і ці застаецца ён артаганальным рэшткам, якія ўжо ўваходзяць у ланцуг?
-
Якія з пяці аналітычных элементаў кантролю дакладнасці паслядоўнасці запускаюцца для кожнай партыі, і якія крытэрыі прыёму?
Партнёр, які можа адказаць на ўсе пяць, і прама скажыце, дзе дадзены ncAA або маршрут не будзе працаваць, каштуе больш, чым ніжэйшая цытата. MOL Changes падтрымлівае такую размову паміж дызайнам і кантролем якасці 300+ функцыянальныя групы, SPPS і мікробная ферментацыя, шкала ад мг да кг, і ВЭЖХ/МС і КК стэрыльнасці ў класе 100 умовы чыстага памяшкання.
Раскрыццё інфармацыі: MOL Changes з'яўляецца спонсарам гэтага кіраўніцтва. Прыведзеныя вышэй рамкі і крытэрыі ацэнкі прадстаўлены ў мэтах даследавання і параўнання. Аб
Часта задаюць пытанні
Што такое пашыраны генетычны код?
Пашыраны генетычны код - гэта сістэма трансляцыі, у якой адзін або некалькі кодонаў былі перапрызначаны для ўказання некананічнай амінакіслоты замест стандартнай. Пераразмеркаванне носіць мэтавы, а не глабальны характар: уводзіцца артаганальная тРНК і яе пара амінаацыл-тРНК-сінтэтаза, таму сінтэтаза зараджае толькі сваю роднасную сканструяваную тРНК, пакідаючы ўласную машыну перакладу гаспадара некранутай. У стандартнай 64-кодоновой рамцы, што пакідае месца для ўстаноўкі новай хімічнай функцыі ў абранае месца без перапісвання астатняй часткі пратэёма.
Колькі некананічных амінакіслот можа быць генетычна закадзіравана?
А 2025 Ацэнка агляду паказвае, што колькасць генетычна кадзіруемых некананічных амінакіслот перавышае 300, хоць гэтая лічба апісвае агульны набор інструментаў вобласці, а не тое, што можа даць любая асобная сістэма. Практычны лік значна меншы, таму што кожны ncAA патрабуе сумяшчальнай артаганальнай пары і хоста, які дапускае перапрызначэнне. Разглядайце нумар загалоўка як верхнюю мяжу таго, што дзесьці было прадэманстравана, не як меню, з якога можна замовіць.
У чым розніца паміж падаўленнем бурштыну і пераназначэннем сэнсавых кодонаў?
Падаўленне бурштыну счытваецца праз стоп-кодон UAG і непасрэдна канкуруе з фактарам вызвалення 1, таму яго характэрны рэжым адмовы - усечаны прадукт. Перапрызначэнне сэнсавага кодона замяняе месцамі кодон, які звычайна кадуе стандартны астатак, таму яго рэжым адмовы - змешанае насельніцтва: ураджайнасць можа заставацца высокай, а чысціня падае, таму што рэшткі дзікага тыпу ўсё яшчэ ўключаны разам з ncAA. Гэтая розніца вызначае, якія элементы кіравання вам патрэбныя, так як усячэнне выяўляецца ў некранутай масе, а няправільны пераклад - не.
Якія некананічныя амінакіслоты можна атрымаць з дапамогай SPPS, а не шляхам пашырэння генетычнага кода?
β-амінакіслоты, а,α-двузамешчаных астаткаў, дэпсіпептыдныя сувязі і многія N-метыляваныя астаткі звычайна даступныя толькі з дапамогай цвёрдафазнага сінтэзу або хіміі in vitro, таму што рыбасома не будзе прымаць іх у якасці субстратаў. Генетычна кадзіруемы клас больш вузкі: мадыфікацыі бакавых ланцугоў, пабудаваныя на асновы α-амінакіслот. Селенацыстэін - натуральнае выключэнне, кадзіруецца з дапамогай уласнай спецыяльнай машыны, а не праз інжынерную пару. Вытворчасць пептыдаў
Як вы пацвярджаеце, што некананічная амінакіслата была ўключана ў меркаванае месца?
Пацверджанне патрабуе дакладнай масы плюс паслядоўна-лакалізуючыя іёны фрагментаў, якія ахопліваюць мадыфікаваны астатак, звычайна з дапамогай ВХ-МС/МС, разам з колькасным вызначэннем эфектыўнасці ўключэння і кантролем эпімера ў параўнанні з сінтэтычным эталонам. Адной толькі непашкоджанай масы недастаткова, таму што яна не можа адрозніць меркаваны сайт ад пазіцыйнага ізамера або дэлецыйнага варыянта з падобнай масай. Фрагментныя іёны - гэта тое, што лакалізуе рэшту; маса толькі кажа вам, што нешта змянілася.
Ці могуць некананічныя амінакіслоты быць уключаны ў больш чым адным месцы?
так, але ўключэнне некалькіх сайтаў памнажае аналітычную нагрузку, а не проста паўтарае працоўны працэс на адным сайце. Кожная дадатковая пазіцыя дадае сваю падзею падаўлення або перапрызначэння, і доля прадукту, які нясе ncAA на кожным прызначаным месцы, падае па меры назапашвання пазіцый, таму папуляцыя становіцца размеркаваннем часткова мадыфікаваных відаў. Вам трэба загадзя вырашыць, ці вырашае аналіз такое размеркаванне, таму што метад, правераны для аднаго сайта, не будзе аўтаматычна паведамляць пра чатыры.
Ці магчыма пашырэнне генетычнага кода для вытворчасці пептыдаў на клінічнай стадыі?
Маштабаванасць залежыць ад таго, які маршрут вы абралі, і два маршруты церпяць няўдачу па-рознаму. Бясклетачны сінтэз бялку прадэманстраваў выхады ў дыяпазонах, пра якія паведамлялася раней у гэтым артыкуле, але гэтыя лічбы паходзяць з вызначаных эксперыментальных сістэм і не пераходзяць аўтаматычна ў працэс GMP. Цвёрдафазны сінтэз больш прадказальна маштабуецца для больш кароткіх паслядоўнасцей, але не можа дасягнуць рэшткаў, якія адносяцца толькі да SPPS. Для клінічнай стадыі працы, практычнае пытанне заключаецца не ў тым, ці маштабуецца хімія, а ў тым, ці можа ваш аналітычны пакет даказаць дакладнасць паслядоўнасці ад партыі да партыі ў такім маштабе.
Заключэнне
Выбраная вамі кадонная стратэгія вызначае рэжым адмовы, які вы атрымаеце ў спадчыну, таму кантрольны пакет, які даказвае дакладнасць паслядоўнасці, павінен быць указаны перад першай партыяй, не пасля гэтага. Гэта тэма, якая праходзіць праз гэта кіраўніцтва: пашыраныя генетычныя коды для індывідуальнага дызайну пептыдаў з'яўляюцца праблемай ацэнкі, перш чым праблемай сінтэзу.
Чатыры рашэнні, якія партнёр павінен быць у стане абараніць у пісьмовай форме, - гэта некананічная амінакіслата і яе паводзіны падаўлення ў кантэксце вашай паслядоўнасці, дызайн бібліятэкі і як ён абмяжоўвае маршрут, хімія кан'югацыі і тое, што яна пакідае некранутым, і аналітычныя крытэрыі прыняцця з іх метадамі і межамі. Кожны звужае наступны.
Напрамак руху - да ўзаемна артаганальных пар, якія выкарыстоўваюцца разам, бясклетачныя сістэмы і сістэмы на аснове экстрактаў, якія пакідаюць геном гаспадара некранутым, і чатырохнуклеатыдныя кадоны, якія пашыраюць даступную прастору кадонаў за межы стандарту 64. Шчырая агаворка заключаецца ў тым, што эфектыўнасць падаўлення застаецца залежнай ад ncAA і навакольнага паслядоўнасці, і не кожны ncAA сумяшчальны з кожным маршрутам.
Выкарыстоўвайце кантрольны спіс у Наступных кроках у якасці асновы для вашай першай тэхнічнай размовы.
Пра аўтара: [Імя аўтара], [паўнамоцтвы], піша аб распрацоўцы пептыдаў і стратэгіі аналітычнага кантролю для змяненняў MOL.
Раскрыццё інфармацыі: MOL Changes забяспечвае пептыдны дызайн, службы сінтэзу і аналітыкі, уключаючы магчымасці, якія абмяркоўваюцца ў гэтым кіраўніцтве.