Kaj se razširjene genetske kode za oblikovanje peptidov po meri dejansko spremenijo
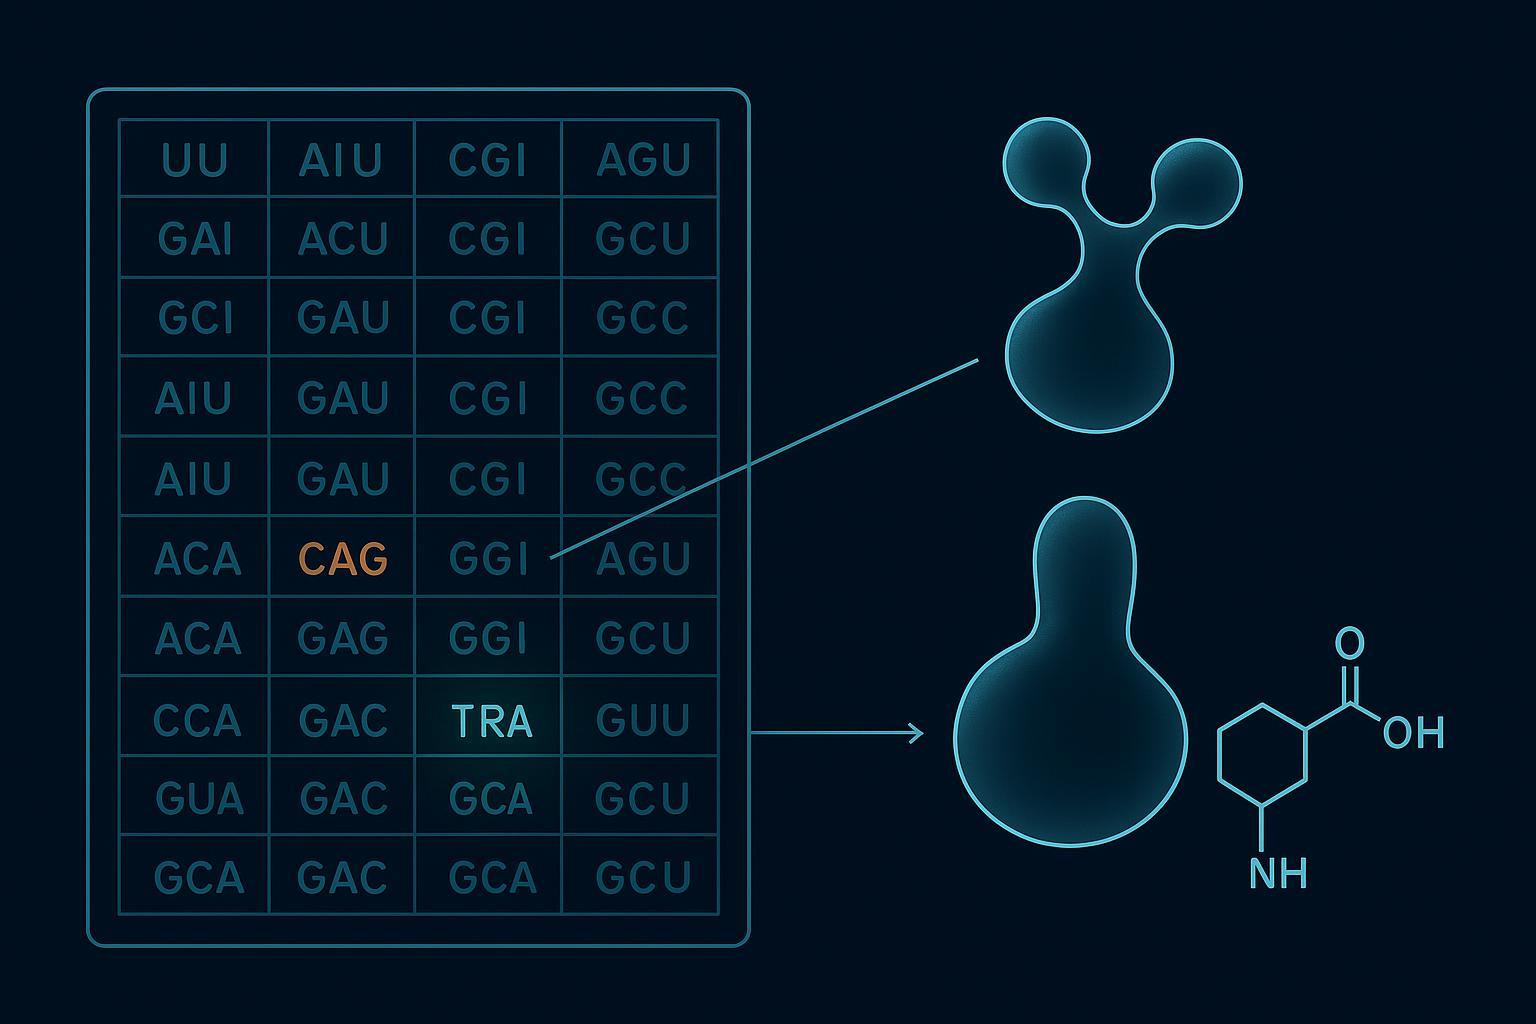
Standardna genetska koda dodeljuje 64 kodoni: 61 čutnih kodonov in 3 stop kodoni, in vsak čutni kodon določa enega od 20 kanonične aminokisline (Addgene Genetic Code Expansion zbirka, nazadnje pregledano 19 novembra 2025). Razširjena genetska koda prepiše to dodelitev. Eden ali več kodonov se preusmeri na nekanonično aminokislino s prerazporeditvijo kodona, nameščen specifično na mestu s pravokotno tRNA / aminoacil-tRNA sintetazni par, ki polni samo lastno zgrajeno tRNA in nič drugega v gostitelju.
Ta definicija je manj pomembna kot način napake, ki ga zaklene. Jantar (UAG) supresija se bere preko stop kodona, tako neposredno tekmuje s faktorjem sproščanja 1. Ko zatiranje izgubi to tekmo, rezultat je predčasna prekinitev in okrnjen produkt, izguba, ki so jo prekodirani ali RF1-izločeni gostitelji posebej zasnovani za zmanjšanje (Naravna biotehnologija, 11 septembra 2024). Prerazporeditev zaznavnih kodonov ne uspe drugače: ponovno dodeljeni kodon še vedno tekmuje s svojim prvotnim pomenom, tako da izdelek prispe kot mešanica, ki vsebuje kanonične napačne vključitve in ne kratke verige.
Ključ za s seboj: Zatiranje jantarja ne uspe s prirezovanjem; prerazporeditev smiselnega kodona pri mešanju ne uspe. Donos in čistost se torej gibata neodvisno, in način napake, ki ga podedujete, je nastavljen s strategijo kodona, ki jo izberete, ne glede na to, kako usposobljen je dobavitelj.
[DIAGRAM: označena tabela s 64 kodoni z označenim UAG in enim čutnim kodonom, vsak s puščico na svoj ortogonalni par tRNA/sintetaza]
Zakaj se je orodjarna premikala hitreje kot ocene
Referenčni material, po katerem posega večina ekip, zaostaja za kemijo. A 2025 pregled postavi štetje na konec 300 nekanonične aminokisline, ki se uspešno uporabljajo pri širjenju genetske kode (Nature Communications, 29 septembra 2025), medtem ko je najbolj citirana recenzija v rezultatih iskanja na to temo iz leta 2014. Viri na ravni plazmidov so vedno bližje tempu: Približno razširjeni seznami zbirk GCE podjetja Addgene 150 plazmidi sintetaze in 26 bakterijski sevi, z vsebino, nazadnje pregledano dne 19 novembra 2025 (Addgene). Če je bil vaš ožji izbor zgrajen na podlagi desetletja starega pregleda, opisuje manjši komplet orodij od obstoječega.
Kako razširjene genetske kode preoblikujejo nekanonično izbiro aminokislin
Ta ista kodonska strategija določa tudi pogoje nekanoničnega izbora aminokislin, kje izbira para, ne izbira ostankov, je zavezujoča omejitev. Štirje dejavniki odločajo, kateri par tRNA-sintetaze lahko uporabite: prileganje podlage, kodonska strategija, gostiteljski organizem, in ali morate kodirati več kot en ncAA hkrati. Preglejte jih v tem vrstnem redu in večina navidezne svobode v katalogu ostankov izgine.
Prevladujeta dve platformi. The Methanocaldococcus jannaschii Par TyrRS/tRNA^Tyr sprejme tirozinu podobne in aromatske stranske verige. Ogrodje pirolizil-tRNA sintetaze in njegove razvite različice zavzamejo lizinu podobne in obsežne ostanke, in dopušča večjo strukturno raznolikost. Upoštevajte, da je RF1 knockout strategija gostitelja, ki poveča učinkovitost zatiranja, ne tretji par.
|
Storitve Funkcija |
M. jannaschii TyrRS/tRNA^Tyr |
PylRS/tRNA^Pyl različice |
|---|---|---|
|
Obseg substrata |
Podobno tirozinu, aromatično |
Podobno lizinu, zajetno, strukturno raznolika |
|
Strategija kodona |
Jantar (UAG) zatiranje |
Jantar, oker, ali prerazporeditev smiselnega kodona |
|
Združljivost gostitelja |
E. coli, kvas, celice sesalcev |
E. coli, celice sesalcev, brezcelični sistemi |
|
Primernost za multipleksiranje |
Omejeno; toleranca prekrivajoče se podlage |
Bolj primeren za ortogonalno razširitev para |
Multipleksiranje je tisto, kjer se polje premika. A 2024 opredeljena strategija stiskanja kodona 12 medsebojno pravokotni pari tRNA-sintetaze, združljivi z znanim naborom virov GCE, kar je pomembno, če vaša zasnova potrebuje dva ali več različnih ncAA v eni verigi.
Potem je tu še meja med tem, kar lahko namesti ribosom, in tem, kar lahko samo SPPS. Modifikacije stranske verige na hrbtenici α-aminokisline so združljive z GCE. β-aminokisline, a,α-disubstituirani ostanki, v depsipeptidih, veliko N-metiliranih ostankov pa ne; so samo SPPS ali samo in vitro. Če je vaš ciljni ostanek na tem seznamu, nobena izbira para ga ne bo rešila.
Učinkovitost zatiranja branja Iskreno
Učinkovitost zatiranja je razpon, in obseg pomeni le nekaj s priloženim sevom in reporterjem. Prejšnji sistemi so zagotavljali približno 10–20 % za en sam jantarni kodon. Optimizirani in razviti sistemi dosežejo 50–117 %, odvisno od konteksta, in 76–104 % pri sevu C321 z izbrisanim RF1. Te številke opisujejo različne konstrukte, torej niso lestvica, po kateri se lahko povzpnete, če izberete najvišjo številko.
Učinkovitost vključitve tudi ni enaka metrika kot skoraj sorodno branje. Readthrough teče približno 1% v Top10, približno 3% v BL21, in do 17% v MG1655, sega tako visoko kot 47.5% na danem jantarnem mestu v ozadju, izbrisanem z RF1. Ena meri, koliko ncAA namestite; drugi meri, koliko napačne aminokisline vgradite zraven.
Praktična posledica: specifikacija, ki navaja le odstotek, brez imenovanja seva in poročevalca, ni specifikacija. Vprašajte za oboje, preden sprejmete podatek o učinkovitosti.
Oblikovanje peptidnih knjižnic z nekanonskimi aminokislinami
Ko je par določen, prikazovalna platforma, ki jo izberete, določa zgornjo mejo nekanoničnih aminokislin, ki jih lahko vaša knjižnica sploh vsebuje. Prikaz mRNA in RaPID sta najvišja pri toleranci ncAA, ker celoten cikel poteka in vitro: flexizyme neposredno napolni tRNA, tako ribosomu nikoli ni treba tekmovati z gostiteljsko sintetazo, in ostanki, spremenjeni v hrbtenici, ostanejo v igri. Prikaz ribosomov je visoko uvrščen, vendar odvisen od sistema, ker se toleranca spreminja z lizatom in nastavitvijo faktorja sproščanja. Prikaz fagov ostaja delujoč, ker lahko prikaz faga prenaša nekanonične ostanke prek pomožnega faga, ki kodira jantar, čeprav gostiteljski stroj omejuje, kateri ostanki preživijo. Prikaz kvasa je najbolj omejen od štirih.
Položaj je pomemben enako kot platforma. Pozicijsko in globalno diverzifikacija ncAA je razdelila prostor oblikovanja: eno ali nekaj definiranih mest ustreza mehanični sondi ali enemu konjugacijskemu ročaju in jih je enostavno označiti, medtem ko prodorna substitucija ustreza pregledom stabilnosti ali odpornosti na proteazo in je veliko težje preveriti ostanke za ostanki.
Kjer se oblikovanje knjižnice sreča z izbiro poti
Knjižnice, zgrajene okoli hrbtenice spremenjenega ostanka, sploh ni mogoče ustvariti z razširitvijo genetske kode, zato je treba odločitev o prikazovanju in proizvodnji sprejeti skupaj in ne zaporedoma. Izplačilo stabilnosti je tisto, zaradi česar je to omejitev vredno sprejeti. V eni seriji inhibitorjev, ciklični ostanki β2,3 so podaljšali serumski razpolovni čas 168 ure ob 37 °C v človeškem serumu, proti 4.6 ur za ustrezno različico alanina; drugi oder v istem delu je dosegel 48 ure proti Trgovina 4.2 ure. N-metilacija je podaljšala stabilnost proteinaze-K iz 6 minut do približno 110 minut v lastnem testu, in zamenjave D-aminokislin so premaknile razpolovno dobo z minut na ure v njihovih. Nobena od teh številk ne posplošuje peptidov kot razreda: vsak pripada svojemu ogrodju in testu. Praktična posledica je ozka in trdna. Če vaš cilj stabilnosti zahteva spremembo hrbtenice, pot je izbrana za vas, in knjižnica mora biti že od samega začetka zasnovana znotraj te meje.
Strategije konjugacije, specifične za mesto, ki jih omogočajo razširjene kode
Ta odločitev o poti vodi neposredno v konjugacijo, kjer ročaj ncAA kupi pozicijsko kontrolo, s katero se noben kanonični ostanek ne more kosati, in spremeni način okvare, namesto da odpravi okvaro. Bioortogonalni ročaj, nameščen na določenem položaju, zagotavlja najvišjo pozicijsko kontrolo in najmanjšo neciljno obremenitev katere koli strategije peptidne konjugacije, specifične za mesto., vendar je napaka, ki jo nato obvladate, nepopolna vključitev ali nezreagiran začetni material, ne napačno ciljanje. Cistein je kemoselektiven in poceni, še čezmerno alkiliranje, oksidacija in disulfidno mešanje sta rutinska. Spajanje lizina daje mešanice regioizomerov. N-terminalna kemija se izboljša glede na lizin, vendar ostane zaporedje- in odvisno od konteksta.
|
kemija |
Selektivnost |
Kinetika |
Baker |
Način okvare, ki ga povzroči |
|---|---|---|---|---|
|
SPAAC (azid + ciklooktin) |
visoko |
Zmerno |
Ni potrebno |
Ročaj iz nereagiranega azida |
|
CuAAC (azid + alkin) |
visoko |
hitro |
Obvezno |
Stranske reakcije, ki jih povzroča baker |
|
Tetrazin-TCO |
Sinteza peptidov visoko |
Najhitrejši |
Ni potrebno |
Hidroliziran tetrazin |
|
Elektrofilna ciklizacija ncAA |
Visoka, ko je geometrija vnaprej organizirana |
Intramolekularno |
Ni potrebno |
Konkurenčni medmolekularni produkt |
Jedilnik je kratek. SPAAC ne vsebuje bakra in je enostaven za uporabo; CuAAC je najbolj robusten, vendar je občutljivost na baker odgovorna; tetrazin-TCO nalepke najhitreje; in elektrofilna ciklizacija ncAA je intramolekularna in čista, ko je geometrija vnaprej organizirana, kot poročajo za dvojno bioortogonalni ročaji ncAA (Nature Communications, 2023).
Izbira med bioortogonalno konjugacijo in nativno kemično ligacijo
Naravna kemična ligacija in konjugacija ncAA rešujeta različne probleme in nista nadomestka. NCL je pot, ko cilj zahteva spremembo hrbtenice, D-ostanek, ali segment, ki ga noben ortogonalni par ne bo zaračunal; njegov predpogoj je sposoben ligacijski spoj in tioestrski segment. Konjugacija ncAA je pot, ko je tarča standardni peptid α-hrbtenice, ki potrebuje eno definirano pritrdilno točko, in njegov predpogoj je par, katerega obseg substrata sprejema ročaj in gostitelja ali izvleček, ki zavira konkurenčno kanonično branje.
Praktična posledica: sprejme odločitev o konjugaciji hkrati z odločitvijo ncAA. Ročaj, ki ga izbrani par ne bo zaračunal, je prenova, ni zamenjava.
Analitične kontrole, ki dokazujejo zvestobo zaporedja
Ne glede na pot konjugacije, za katero se odločite, kontrolni paket je tisto, kar pretvori sintezno trditev v ubranljivo specifikacijo, in mora biti zasnovan, preden se naredi prvi lot, ni sestavljen po odstopanju. Za kateri koli peptid, ki nosi nekanoničen ostanek, Analitični nadzor zvestobe zaporedja temelji na petih elementih: potrditev natančne mase intaktnega peptida in ionov fragmentov, ki lokalizirajo zaporedje, ki zajemajo modificirani ostanek, z LC-MS/MS; kvantifikacija učinkovitosti vgradnje, kar pomeni delež peptida, ki nosi ncAA, v primerjavi s kanoničnimi napačno vključenimi ali neoznačenimi izdelki; kontrola diastereomera/epimera glede na sintetično referenco ali ortogonalno kiralno metodo ali metodo retencijskega časa, ker standardna LC-MS pogosto ne more razlikovati epimerjev; validacija ortogonalnega sistema prevajanja z negativnimi kontrolami in brez zaznavnega branja izven cilja; in, za NCAA z oznako elementov, kot so različice selena ali bora, analiza aminokislin ali ICP-MS (2026 pregled natančne biokonjugacije in vključevanja, specifičnega za mesto, pridobljeno 2026-02-04).
Nastavitev meril sprejemljivosti pred prvo serijo
Vsak kontrolnik postane uporaben šele, ko nosi številko. Natančnost mase povežite z ostankom, ki ga potrdite, povezati prag učinkovitosti vključitve z močjo ločljivosti testa, ki jo meri, in od nadzora epimera zahteva, da imenuje referenčni standard, s katerim se primerja. Kadar je peptid parenteralni kandidat, farmakopejska meja izhaja iz odmerka: USP <85> nastavi mejo endotoksina = K/M, s K = 5 EU/kg/uro za neintratekalne poti in K = 0.2 EU/kg/uro intratekalno, izraženo na mg ali na ml največjega odmerka za človeka. I Q2(R2) nastavi parametre validacije, in načela MHRA ALCOA oblikujejo pričakovanja glede celovitosti podatkov okoli njih.
Kontrola, ki ni zapisana v specifikaciji pred prvo serijo, je kontrola, o kateri se boste pogajali po odstopanju.
Povečanje velikosti: SPSS, CFPS in tveganje zvestobe lot-to-lot
Te kontrole morajo nato preživeti širitev, ker pot, ki je ustvarila vašo raziskovalno serijo, ni samodejno pot, ki je proizvedla vašo klinično serijo, in profil tveganja zvestobe se spreminja s tem. Sinteza peptidov v trdni fazi poteka pri miligramih do gramih na serijo, s pripravljalnimi in industrijskimi delovnimi tokovi, ki dosegajo desetine do stotine gramov, in nekaj zaporedij v kilogramsko lestvico. Brezcelični sistemi običajno oddajo mg na liter: približno 96 ± 3 mg/L za prenos beljakovin 40 identične nekanonične aminokisline, medtem ko je optimiziran ekstrakt s pomanjkanjem RF1 dosegel približno 1,780 ± 30 mg/L za sfGFP (literatura o vključitvi ncAA brez celic, 2020). Razkorak med brezceličnimi in trdnofaznimi potmi je resničen, in oblikuje, katera tveganja zvestobe prevladujejo na vsaki stopnji.
Iz te delitve izhajata dve veliki nevarnosti. Pod zatiranjem jantarja, izdelki za obrezovanje in branje se razlikujejo glede na državo gostiteljico, tako se lahko profil nečistoč spreminja med fermentacijskimi poteki, tudi če je ciljni pas videti nespremenjen. Pod prerazporeditvijo smiselnega kodona, razmerje med nekanoničnim in kanoničnim lahko odstopa, medtem ko skupni donos ostane enak, kar pomeni, da ga preizkus sproščanja samo z donosom ne bo ujel.
Praktična posledica: kontrole zvestobe iz prejšnjega razdelka spadajo v specifikacijo izdaje za vsako serijo, ne le v kvalifikacijski seriji.
Kaj vprašati partnerja, preden se zavežete
V pogovor vzemite šest vprašanj. Katera nekanonična aminokislina in ortogonalni par? Katera strategija kodona, supresija jantarja ali prerazporeditev smiselnega kodona? Kateri gostiteljski ali brezcelični ekstrakt, in kakšna je njegova dokumentirana učinkovitost zatiranja? Katera pot konjugacije, in ali ohrani vgrajeni ostanek? Kateri od petih kontrol zvestobe deluje na vsaki seriji? In katera merila sprejemljivosti določajo prehodno serijo, preden se naredi prva?
To podpira strukturiran potek dela od načrtovanja do QC. Spremembe MOL lahko uporabite za uskladitev izbire ncAA, sintezna pot in merila analitične sprostitve v enem prenosu, zato so kontrole, dogovorjene v fazi načrtovanja, kontrole, ki se izvajajo v obsegu. Zahtevajte pisno nadzorno ploščo na ravni parcele, in ga primerjajte z lastnimi specifikacijami, preden se zavežete.
Pogoste napačne predstave o razširjenih genetskih kodah
Štiri napake se v pregledih programov pojavljajo dovolj pogosto, da jih je vredno neposredno poimenovati.
Prvi je, da razširjena genetska koda pomeni prepisan genom. V praksi običajno pomeni en prerazporejen kodon in en ortogonalni par, dodan gostitelju, ki je sicer nespremenjen.
Drugič, večja učinkovitost vgradnje pomeni večjo čistost. Oba se lahko premikata v nasprotnih smereh: prerazporeditev smiselnega kodona lahko zadrži donos, medtem ko čistost pade, ker je ponovno dodeljeni kodon zdaj na voljo za skoraj sorodne tRNA kot tudi za ortogonalni par.
Tretjič je, da je mogoče vsako nekanonično aminokislino vključiti v katero koli proizvodno pot. Razdelitev modifikacije hrbtenice je trda meja, ni prednost: ostankov, ki spreminjajo hrbtenico, ni mogoče namestiti z ribosomsko vključitvijo, in ostankov, ki zahtevajo ribosome, ne more proizvesti SPPS.
Četrti se nanaša na testiranje izdaje.
⚠️ Opozorilo: Ena sama nedotaknjena masa ne potrjuje zaporedja. Brez fragmentiranih ionov, ki zajemajo modificirani ostanek, epimer ali napačna vključitev na bližnjem položaju lahko prestane isto specifikacijo.
Kam je usmerjena orodjarna
Z razčiščenimi napačnimi predstavami, smer potovanja je proti uporabi več kode hkrati. Kjer se je zgodnje delo oprlo na en sam ortogonalni par, najnovejši sistemi so pokazali, da lahko medsebojno pravokotni pari, ki se uporabljajo skupaj, delujejo v isti celici, zaradi česar je vključevanje različnih nekanoničnih aminokislin na več mestih bolj oblikovalska možnost kot miselni eksperiment.
Druga izmena je arhitekturna. Zanimanje se je premaknilo k brezceličnim sistemom in sistemom na osnovi izvlečkov, ki se izogibajo trajni spremembi gostiteljskega genoma, ki skrajša cikel med načrtovanjem konstrukta in njegovim testiranjem. Poleg tega, delo kodona s štirimi nukleotidi razširja razpoložljivi kodonski prostor preko standarda 64, razširitev prostora, ki je na voljo za prerazporeditev.
Iskreno opozorilo je nespremenjeno: učinkovitost zatiranja ostaja ncAA- in odvisno od konteksta zaporedja, in ni vsaka nekanonična aminokislina združljiva z vsako potjo. Zato je ocenjevalni okvir v Sintetični peptidi ta vodnik, namesto katerega koli posebnega para ali platforme, je del, ki ga je vredno obdržati: razširjene genetske kode za oblikovanje peptidov po meri se bodo spreminjale, vendar kontrole, ki dokazujejo, kaj ste zgradili, ne bodo.
Naslednji koraki
V prvi tehnični pogovor o razširjenih genetskih kodah za oblikovanje peptidov po meri vnesite določeno zaporedje in posebno zahtevo glede zvestobe, ni splošna poizvedba. Spodnji kontrolni seznam ocenjevanja spremeni štiridelni okvir v tem vodniku v vprašanja, na katera bi moral biti partner sposoben odgovoriti brez varovanja pred tveganjem.:
-
Kateri ortogonalni par, in kakšno učinkovitost zatiranja so opazili pri vašem gostitelju izražanja?
-
Katera strategija kodona: zatiranje jantarja, prerazporeditev smiselnega kodona, ali četverni kodon?
-
Katera pot za to zaporedje: SPSS, brezcelična sinteza, ali fermentacijo, in zakaj prav ta?
-
Katera konjugacijska kemija, in ali ostane pravokoten na ostanke, ki so že v verigi?
-
Katere od petih analitičnih kontrol zvestobe zaporedja se izvajajo na lot, in kakšna so merila za sprejem?
Partner, ki zna odgovoriti na vseh pet, in jasno povejte, kje dani ncAA ali pot ne bo delovala, je vredno več kot nižja ponudba. MOL Changes podpira tovrstne pogovore med načrtovanjem in nadzorom kakovosti 300+ funkcionalne skupine, SPPS in mikrobna fermentacija, lestvica od mg do kg, in HPLC/MS in sterilnost QC pod razredom 100 pogoji čistih prostorov.
Razkritje: MOL Changes je sponzor tega vodnika. Zgornji okvir in merila za vrednotenje so predstavljeni za namene raziskovanja in primerjave. O tem
Pogosto zastavljena vprašanja
Kaj je razširjena genetska koda?
Razširjena genetska koda je prevodni sistem, v katerem je bil eden ali več kodonov prerazporejenih, da določijo nekanonično aminokislino namesto standardne. Prerazporeditev je ciljna in ne globalna: uvedena sta ortogonalna tRNA in njen sintetazni par aminoacil-tRNA, tako da sintetaza napolni samo svojo sorodno konstruirano tRNA, gostiteljev prevajalski stroj ostane nedotaknjen. V standardnem okvirju s 64 kodoni, ki pušča prostor za namestitev nove kemične funkcije na izbrano mesto brez prepisovanja preostalega dela proteoma.
Koliko nekanoničnih aminokislin je lahko genetsko kodiranih?
A 2025 pregledna ocena postavlja število genetsko ukodiranih nekanoničnih aminokislin čez 300, čeprav ta številka opisuje kumulativno orodje na tem področju in ne tistega, kar lahko zagotovi kateri koli posamezen sistem. Praktično število je veliko manjše, ker vsak ncAA potrebuje združljiv ortogonalni par in gostitelja, ki dopušča prerazporeditev. Naslovno številko obravnavajte kot zgornjo mejo tega, kar je bilo nekje prikazano, ne kot meni, iz katerega lahko naročite.
Kakšna je razlika med supresijo jantarja in prerazporeditvijo smiselnega kodona?
Zatiranje jantarja bere prek stop kodona UAG in neposredno tekmuje s faktorjem sproščanja 1, zato je njegov značilni način okvare okrnjeni produkt. Prerazporeditev zaznavnega kodona zamenja kodon, ki običajno kodira standardni ostanek, zato je njegov način odpovedi mešana populacija: donos lahko ostane visok, medtem ko čistost pade, ker je ostanek divjega tipa še vedno vključen poleg ncAA. Ta razlika določa, katere kontrole potrebujete, ker se okrnitev pokaže v nedotaknjeni masi, medtem ko se napačen prevod ne.
Katere nekanonične aminokisline lahko proizvedemo s SPPS in ne z razširitvijo genetske kode?
β-aminokisline, a,α-disubstituirani ostanki, depsipeptidne povezave in številni N-metilirani ostanki so običajno dostopni samo s sintezo v trdni fazi ali in vitro kemijo, ker jih ribosom ne bo sprejel kot substrate. Gensko ukodljivi razred je ožji: modifikacije stranske verige, zgrajene na hrbtenici α-aminokisline. Selenocistein je naravna izjema, kodiran prek lastnega namenskega stroja in ne prek inženirskega para. Proizvodnja peptidov
Kako potrdite, da je bila nekanonična aminokislina vključena na predvideno mesto?
Za potrditev je potrebna natančna masa plus ioni fragmentov, ki lokalizirajo zaporedje, ki zajemajo spremenjeni ostanek, tipično z LC-MS/MS, skupaj s kvantificiranjem učinkovitosti vgradnje in kontrolo epimera glede na sintetično referenco. Nepoškodovana masa sama po sebi ne zadošča, ker ne more razlikovati predvidenega mesta od pozicijskega izomera ali delecijske različice podobne mase. Fragmentni ioni so tisti, ki lokalizirajo ostanek; maša ti samo pove nekaj spremenjenega.
Ali se lahko nekanonične aminokisline vključijo na več kot eno mesto?
ja, vendar vključitev na več lokacijah pomnoži analitično breme namesto zgolj ponavljanja poteka dela na enem mestu. Vsak dodatni položaj doda svoj dogodek izločitve ali prerazporeditve, in delež izdelka, ki nosi ncAA na vsakem predvidenem mestu, pada, ko se položaji kopičijo, tako populacija postane distribucija delno spremenjenih vrst. Vnaprej se morate odločiti, ali test razreši to porazdelitev, ker metoda, potrjena za eno stran, ne bo samodejno poročala o štirih.
Ali je razširitev genetske kode razširljiva za proizvodnjo peptidov v klinični fazi?
Razširljivost je odvisna od izbrane poti, and the two routes fail differently. Cell-free protein synthesis has demonstrated yields in the ranges reported earlier in this article, but those figures come from defined experimental systems and do not transfer automatically to a GMP process. Solid-phase synthesis scales more predictably for shorter sequences but cannot reach the residues that are SPPS-only. For clinical-stage work, the practical question is not whether the chemistry scales but whether your analytical package can prove lot-to-lot sequence fidelity at that scale.
Zaključek
The codon strategy you choose determines the failure mode you inherit, so the control package that proves sequence fidelity has to be specified before the first lot, ne po tem. That is the thread running through this guide: razširjene genetske kode za načrtovanje peptidov po meri so problem vrednotenja, preden postanejo problem sinteze.
Štiri odločitve, ki jih mora biti partner sposoben pisno zagovarjati, so nekanonična aminokislina in njeno supresijsko vedenje v kontekstu vašega zaporedja, zasnovo knjižnice in kako omejuje pot, konjugacijsko kemijo in kaj pušča nedotaknjeno, in merila analitične sprejemljivosti z njihovimi metodami in omejitvami. Vsako zoži naslednjega.
Smer vožnje je proti medsebojno pravokotnim parom, ki se uporabljajo skupaj, brezcelični sistemi in sistemi na osnovi izvlečkov, ki puščajo gostiteljski genom nedotaknjen, in kodoni s štirimi nukleotidi, ki razširijo razpoložljivi kodonski prostor mimo standarda 64. Iskreno opozorilo je, da je učinkovitost zatiranja odvisna od ncAA in okoliškega zaporedja, in ni vsak ncAA združljiv z vsako potjo.
Uporabite kontrolni seznam v Naslednjih korakih kot osnovo za svoj prvi tehnični pogovor.
O avtorju: [Ime avtorja], [poverilnice], piše o načrtovanju peptidov in strategiji analitičnega nadzora za spremembe MOL.
Razkritje: MOL Changes zagotavlja peptidno zasnovo, sintezne in analitične storitve, vključno z zmogljivostmi, obravnavanimi v tem priročniku.