Mitä mukautetun peptidisuunnittelun laajennetut geneettiset koodit todella muuttuvat
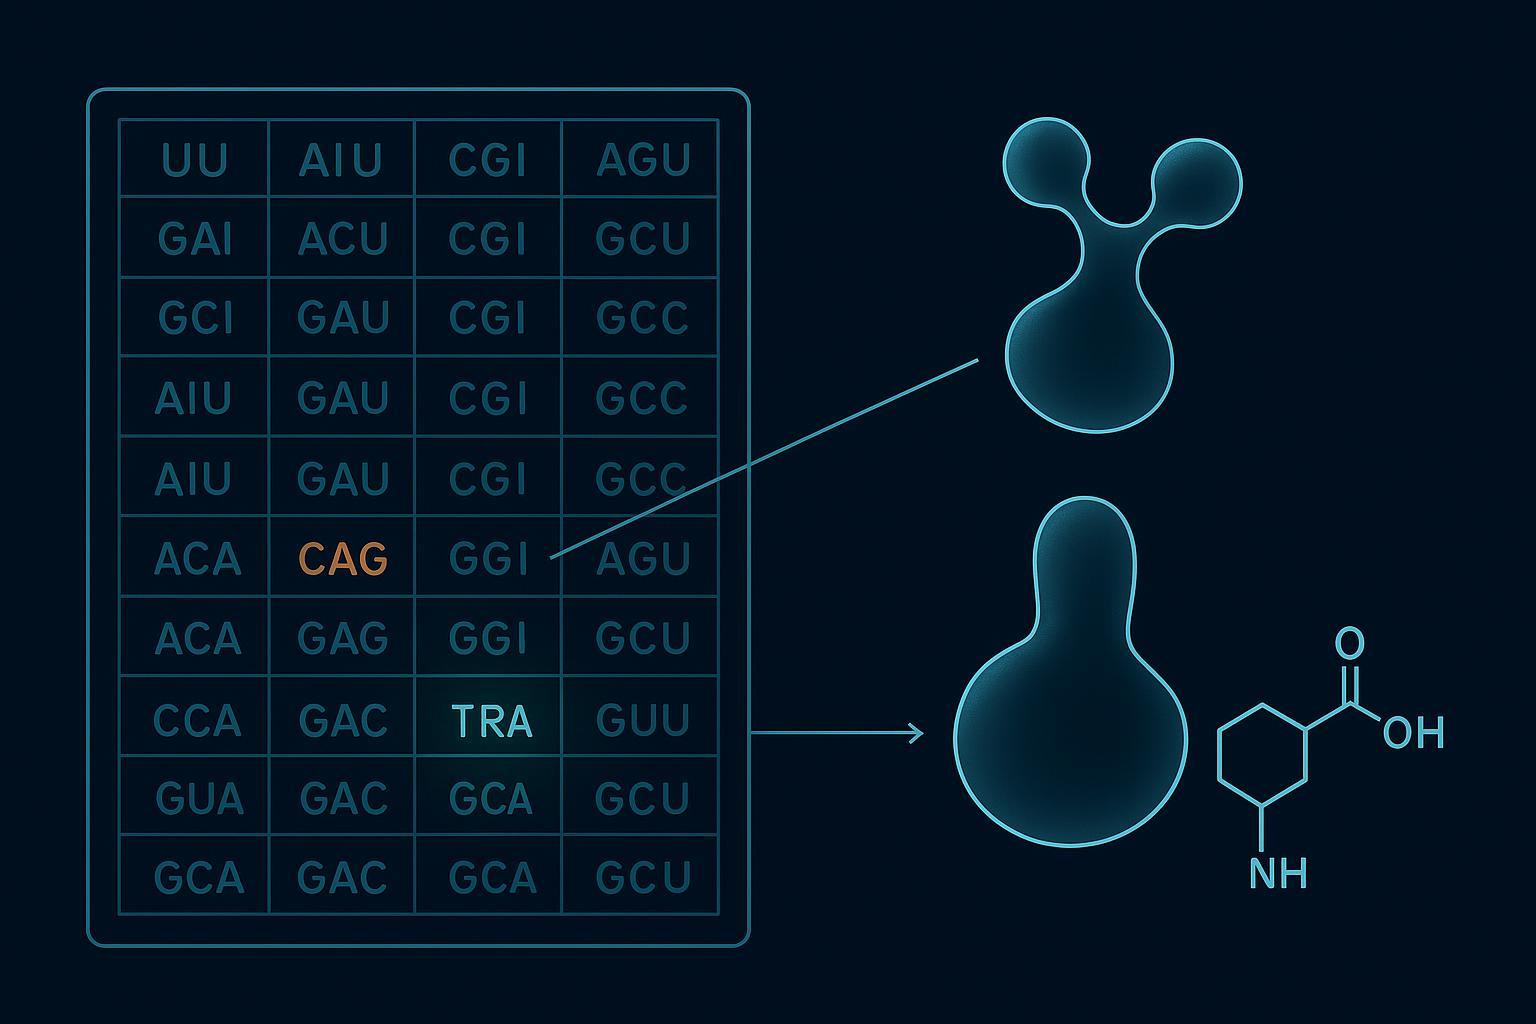
Normaali geneettinen koodi määrittää 64 kodonit: 61 aistikodonit ja 3 stop kodonit, ja jokainen sense-kodoni määrittää yhden niistä 20 kanoniset aminohapot (Addgene Genetic Code Expansion -kokoelma, viimeksi tarkistettu 19 marraskuu 2025). Laajennettu geneettinen koodi kirjoittaa tämän tehtävän uudelleen. Yksi tai useampi kodoni ohjataan ei-kanoniseen aminohappoon kodonin uudelleenmäärityksellä, asennettu paikkaspesifisesti ortogonaalisen tRNA:n avulla / aminoasyyli-tRNA-syntetaasipari, joka lataa vain omaa muokattua tRNA:ta eikä mitään muuta isännässä.
Tällä määritelmällä on vähemmän merkitystä kuin vikatilalla, jonka se lukitsee. Keltainen (UAG) suppressio lukee stop-kodonin, joten se kilpailee suoraan irrotustekijän kanssa 1. Kun tukahduttaminen häviää sen kilpailun, tuloksena on ennenaikainen lopettaminen ja katkaistu tuote, häviö, jota uudelleenkoodatut tai RF1-knockout-isännät on erityisesti suunniteltu vähentämään (Luonnon biotekniikka, 11 syyskuu 2024). Sense-kodonin uudelleenmääritys epäonnistuu eri tavalla: uudelleen osoitettu kodoni kilpailee edelleen alkuperäisen merkityksensä kanssa, joten tuote saapuu seoksena, joka sisältää kanonisia virheellisiä aineita, eikä lyhytketjuisena.
Key Takeaway: Keltainen vaimennus epäonnistuu katkaisussa; sense-kodonin uudelleenmääritys epäonnistuu sekoituksen vuoksi. Sato ja puhtaus liikkuvat siten itsenäisesti, ja perimäsi vikatila määräytyy valitsemasi kodonistrategian mukaan, ei sen perusteella, kuinka taitava toimittaja on.
[KAAVIO: merkitty 64 kodonin taulukko, jossa on UAG ja yksi sense-kodoni korostettuna, kukin nuoli sen ortogonaaliseen tRNA/syntetaasi-pariin]
Miksi Toolbox liikkui nopeammin kuin arvostelut
Useimmat joukkueet tavoittelevat viitemateriaalia kemian viiveellä. A 2025 arvostelu saa luvun loppumaan 300 ei-kanonisia aminohappoja, joita käytetään menestyksekkäästi geneettisen koodin laajentamiseen (Luontoviestintä, 29 syyskuu 2025), kun taas eniten siteerattu arvostelu hakutuloksissa tästä aiheesta on 2014. Plasmiditason resurssit ovat pysyneet lähempänä: Addgenen laajeneva GCE-kokoelma listaa karkeasti 150 syntetaasiplasmidit ja 26 bakteerikannat, jonka sisältö on viimeksi tarkistettu 19 marraskuu 2025 (Addgene). Jos valintasi on tehty vuosikymmeniä vanhasta arvostelusta, se kuvaa pienempää työkalupakkia kuin olemassa oleva.
Kuinka laajennetut geneettiset koodit muokkaavat ei-kanonista aminohappovalintaa
Sama kodonistrategia asettaa myös ei-kanonisen aminohappovalinnan ehdot, missä parin valinta, ei jäännösvalinta, on sitova rajoitus. Neljä tekijää ratkaisee, mitä tRNA-syntetaasiparia voit käyttää: substraatin istuvuus, kodonistrategia, isäntäorganismi, ja onko sinun koodattava useampi kuin yksi ncAA kerralla. Käsittele ne tässä järjestyksessä ja suurin osa jäämäluettelon näennäisestä vapaudesta katoaa.
Kaksi alustaa hallitsee. The Methanocaldococcus jannaschii TyrRS/tRNA^Tyr-pari hyväksyy tyrosiinin kaltaiset ja aromaattiset sivuketjut. Pyrrolysyyli-tRNA-syntetaasirunko ja sen kehittyneet muunnelmat ottavat lysiinin kaltaisia ja tilaa vieviä jäämiä, ja sietää enemmän rakenteellista vaihtelua. Huomaa, että RF1 knockout on isäntästrategia, joka lisää vaimennustehokkuutta, ei kolmatta paria.
|
Palvelut Ominaisuus |
M. jannaschii TyrRS/tRNA^Tyr |
PylRS/tRNA^Pyl variantit |
|---|---|---|
|
Substraatin laajuus |
Tyrosiinin kaltainen, aromaattinen |
Lysiinin kaltainen, iso, rakenteellisesti monipuolinen |
|
Kodonin strategia |
Keltainen (UAG) tukahduttaminen |
Keltainen, okra, tai sense-kodonin vaihtaminen |
|
Isäntäyhteensopivuus |
E. coli, hiiva, nisäkässolut |
E. coli, nisäkässolut, soluttomat järjestelmät |
|
Soveltuvuus multipleksointiin |
Rajoitettu; päällekkäinen alustan toleranssi |
Soveltuu paremmin ortogonaalisen parin laajentamiseen |
Multipleksointi on paikka, jossa kenttä liikkuu. A 2024 tunnistettu kodonipakkausstrategia 12 keskenään ortogonaaliset tRNA-syntetaasiparit, jotka ovat yhteensopivia tunnetun GCE-resurssijoukon kanssa, Tällä on merkitystä, jos suunnittelussasi tarvitaan kaksi tai useampia erillisiä ncAA:ita yhdessä ketjussa.
Sitten on raja sen välillä, mitä ribosomi voi asentaa ja mitä vain SPPS voi. Sivuketjujen modifikaatiot α-aminohapporungossa ovat GCE-yhteensopivia. β-aminohapot, a,a-disubstituoidut tähteet, depsipeptideissä, ja monet N-metyloidut tähteet eivät ole; ne ovat vain SPPS:ää tai vain in vitro. Jos kohdejäämäsi on luettelossa, mikään parin valinta ei pelasta sitä.
Lukemisen eston tehokkuus rehellisesti
Vaimennusteho on vaihteluväli, ja vaihteluväli tarkoittaa vain jotain, kun kanta ja reportteri on liitetty. Aiemmat järjestelmät toimittivat noin 10–20 % yhdestä kullanruskeasta kodonista. Optimoidut ja kehitetyt järjestelmät saavuttavat 50–117 % kontekstista riippuen, ja 76–104 % RF1-deletoidussa C321-kannassa. Nämä luvut kuvaavat erilaisia rakenteita, joten ne eivät ole tikkaita, joihin voit kiivetä valitsemalla suurimman numeron.
Sisällön tehokkuus ei myöskään ole sama mittari kuin lähes sukulaisluku. Readthrough kulkee noin 1% Top10:ssä, noin 3% BL21:ssä, ja aina 17% MG1655:ssä, yltää niin korkealle kuin 47.5% tietyssä kullanruskeassa paikassa RF1-deletoidulla taustalla. Yksi mittaa kuinka paljon ncAA:ta asennat; toinen mittaa kuinka paljon väärää aminohappoa asennat sen rinnalle.
Käytännön seuraus: spesifikaatio, joka nimeää vain prosenttiosuuden, nimeämättä kantaa ja toimittajaa, ei ole spesifikaatio. Pyydä molempia ennen kuin hyväksyt tehokkuusluvun.
Peptidikirjastojen suunnittelu ei-kanonisilla aminohapoilla
Kun pari on korjattu, valitsemasi näyttöalusta määrittää katon, jolle kirjastosi voi ylipäätään sisältää ei-kanonisia aminohappoja. mRNA-näyttö ja RaPID ovat korkeimmat ncAA-toleranssissa, koska koko sykli kulkee in vitro: flexizyme lataa tRNA:n suoraan, joten ribosomin ei koskaan tarvitse kilpailla isäntäsyntetaasin kanssa, ja selkärangan modifioidut jäännökset pysyvät pelissä. Ribosomi-näyttö on korkealla, mutta järjestelmästä riippuvainen, koska toleranssi muuttuu lysaatin ja vapautumiskertoimen asennuksen myötä. Phage-näyttö pysyy käyttökelpoisena, koska faaginäyttö voi kuljettaa ei-kanonisia tähteitä keltaista koodaavan auttajafaagin kautta, vaikka isäntäkoneisto rajoittaa, mitkä jäännökset säilyvät hengissä. Hiivanäyttö on kaikista neljästä rajoittunein.
Asemalla on yhtä paljon merkitystä kuin alustalla. Positiollinen vs. globaali ncAA-hajautus jakoi suunnittelutilan: Yksi tai muutama määritetty kohta sopii mekaaniseen anturiin tai yhteen konjugaatiokahvaan ja pysyy helposti karakterisoitavissa, kun taas pervasiivinen substituutio sopii stabiilisuus- tai proteaasiresistenssiseuloihin ja sitä on paljon vaikeampi varmistaa jäännökseltä.
Missä kirjastosuunnittelu kohtaa reitin valinnan
Selkärankamuunnetun tähteen ympärille rakennettua kirjastoa ei voida tuottaa geneettisen koodin laajentamisella ollenkaan, joten näyttöpäätös ja tuotantopäätös on tehtävä yhdessä eikä peräkkäin. Vakauden voitto on se, mikä tekee tuosta rajoituksesta hyväksymisen arvoisen. Yhdessä estäjäsarjassa, sykliset β2,3-tähteet siirsivät seerumin puoliintumisajan ohi 168 tuntia klo 37 °C ihmisen seerumissa, vastaan 4.6 tuntia vastaavalle alaniinivariantille; toinen rakennusteline samassa työssä saavutettiin 48 tuntia vastaan Kauppa 4.2 tuntia. N-metylaatio pidensi proteinaasi-K-stabiilisuutta 6 minuutista karkeasti 110 minuuttia omassa määrityksessään, ja D-aminohapposubstituutiot muuttivat puoliintumisaikaa minuuteista tunteihin. Mikään näistä luvuista ei yleistä peptidejä luokkana: jokainen kuuluu omaan rakennustelineeseensä ja analyysiinsä. Käytännön seuraus on kapea ja luja. Jos vakaustavoitteesi vaatii rungon muokkauksen, reitti on valittu sinulle, ja kirjasto on suunniteltava tämän rajan sisällä alusta alkaen.
Laajennettujen koodien mahdollistamat sivustokohtaiset konjugaatiostrategiat
Tämä reittipäätös kulkee suoraan konjugaatioon, jossa ncAA-kahva ostaa sijaintiohjauksen, jota mikään kanoninen jäännös ei voi vastata, ja se muuttaa vikatilaa vian poistamisen sijaan. Bioortogonaalinen kahva, joka on asennettu määritettyyn paikkaan, tarjoaa korkeimman asennonhallinnan ja alhaisimman kohdetaakan kaikista paikkaspesifisistä peptidikonjugaatiostrategioista, mutta epäonnistuminen, jonka sitten hallitset, on epätäydellinen sisällyttäminen tai reagoimaton lähtöaine, ei kohdistu väärin. Kysteiini on kemoselektiivistä ja halpaa, kuitenkin ylialkylointi, hapetus ja disulfidisekoitus ovat rutiinia. Lysiinikytkentä antaa regioisomeeriseoksia. N-terminaalinen kemia parantaa lysiiniä, mutta pysyy järjestyksessä- ja kontekstista riippuvainen.
|
Kemia |
Selektiivisyys |
Kinetiikka |
Kupari |
Sen tuottama vikatila |
|---|---|---|---|---|
|
SPAAC (atsidi + syklooktyyni) |
Korkea |
Kohtalainen |
Ei vaadita |
Reagoimaton atsidikahva |
|
CuAAC (atsidi + alkyyni) |
Korkea |
Nopeasti |
Pakollinen |
Kuparivälitteiset sivureaktiot |
|
Tetratsiini-TCO |
Peptidisynteesi Korkea |
Nopein |
Ei vaadita |
Hydrolysoitu tetratsiini |
|
Elektrofiilinen ncAA-syklisaatio |
Korkea, kun geometria on ennalta järjestetty |
molekyylinsisäinen |
Ei vaadita |
Kilpaileva molekyylien välinen tuote |
Valikko on lyhyt. SPAAC on kupariton ja helppokäyttöinen; CuAAC on vahvin, mutta kupariherkkyys on vastuu; tetratsiini-TCO-tarrat nopeimmin; ja elektrofiilinen ncAA-syklisointi on molekyylin sisäistä ja puhdasta, kun geometria on ennalta järjestetty, kuten raportoitu kaksinkertaisesti bio-ortogonaaliset ncAA-kahvat (Luontoviestintä, 2023).
Bioortogonaalisen konjugaation ja luonnollisen kemiallisen ligaation välillä valinta
Natiivi kemiallinen ligaatio ja ncAA-konjugaatio ratkaisevat erilaisia ongelmia eivätkä korvaa niitä. NCL on reitti, jolloin kohde vaatii rungon muokkauksen, D-tähde, tai segmentti, jota mikään ortogonaalinen pari ei lataa; sen edellytyksenä on toimiva ligaatioliitos ja tioesterisegmentti. ncAA-konjugaatio on reitti, kun kohde on tavallinen α-runkopeptidi, joka tarvitsee yhden määritellyn kiinnityskohdan, ja sen edellytyksenä on pari, jonka substraattialue hyväksyy kahvan sekä isäntä tai ote, joka estää kilpailevan kanonisen läpiviennin.
Käytännön seuraus: tee konjugaatiopäätös samaan aikaan ncAA-päätöksen kanssa. Kahva, jota valittu pari ei lataa, on uudelleensuunnittelu, ei vaihtoa.
Analyyttiset kontrollit, jotka todistavat sekvenssitarkkuuden
Millä tahansa konjugaatioreitillä valitsetkaan, ohjauspaketti muuntaa synteesivaatimuksen puolustettavaksi spesifikaatioksi, ja se on suunniteltava ennen kuin ensimmäinen erä tehdään, ei ole koottu poikkeaman jälkeen. Kaikille peptideille, joissa on ei-kanoninen jäännös, sekvenssin tarkkuuden analyyttinen ohjaus perustuu viiteen elementtiin: ehjän peptidin ja muunnetun tähteen kattavan sekvenssin lokalisoivien fragmentti-ionien tarkan massan vahvistus LC-MS/MS:llä; sisällyttämisen ja tehokkuuden kvantifiointi, tarkoittaa ncAA:n sisältävän peptidin fraktiota verrattuna kanonisiin väärin sisältyviin aineisiin tai leimaamattomaan tuotteeseen; diastereomeeri/epimeerikontrolli synteettistä vertailua vastaan tai ortogonaalista kiraalista tai retentioaikamenetelmää, koska standardi LC-MS ei useinkaan pysty erottamaan epimeerejä; ortogonaalisen käännösjärjestelmän validointi negatiivisilla kontrolleilla, eikä havaittavaa kohteen ulkopuolista läpivientiä; ja, elementtimerkityille ncAA:ille, kuten seleeni- tai boorivarianteille, aminohappoanalyysi tai ICP-MS (2026 tarkastelu tarkkuudesta biokonjugaatiosta ja paikkaspesifisestä liittämisestä, haettu 2026-02-04).
Hyväksymiskriteerien asettaminen ennen ensimmäistä erää
Jokaisesta säätimestä on hyötyä vain, kun siinä on numero. Sido massan tarkkuus vahvistettavaan jäännökseen, sitoa sisällyttämisen tehokkuuden kynnys sen mittaavan määrityksen erotuskykyyn, ja vaatia epimeerikontrollia nimeämään vertailustandardin, johon se vertaa. Kun peptidi on parenteraalinen ehdokas, farmakopean raja on annoksesta johdettu: USP <85> asettaa endotoksiinirajan = K/M, kanssa K = 5 EU/kg/tunti ei-intratekaalisilla reiteillä ja K = 0.2 EU/kg/tunti intratekaalisesti, ilmaistuna milligrammaa tai millilitraa kohti ihmisen enimmäisannoksesta. I Q2(R2) asettaa vahvistusparametrit, ja MHRA ALCOA -periaatteet kehystävät niiden ympärillä olevat tietojen eheysodotukset.
Ohjaus, jota ei ole kirjoitettu spesifikaatioon ennen ensimmäistä erää, on kontrolli, josta neuvotellaan poikkeaman jälkeen.
Skaalaus: SPSS, CFPS ja erä-eräuskollisuusriski
Näiden kontrollien on sitten selviydyttävä laajenemisesta, koska tutkimuseräsi tuottanut reitti ei ole automaattisesti se reitti, joka tuottaa kliinisen eräsi, ja uskollisuusriskiprofiili muuttuu sen mukana. Kiinteän faasin peptidisynteesi toimii milligrammoista grammaan erää kohden, valmistelevilla ja teollisilla työnkuluilla, jotka ulottuvat kymmenistä satoihin grammoihin, ja jotkut sekvenssit kilogramman mittakaavassa. Soluttomat järjestelmät tuottavat tyypillisesti mg/l: noin 96 ± 3 mg/l proteiinia kuljettavalle aineelle 40 identtiset ei-kanoniset aminohapot, kun taas optimoitu RF1-puutteellinen uute saavutti suunnilleen 1,780 ± 30 mg/l sfGFP:lle (soluvapaa ncAA:n sisällyttämistä koskeva kirjallisuus, 2020). Soluttomien ja kiinteän faasin reittien välinen mittakaavaero on todellinen, ja se muokkaa, mitkä uskollisuusriskit hallitsevat kussakin vaiheessa.
Tästä jaosta seuraa kaksi erän välistä riskiä. Keltaisen tukahdutuksen alla, katkaisu- ja läpivientituotteet vaihtelevat isäntätilan mukaan, joten epäpuhtausprofiili voi siirtyä käymisajojen välillä, vaikka kohdevyöhyke näyttää muuttumattomalta. Sense-kodonin uudelleenmäärittelyssä, ei-kanoninen ja kanoninen suhde voi ajautua, kun kokonaistuotto pysyy tasaisena, mikä tarkoittaa, että vain tuottoa koskeva vapautumistesti ei saa sitä kiinni.
Käytännön seuraus: edellisen osan tarkkuussäätimet kuuluvat jokaisen erän julkaisuspesifikaatioon, ei vain kelpoisuuserässä.
Mitä kysyä kumppanilta ennen sitoutumista
Ota kuusi kysymystä keskusteluun. Mikä ei-kanoninen aminohappo ja ortogonaalinen pari? Mikä kodonistrategia, meripihkan tukahduttaminen tai sense-kodonin vaihtaminen? Mikä isäntä tai soluton uute, ja mikä on sen dokumentoitu vaimennusteho? Mikä konjugaatioreitti, ja säilyttääkö se sisällytetyn jäännöksen? Mikä viidestä tarkkuussäätimestä toimii jokaisessa erässä? Ja mitkä hyväksymiskriteerit määrittelevät ohimenevän erän ennen kuin ensimmäinen tehdään?
Strukturoitu suunnittelusta laadunvalvontaan -työnkulku tukee tätä. MOL-muutoksia voidaan käyttää ncAA-valinnan kohdistamiseen, synteesireitti ja analyyttiset vapautumiskriteerit yhdessä kanavanvaihdossa, joten suunnitteluvaiheessa sovitut säädöt ovat mittakaavassa ajettavia ohjauksia. Pyydä erätason ohjauspaneelia kirjallisesti, ja vertaa sitä omiin vaatimuksiisi ennen sitoutumista.
Yleisiä väärinkäsityksiä laajennetuista geneettisistä koodeista
Neljä virhettä näkyy niin usein ohjelma-arvosteluissa, että ne kannattaa nimetä suoraan.
Ensimmäinen on, että laajennettu geneettinen koodi tarkoittaa uudelleen kirjoitettua genomia. Käytännössä se yleensä tarkoittaa yksi uudelleen osoitettu kodoni ja yksi ortogonaalinen pari, lisätty isäntään, joka on muuten muuttumaton.
Toinen on se, että korkeampi yhdistämistehokkuus tarkoittaa suurempaa puhtautta. Molemmat voivat liikkua vastakkaisiin suuntiin: sense-kodonin vaihtaminen voi säilyttää tuoton, kun puhtaus laskee, koska uudelleen osoitettu kodoni on nyt saatavilla lähes sukulaisille tRNA:ille sekä ortogonaaliselle parille.
Kolmas on, että mikä tahansa ei-kanoninen aminohappo voidaan jakaa mille tahansa tuotantoreitille. Selkäranka-muokkausjako on kova raja, ei mieltymys: jäämiä, jotka muuttavat runkoa, ei voida asentaa ribosomaalisella liittämisellä, ja tähteitä, jotka vaativat ribosomin, ei voida valmistaa SPPS:llä.
Neljäs koskee julkaisutestausta.
⚠️ Varoitus: Yksittäinen ehjä massa ei vahvista järjestystä. Ilman fragmentti-ioneja, jotka kattavat modifioidun jäännöksen, läheisessä paikassa oleva epimeeri tai virheellinen liitos voi läpäistä saman spesifikaation.
Minne Toolbox on menossa
Noilla väärinkäsityksillä selvitettynä, kulkusuunta on kohti useamman koodin käyttöä kerralla. Kun varhainen työ perustui yhteen ortogonaaliseen pariin, viimeaikaiset järjestelmät ovat osoittaneet, että keskenään ortogonaaliset parit, joita käytetään yhdessä, voivat toimia samassa solussa, Tämä tekee erilaisten ei-kanonisten aminohappojen yhdistämisestä useaan paikkaan suunnitteluvaihtoehdon pikemminkin kuin ajatuskokeilun.
Toinen muutos on arkkitehtuuri. Kiinnostus on siirtynyt kohti soluvapaita ja uutteisiin perustuvia järjestelmiä, jotka välttävät isäntägenomin pysyvän muuttamisen, mikä lyhentää sykliä konstruktion suunnittelun ja testauksen välillä. Sen rinnalla, neljän nukleotidin kodonityö laajentaa käytettävissä olevan kodonitilan standardin ulkopuolelle 64, tilan laajentaminen uudelleen siirrettäväksi.
Rehellinen varoitus on ennallaan: vaimennusteho pysyy ncAA:na- ja sekvenssi-kontekstiriippuvainen, eikä jokainen ei-kanoninen aminohappo ole yhteensopiva kaikkien reittien kanssa. Siksi arviointikehyksessä Synteettiset peptidit tämä opas, eikä mitään tiettyä paria tai alustaa, on säilyttämisen arvoinen osa: mukautetun peptidisuunnittelun laajennetut geneettiset koodit muuttuvat jatkuvasti, mutta ohjaimet, jotka todistavat rakentamasi, eivät.
Seuraavat vaiheet
Tuo tietty sekvenssi ja erityinen tarkkuusvaatimus ensimmäiseen tekniseen keskusteluun räätälöidyn peptidisuunnittelun laajennetuista geneettisistä koodeista, ei yleinen kysely. Alla oleva arvioinnin tarkistuslista muuttaa tämän oppaan neliosaisen viitekehyksen kysymyksiksi, joihin kumppanin pitäisi pystyä vastaamaan suojautumatta:
-
Mikä ortogonaalinen pari, ja mikä vaimennustehokkuus sille on havaittu ilmentymisisännässäsi?
-
Mikä kodonistrategia: keltainen tukahdutus, sense-kodonin vaihtaminen, tai nelikkokodoni?
-
Mikä reitti tälle sarjalle: SPSS, soluton synteesi, tai käyminen, ja miksi se?
-
Mikä konjugaatiokemia, ja pysyykö se kohtisuorassa jo ketjussa oleviin tähteisiin nähden?
-
Mitkä viidestä sekvenssin tarkkuuden analyyttisestä kontrollista ajetaan erää kohden, ja mitkä ovat hyväksymiskriteerit?
Kumppani, joka osaa vastata kaikkiin viiteen, ja sano selkeästi, missä tietty ncAA tai reitti ei toimi, on arvokkaampi kuin alempi lainaus. MOL Changes tukee tällaista suunnittelusta laadunvalvontaan perustuvaa keskustelua 300+ funktionaalisia ryhmiä, SPPS ja mikrobifermentointi, mg-kg asteikolla, ja HPLC/MS ja steriiliyden QC luokassa 100 puhdastilojen olosuhteet.
Tietojen paljastaminen: MOL Changes on tämän oppaan sponsori. Yllä olevat puitteet ja arviointikriteerit on esitetty tutkimus- ja vertailutarkoituksiin. Noin
Usein kysytyt kysymykset
Mikä on laajennettu geneettinen koodi?
Laajennettu geneettinen koodi on translaatiojärjestelmä, jossa yksi tai useampi kodoni on osoitettu uudelleen määrittelemään ei-kanoninen aminohappo tavallisen aminohapon sijasta.. Uudelleensijoittaminen on kohdennettua eikä globaalia: ortogonaalinen tRNA ja sen aminoasyyli-tRNA-syntetaasipari viedään, joten syntetaasi varaa vain sen sukulaismuokatun tRNA:n, jättäen isännän oman käännöskoneiston koskematta. Normaalissa 64 kodonin kehyksessä, joka jättää tilaa uuden kemiallisen toiminnon asentamiselle valittuun kohtaan kirjoittamatta uudelleen loput proteomista.
Kuinka monta ei-kanonista aminohappoa voidaan geneettisesti koodata?
A 2025 tarkasteluarvio asettaa geneettisesti koodaavien ei-kanonisten aminohappojen määrän ylittymään 300, vaikka tämä kuva kuvaa kentän kumulatiivista työkalupakkia eikä sitä, mitä yksittäinen järjestelmä voi tarjota. Käytännön määrä on paljon pienempi, koska jokainen ncAA tarvitsee yhteensopivan ortogonaalisen parin ja isännän, joka sietää uudelleenmäärityksen. Käsittele otsikon numeroa ylärajana sille, mitä on osoitettu jossain, ei valikona, josta voit tilata.
Mitä eroa on keltaisen tukahdutuksen ja sense-kodonin vaihtamisen välillä??
Amber-suppressio lukee UAG-lopetuskodonin läpi ja kilpailee suoraan vapautumistekijän kanssa 1, joten sen tyypillinen vikatila on katkaistu tuote. Sense-kodonin uudelleenmääritys vaihtaa kodonin, joka normaalisti koodaa standarditähdettä, joten sen vikatila on sekapopulaatio: sato voi pysyä korkeana, kun puhtaus laskee, koska villityypin tähde on edelleen sisällytetty ncAA:n rinnalle. Tämä ero määrittää, mitä ohjaimia tarvitset, koska katkaisu näkyy ehjässä massassa, kun taas käännösvirhe ei.
Mitkä ei-kanoniset aminohapot voidaan valmistaa SPPS:llä geneettisen koodin laajentamisen sijaan?
β-aminohapot, a,a-disubstituoidut tähteet, depsipeptidisidokset ja monet N-metyloidut tähteet ovat yleensä saatavilla vain kiinteäfaasisynteesillä tai in vitro -kemialla, koska ribosomi ei hyväksy niitä substraateiksi. Geneettisesti koodattava luokka on kapeampi: sivuketjun modifikaatiot, jotka on rakennettu α-aminohapporungolle. Selenokysteiini on luonnollinen poikkeus, koodattu sen oman koneistonsa kautta ennemmin kuin suunnitellun parin kautta. Peptidin tuotanto
Kuinka varmistat, että ei-kanoninen aminohappo sisällytettiin aiotuun kohtaan??
Vahvistus vaatii tarkan massan ja sekvenssin lokalisoivat fragmentti-ionit, jotka kattavat muunnetun tähteen, tyypillisesti LC-MS/MS:llä, yhdessä liittämistehokkuuden kvantifioinnin ja epimeerikontrollin kanssa synteettistä vertailua vastaan. Pelkkä ehjä massa ei riitä, koska se ei pysty erottamaan aiottua kohtaa sijaintiisomeeristä tai samanmassaisesta deleetiovariantista. Fragmentti-ionit paikantavat jäännöksen; massa kertoo vain, että jokin on muuttunut.
Voidaanko ei-kanonisia aminohappoja sisällyttää useampaan kuin yhteen kohtaan?
Kyllä, mutta usean toimipisteen sisällyttäminen moninkertaistaa analyyttisen taakan sen sijaan, että vain toistaisi yhden toimipaikan työnkulkua. Jokainen lisäsijainti lisää oman esto- tai uudelleenmääritystapahtumansa, ja tuotteen fraktio, joka kantaa ncAA:ta jokaisessa aiotussa paikassa, putoaa, kun paikat kumuloituvat, joten populaatiosta tulee osittain muunneltujen lajien jakautuma. Sinun on päätettävä etukäteen, ratkaiseeko määritys tämän jakautumisen, koska yhdelle sivustolle vahvistettu menetelmä ei raportoi automaattisesti neljästä.
Onko geneettisen koodin laajennus skaalattavissa kliinisen vaiheen peptidien tuotantoa varten?
Skaalautuvuus riippuu valitsemastasi reitistä, ja nämä kaksi reittiä epäonnistuvat eri tavalla. Soluton proteiinisynteesi on osoittanut saantoja aiemmin tässä artikkelissa raportoiduilla vaihteluväleillä, mutta nämä luvut tulevat määritellyistä kokeellisista järjestelmistä, eivätkä ne siirry automaattisesti GMP-prosessiin. Kiinteän faasin synteesi skaalautuu ennakoitavammin lyhyemmille sekvensseille, mutta ei saavuta tähteitä, jotka ovat vain SPPS:ää. Kliinisen vaiheen työhön, Käytännön kysymys ei ole siitä, onko kemian mittakaava, vaan voiko analyyttinen paketti todistaa erästä erään sekvenssitarkkuuden kyseisessä mittakaavassa.
Johtopäätös
Valitsemasi kodonistrategia määrittää perimäsi vikatilan, joten sekvenssitarkkuuden osoittava ohjauspaketti on määritettävä ennen ensimmäistä erää, ei sen jälkeen. Tämä on tämän oppaan läpi kulkeva lanka: laajennetut geneettiset koodit mukautettua peptidisuunnittelua varten ovat arviointiongelma ennen kuin ne ovat synteesiongelma.
Neljä päätöstä, jotka kumppanin on voitava puolustaa kirjallisesti, ovat ei-kanoninen aminohappo ja sen estokäyttäytyminen sekvenssikontekstissasi, kirjaston suunnittelu ja miten se rajoittaa reittiä, konjugaatiokemia ja mitä se jättää ennalleen, ja analyyttiset hyväksymiskriteerit niiden menetelmien ja rajojen kanssa. Jokainen kaventaa seuraavaa.
Kulkusuunta on kohti keskenään ortogonaalisia pareja, joita käytetään yhdessä, soluttomat ja uutteisiin perustuvat järjestelmät, jotka jättävät isännän genomin koskemattomaksi, ja neljän nukleotidin kodonit, jotka laajentavat käytettävissä olevan kodonitilan standardin yli 64. Rehellinen varoitus on, että vaimennusteho on riippuvainen ncAA:sta ja ympäröivästä sekvenssistä, ja jokainen ncAA ei ole yhteensopiva kaikkien reittien kanssa.
Käytä Next Steps -kohdan tarkistuslistaa ensimmäisen teknisen keskustelusi perustana.
Tietoja kirjoittajasta: [Tekijän nimi], [valtakirjat], kirjoittaa MOL Changesin peptidisuunnittelusta ja analyyttisestä ohjausstrategiasta.
Tietojen paljastaminen: MOL Changes tarjoaa peptidisuunnittelun, synteesi- ja analyyttiset palvelut, mukaan lukien tässä oppaassa käsitellyt ominaisuudet.