Schnelle Antwort
For a recombinant peptide, investigate translation, mRNA behavior, Proteolyse, expression conditions and sample recovery before attributing a short product to…
Was ist der ribosomale Austrittstunnel?, und warum setzt seine Größe eine harte Grenze für die Dehnung??
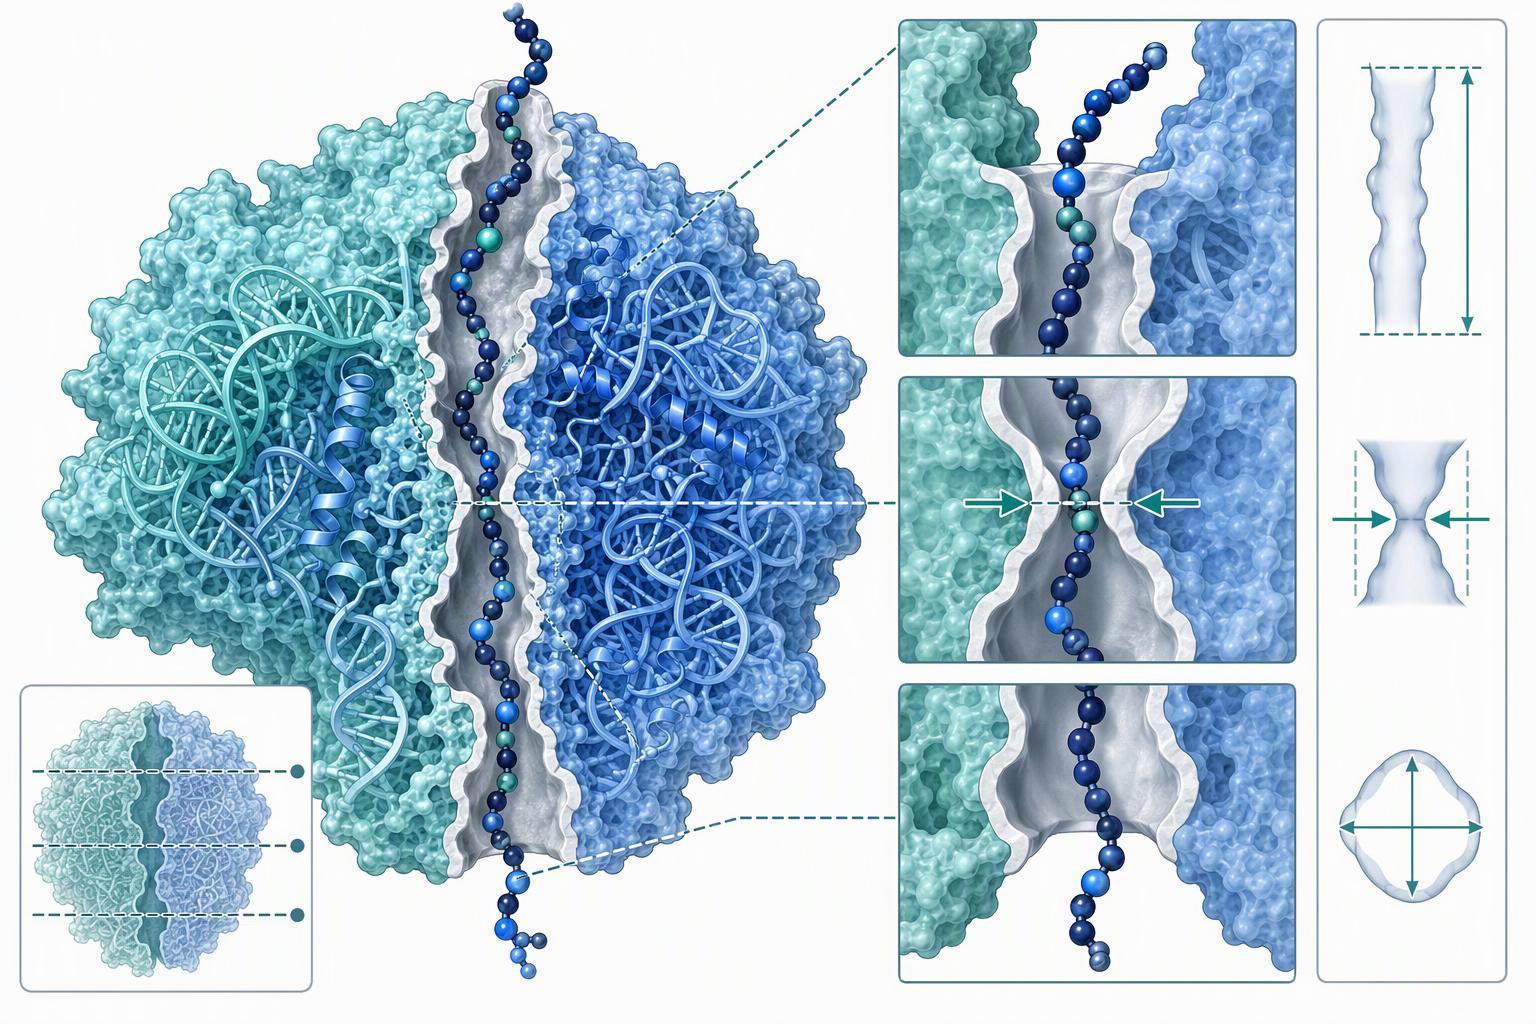
Diese Geometrie wird in ein Restbudget umgewandelt. Ein vollständig α-helikales Polypeptid würde grob begraben sein 23 Rückstände, wenn vollständig ausgefahren und ca 53 wenn vollständig α-helikal, bei 1.5 Oh Ente 3.5 Å pro Rest bzw (Proteinfaltung am Ausgangstunnel). Der gemessene Schutz liegt zwischen diesen Schätzungen: 30–40 vor Proteolyse geschützte Reste, folgt Malkin & Richs 1967 Pulse-Chase-Arbeit an entstehendem Globin in eukaryotischen Polysomen.
Die beiden Figuren beantworten unterschiedliche Fragen. Der Proteolyseschutz misst, was der Tunnel vor Enzymen schützt; Die Akkommodation misst, was in das Ribosom passt. A 2024 Preprint-Synthese von Struktur, Optische Pinzetten und Simulationsdaten berichten, dass bis zu 50 Rückstände können untergebracht werden, mit etwa 30 Im Endstadium werden C-terminale Reste ausgestoßen (Drei Epochen entstehender Proteintranslokation durch den Ribosomen-Ausgangstunnel, arXiv-Vorabdruck). Der physische Engpass ist die uL4/uL22-Verengung, gebildet durch ausgedehnte Schleifen dieser Proteine mit großen Untereinheiten (Proteinfaltung am Ausgangstunnel). In der Überprüfung wird die Identität der Einschnürung angegeben, nicht jedoch ihre Entfernung zum PTC, Daher bleibt die Entfernung hier qualitativ und nicht geschätzt.
Wie lange bleibt ein entstehendes Peptid im Tunnel, bevor ein Freisetzungsfaktor die Translation beenden kann??
Es gibt keinen gemessenen Sekundenwert für die Verweilzeit des entstehenden Peptids am Ausgang des Tunnels. Was zeitaufgelöste Kryo-EM-Messungen sind, ist der Akkommodationsschritt, der der Freisetzung vorausgeht: bei 24 ms Reaktionszeit, 25% von Ribosomen-gebundenem RF1 liegt in der kompakten Präakkommodationsform vor, und im Innern 60 ms haben sich praktisch alle Ribosomen-gebundenen Freisetzungsfaktoren in ihre verlängerten Formen umgewandelt (Die strukturelle Grundlage für die Aktivierung des Freisetzungsfaktors während der Translationsbeendigung wurde durch zeitaufgelöste Kryo-EM enthüllt, Naturkommunikation, 2019).
Dieselbe Studie bestimmt die Position des Peptids an jedem Punkt. Bei 60 ms wird das RF1-gebundene Ribosomenensemble von der verlängerten Form dominiert, mit dem untergebrachten Komplex und dem Tripeptid noch im Ausgangstunnel; von 45 s Die Tripeptiddichte ist im Tunnel nicht mehr vorhanden. Die Sequestrierung des Freisetzungsfaktors während der Translationsbeendigung erfolgt daher nicht augenblicklich, und im Fenster zwischen Stop-Codon-Eintritt und Hydrolyse wirken sequenzabhängige Interferenzen.
Die Beendigung selbst ist eine Abfolge definierter Schritte. Der Freisetzungsfaktor bindet die A-Stelle in einer katalytisch inaktiven Konformation; bei der Stop-Codon-Erkennung die Schaltschleife und die Domäne 3 neu anordnen, Das GGQ-Motiv wird in den PTC eingefügt, und es folgt die Hydrolyse der Peptidyl-tRNA-Esterbindung (Strukturelle Aspekte der Translationstermination am Ribosom, PMC). Die gemessene Freisetzungsrate vereint drei elementare Schritte: Konformationsänderung des Freisetzungsfaktors, Hydrolyse des Peptids, und Dissoziation des Peptids vom Ribosom (Dynamische Basis für Treue und Geschwindigkeit bei der Übersetzung, PMC, 2017).
Diese Zerlegung erklärt, warum die Codon-Identität so wichtig ist. Eine Änderung des Codons veränderte sowohl die Dissoziationsrate des Freisetzungsfaktors als auch die gemessene Freisetzungsrate um bis zu drei Größenordnungen, ohne signifikante Änderung der anfänglichen Assoziationsrate. Die Gesamtübersetzung beträgt ca 20 Aminosäuren pro Sekunde in vivo, gleichbedeutend mit 50 ms pro Codon, also eine Tunnelbelegung von 30 Zu 40 Rückstände entspricht in etwa 1.5 Zu 2 Sekunden Transit bei dieser Geschwindigkeit. Betrachten Sie das als abgeleitete Schätzung, keine gemessene Konstante.
Welche Sequenzen ändern dieses Timing?, und was zeigen die gemessenen Beweise??
Gegen dieses kurze Zeitfenster, Eine Handvoll Sequenzmotive geben zuverlässig den Ausschlag, und die meisten von ihnen wirken, indem sie die Sequestrierung des Freisetzungsfaktors während der Translationsbeendigung stören. Prolin am C-Terminus neben einem Stoppcodon ist das dominante Arrestsignal. Ein genetisches Screening zufälliger Peptidbibliotheken in E. coli festgestellt, dass dies die häufigste Ursache für das Abwürgen ist, vorbei 90% von Klonen, ist eine ineffiziente Beendigung bei der Sequenz Pro-Stop, wobei das Opal-Stoppcodon UGA bei überrepräsentiert ist 23 von 29 Klone und Glu sind überrepräsentiert 16 von 29 in der −2-Position (Genetische Identifizierung entstehender Peptide, die das Abwürgen von Ribosomen induzieren, PMC, 2009). Die Freigabe ist besonders ineffizient, wenn Asp vor Pro-Stop steht, Glu, oder Pro. Dies ist ein einzelner Bildschirm, und die Häufigkeiten sind Klonzahlen aus einem Selektionssystem, keine Bevölkerungszahlen.
Elongationsphasenmotive sind ebenso spezifisch. Für einen robusten Strömungsabriss sind drei aufeinanderfolgende Prolinen notwendig und ausreichend, und robustes Abwürgen durch PP(X) tritt auf, wenn X gleich Asn ist, Asp, Glu, Gly, Profi, oder Trp (Naszierende Peptide, die die Proteinsynthese in Bakterien blockieren, PMC). Die gleiche Arbeit definiert den Elongationskonsens als RxPP und HGPP, und ein Terminationsmotiv als DTS-Stopp.
Das SecM-Arrestmotiv FxxxxWIxxxxGIRAGP zeigt, wie weit stromaufwärts ein Motiv reichen kann. Eine Trp-Seitenkette 11 Reste stromaufwärts der Strömungsabrissstelle binden in der Nähe der Verengung, Die drei stromaufwärts gelegenen Arg-Reste befinden sich in der Nähe des PTC, und nicht umgesetzte Pro-tRNA wird an der A-Stelle gebunden (Naszierende Peptide, die die Proteinsynthese in Bakterien blockieren, PMC). Der kritische Pro166 wird nicht in die blockierte Kette eingebunden, und nicht umgesetzte Pro-tRNA verbleibt an der A-Stelle (Modulation der Aktivität des Peptidyltransferase-Zentrums des Ribosoms, PMC, 2008).
A 2025 Die Kryo-EM-Struktur fügt im gleichen Schritt einen zweiten Mechanismus hinzu. Die PepNL-Mini-Haarnadel blockiert RF2 am Stoppcodon: PepNL ist ein ORF mit 14 Aminosäuren, der die Translation bei UGA15 durch Hemmung von RF2 stoppt, und seine vorletzte Ile13 besetzt die von A2451 gebildete Tasche, C2452, und U2506 der 23S-rRNA, sterisch im Widerspruch zum GGQ-Motiv von RF2 (Ein entstehendes Peptid in Form einer Minihaarnadel blockiert die Translationstermination, Naturkommunikation, 2025). Nach dem Durchlesen des Stop-Codons wanderte das Ribosom mit etwa einer Aminosäure pro Minute gegenüber 4.8 Zu 26.4 pro Minute im PURE-System.
Schlüssel zum Mitnehmen: Die Reste, auf die es ankommt, sind Positionsreste, nicht kompositorisch. Das Verschieben eines Motivs um einige Reste verändert das Ergebnis, und das ist das Risiko einer Verkürzung der Peptidexpression, das eine Sequenzdatei anzeigen kann, bevor mit der Arbeit begonnen wird.
Die praktische Konsequenz ist, dass Prolin-reiche und vorletzte Reste-Mechanismen in unabhängigen Selektionssystemen immer wieder auftreten, also ein C-terminales Pro, gefolgt von einem Stoppcodon, oder eine Reihe von Prolinen in der Mitte der Sequenz, ist eher eine Markierung in der Sequenzdatei als eine Überraschung im Gel.
Warum werden schwierige oder unkonventionelle Sequenzen abgeschnitten?, Stall, oder Schlecht ausdrücken?
Kommerzielle Peptidsynthese Geringe Ausbeute bei einer schwierigen Sequenz wird normalerweise als ein Problem angesehen. Es sind mindestens drei, und sie benötigen unterschiedliche Korrekturen. Verzögerung auf der Übersetzungsseite, Stop-Codon-unabhängiger Drop-off, und posttranslationale Instabilität verringern alle die Endmenge des Produkts in voller Länge, Aus diesem Grund wird das Risiko einer Verkürzung der Peptidexpression so oft dem falschen Schritt zugeschrieben.
Der translatorische Mechanismus beginnt im Tunnel. Der PTC katalysiert die Bildung von Peptidbindungen und, zusammen mit dem Release-Faktor, Peptidfreisetzung, und seine Aktivität wird durch die Signalübertragung aus dem Peptidausgangstunnel moduliert (Modulation der Aktivität des Peptidyltransferase-Zentrums des Ribosoms, RNA-Gesellschaft, 2008). Zwei benannte Peptide zeigen die Richtung dieser Signalübertragung: SecM blockiert, indem es die Bildung von Peptidbindungen hemmt, und TnaC unterdrückt die durch den Freisetzungsfaktor induzierte hydrolytische Aktivität des PTC aus dem Inneren des Tunnels. Bei der frühen Dehnung ist dies am empfindlichsten. Die meisten Peptide mit fünf Resten würden einen kritischen Bereich des PTC-Hohlraums erreichen, und kleine Reste an Positionen 3 Zu 5 den Trichter zum Tunnel hin behindern, weil die Konformationsfreiheit, die sie verleihen, die Kette davon abhält, sich zum Eingang hin auszurichten (Jia, Wang & Lehmann, Wissenschaftliche Berichte 11:24061, 2021). Der siebte Rest liegt auf dem Niveau von U2609.
Wenn das Abwürgen nicht behoben ist, Die Qualitätskontrolle übernimmt. Kollidierende Ribosomen sind das universelle Zeichen des Stillstands, und blockierte Ribosomen werden durch einen leeren mRNA-Kanal in der A-Stelle definiert (Festgefahrene Ribosomen erkennen und retten, PMC, 2021). An diesen Ribosomen, Dem von Hbs1 gelieferten Pelota/Dom34 fehlt das GGQ-Motiv und es verbleibt Peptidyl-tRNA auf der großen Untereinheit, während ZNF598/Hel2 40S-Proteine ubiquityliert und ASC-1/RQT rekrutiert; die gespaltenen 60S behalten die Peptidyl-tRNA, wodurch der Ribosomen-Qualitätskontrollweg abgebaut wird (Qualitätskontrolle und Signalwege an blockierten Ribosomen, Experimental & Molekulare Medizin, 2026).
Keine hier gelesene Quelle gibt per se eine Kürzungshäufigkeit an, Behandeln Sie daher jeden Prozentsatz, den Sie für eine bestimmte Sequenz sehen, als nicht bestätigt. Gemessen wird die Häufigkeit des Stop-Codon-unabhängigen Drop-off-Ereignisses selbst, und das ist die Zahl, aus der man schließen kann.
⚠️ Warnung: Drei Fehlermodi, drei unterscheidende Observablen. Das Abwürgen auf der Translationsseite zeigt kollidierte Ribosomen und einen Peptidyl-tRNA-Pool, den die Qualitätskontrolle aktiv klärt. Beim Stop-Codon-unabhängigen Drop-off wird ein verkürztes Produkt freigesetzt, während das Ribosom weiter übersetzt, Daher erscheint die verkürzte Art ohne die Signatur eines blockierten Ribosoms. Die posttranslationale Instabilität führt bei der Veröffentlichung zu einem Produkt in voller Länge, das sich danach verschlechtert, Daher hängt der Verlust eher von der Zeit und der Handhabung als vom Ausdruck ab. Weisen Sie Ihren geringen Ertrag dem falschen zu, und die von Ihnen vorgenommene Konstruktionsänderung wird ihn nicht verschieben.
Was kann an einem Konstrukt geändert werden, um dieses Risiko zu verringern??
Peptid 1 Fabrik Wenn der Mechanismus auf Sequenzebene ist, Das Gleiche gilt für die Milderung. Der erste Hebel ist der C-Terminus. Da Pro-Stop die dominierende Arrestklasse ist und die Freigabe besonders ineffizient ist, wenn Asp vor Pro-Stop steht, Glu, oder Pro (Genetisch Lange Peptidsynthese Identifizierung entstehender Peptide, die das Blockieren von Ribosomen induzieren), Ein terminales Pro neben dem Stoppcodon ist ein Defekt auf Sequenzebene, der vor jedem Expressionslauf entfernt werden kann.
Der zweite Hebel ist der Prolinlauf. Drei aufeinanderfolgende Pro-Codons sind für ein robustes Stalling notwendig und ausreichend, und PP(X) bleibt stehen, wenn X Asn ist, Asp, Glu, Gly, Profi, oder Trp (Naszierende Peptide, die die Proteinsynthese in Bakterien blockieren). Dieselbe Quelle berichtet, dass EF-P das Blockieren bei Polyprolin-Strecken aufhebt, aber nur geringe oder keine Wirkung auf andere Blocking-Peptide hat, einschließlich RxPP, DTS-Stopp, und Glu-Pro-Stop. Diese Unterscheidung ist einklagbar: Das Abwürgen von Polyprolin ist eine Frage des Wirtsfaktors, während die anderen Motive von EF-P überhaupt nicht gerettet werden.
Der dritte Hebel ist die Frühkette. Die meisten Peptide mit fünf Resten würden einen kritischen Bereich des PTC-Hohlraums erreichen, Dies kann zu einer Blockierung des Peptids führen, wenn der N-terminale Rest nicht zum Tunneleingang hin ausgerichtet ist, und kleine Aminosäuren in Positionen 3 Zu 5 verleihen eine hohe Konformationsfreiheit, die verhindern kann, dass das Peptid in Richtung des Tunnels geschleust wird. Die 7. Aminosäure liegt auf der Ebene von U2609, Dabei handelt es sich möglicherweise um einen Schlüsselrest, der die Integration des entstehenden Peptids in den Ausgangstunnel gewährleistet. Die Verankerung des Initiators Methionin im Tunnel würde es ermöglichen, das Peptid von Anfang an aufzurichten.
Der vierte Hebel ist der Host. Dehnungsrate in Bakteriendurchschnitten 10 Zu 20 Rückstände pro Sekunde und 4 Zu 5 bei Eukaryoten, und Stufe I, der N-Terminus durchquert den Tunnel, wird auf geschätzt 2 Zu 12 Sekunden (Drei Epochen entstehender Proteintranslokation durch den Ribosomen-Ausgangstunnel, arXiv-Vorabdruck). Ein langsameres Ribosom verändert, wie lange ein Randmotiv in der Lage ist, einzugreifen, Dies ist einer der Gründe, warum sich dasselbe Konstrukt auf verschiedenen Hosts unterschiedlich verhalten kann.
Welche analytischen Beweise sind erforderlich, bevor ein Ergebnis einer schwierigen Sequenz als reproduzierbar behandelt wird??
Sobald das Konstrukt fixiert ist, Die verbleibende Frage ist, welche Beweise das Ergebnis vertrauenswürdig machen. Identität und Reinheit sind separate Ansprüche und erfordern separate Beweise. ICH Q6B verlangt Identitätstests, die hochspezifisch für das Molekül sind, und besagt, dass möglicherweise mehr als ein Test erforderlich ist (ICH Q6B: Spezifikationen: Prüfverfahren und Akzeptanzkriterien für biotechnologische/biologische Produkte, ICH, 1999). Eine einzelne Bande auf einem Gel ist kein Identitätstest.
Reinheit muss anhand einer Methode definiert werden. Die Peptidreinheit beschreibt den Anteil des Zielpeptids im Verhältnis zu den zugehörigen Synthesenebenprodukten, abgeschnittene Sequenzen, Löschprodukte, oder andere Verunreinigungen, die unter der gewählten Analysemethode sichtbar sind, und eine nützliche Spezifikation gibt das Ziel an Peptid 1 Großhandel Reinheit, Der analytische Ansatz, angeforderte Dokumentation, und alle besonderen Projekterwartungen vor Produktionsbeginn. A 95% Die Spezifikation kann für viele Forschungs- und Screening-Workflows geeignet sein, während 98% kann für anspruchsvollere Analysen ausgewählt werden, biologisch, oder formulierungsempfindliche Anwendungen.
Für eine schwierige Sequenz, Die Fehlerarten sind bekannt und sollten in der Spezifikation benannt werden. Einige Sequenzen sind aufgrund ihrer Hydrophobie von Natur aus schwierig, Länge, Aufladung, oder Neigung zur Aggregation, und die Schwierigkeit wird durch das Sequenzverhalten bestimmt, einschließlich Aggregation, Sekundärstruktur, sterische Effekte, oder labile Motive, und nicht nur die Länge. Eine höhere Reinheit kann die Interpretierbarkeit verbessern, aber es kann die Kosten erhöhen und den Ertrag verringern, insbesondere für schwierige Sequenzen.
Die Frage der Reproduzierbarkeit wird durch Daten auf Chargenebene beantwortet, nicht allein durch ein Analysezertifikat. Denn die Verkürzung entsteht durch ein blockiertes Ribosom, dessen Peptidyl-tRNA über den RQC-Weg abgebaut wird (Qualitätskontrolle und Signalwege an blockierten Ribosomen), Eine verkürzte Art ist ein eigenständiges Produkt mit eigener Masse, und es wird in allen Läufen im gleichen chromatographischen Fenster angezeigt, wenn das Konstrukt unverändert bleibt. Chargenspezifische HPLC- und MS-Daten, die die verkürzten Spezies vom Ziel auflösen, gegenüber der zur Definition der Reinheit verwendeten Methode angegeben, sind es, die ein Ergebnis einer schwierigen Reihenfolge vertretbar machen.
Wann sollte eine schwierige Sequenz durch chemische Synthese statt durch ribosomale Expression hergestellt werden??
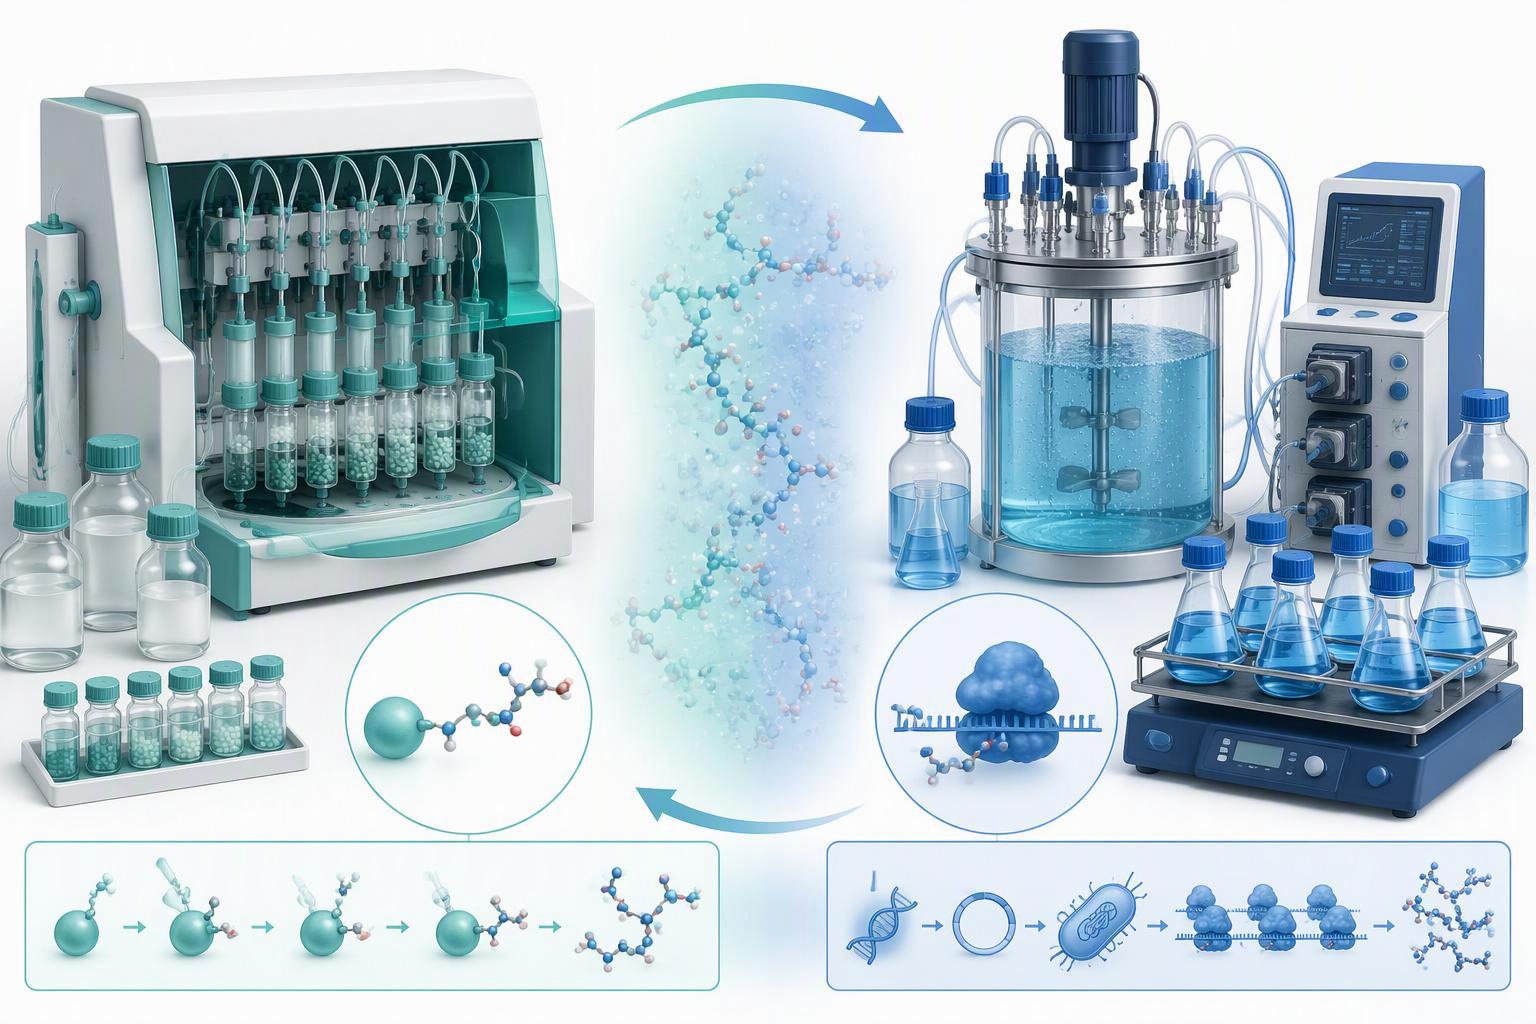
Für einige Sequenzen, Kein Maß an analytischer Genauigkeit legt einen Weg fest, den das Ribosom nicht vollenden wird. Das Marktmuster ist auch dort klar, wo die Vergleichsdaten dies nicht sind: 31 von 38 Kürzlich zugelassene kleine Peptidmedikamente werden chemisch synthetisiert, und Aminosäurelänge, Molekulargewicht, und strukturelle Komplexität hängen davon ab, ob ein Medikament rekombinant oder chemisch hergestellt wird (Chemisch vs. Rekombinant: Die Herstellungsentscheidungen hinter Blockbuster-Peptid-Medikamenten, Decibio, 2026). Die chemische Synthese eignet sich für kleine bis mittlere Mengen mit strenger Reinheitskontrolle; Rekombinant wird bei größeren Mengen und längeren Sequenzen kostengünstiger und skalierbarer. In 2021 Die FDA gab Leitlinien heraus, in denen davon ausgegangen wird, dass generische Peptidarzneimittel chemisch hergestellt werden.
Der Längenschwellenwert ist gerichtet, nicht gemessen. Sequenzen vorbei 30 Zu 50 Rückstände werden oft als schwierig eingestuft, und die Schwierigkeit wird eher durch das Sequenzverhalten als durch die Länge allein bestimmt (Schwierig & Anspruchsvolle Peptide, Biosynthese). Das 30 Zu 50 Der Rückstandsschwellenwert ist eher eine Festlegung des Anbieters als ein gemessenes Ergebnis. In der veröffentlichten Literatur gibt es keinen kontrollierten direkten Ausbeute- oder Reinheitsvergleich zwischen den beiden Routen, Die Grenze ist also ein Kompromissband, kein Cutoff.
Der Mechanismus argumentiert auf der anderen Seite mit derselben Schlussfolgerung. Eine Sequenz, die das Ribosom blockiert, wird auf dem ribosomalen Weg unabhängig von der Größenordnung schlecht gehandhabt, und die Motive der Festnahme sind spezifisch genug, um vor der Begehung überprüft zu werden: ein C-terminales Prolin neben einem Stoppcodon, ein Lauf von drei oder mehr Prolinen, oder ein vorletzter Rest, der sich in die GGQ-Tasche verzerren kann. Wenn diese Merkmale vorhanden sind und die erforderliche Menge gering bis mittel ist, Die chemische Synthese beseitigt die ribosomale Einschränkung vollständig.
Wo die Reihenfolge sauber und die Menge groß ist, Es gelten die Kosten- und Größenvorteile der rekombinanten Route. Eine schwierige Charakterisierung der Peptidsequenz beginnt daher mit einer Routenentscheidung, die vor dem ersten Expressionslauf getroffen wird, Kein Rettungsversuch nach dem Auftauchen einer Abbruchleiter. Biotinylierte Peptidsynthese
Was machen die Leute falsch über den Ausgangstunnel??
Der zweite Fehler besteht darin, anzunehmen, dass der Tunnel überall Helizität induziert. Der Effekt ist sequenzabhängig: FRET-Arbeiten zeigten, dass eine sekretorische Proteinsequenz weniger helikal ist als eine Membranproteinsequenz im eukaryotischen Tunnel, und lösliche Proteinsequenzen weisen innerhalb oder außerhalb davon eine vernachlässigbare Helizität auf, während Kryo-EM nur für Sequenzen mit hoher Helixneigung eine helikale Struktur detektierte (Proteinfaltung am Ausgangstunnel). Ob sich im Stadium I auf kurzen entstehenden Peptiden α-Helices bilden können, bevor der N-Terminus den Tunnel verlässt, ist aus der Quelle ausdrücklich nicht ersichtlich.
Der dritte Fehler besteht darin, die Zahl mit 30 bis 40 Resten als eine einzige gemessene Konstante zu interpretieren. Es handelt sich um eine Reihe von Proteolyseschutzmitteln, und es misst etwas anderes als die Akkommodationszahl von bis zu 50 Rückständen (Drei Epochen entstehender Proteintranslokation durch den Ribosomen-Ausgangstunnel, arXiv-Vorabdruck). Die Zusammenführung der beiden führt zu einer Kapazitätsschätzung, die in beide Richtungen falsch ist.
Der vierte Fehler besteht darin, die kompakte Release-Faktor-Form einfach als inaktiv zu behandeln. Die frühere Formulierung nennt es katalytisch inaktiv und die offene Form katalytisch kompetent (Strukturelle Aspekte der Translationstermination am Ribosom), während die zeitaufgelöste Studie es als Präakkommodation bezeichnet und feststellt, dass kompakte Freisetzungsfaktoren die A-Stelle unabhängig von der Konformation des Dekodierungszentrums binden, Der selektive Vorteil liegt in der schnellen Bindung und Dissoziation in einem Zustand mit maximaler Genauigkeit (Die strukturelle Grundlage für die Aktivierung des Freisetzungsfaktors während der Translationsbeendigung wurde durch zeitaufgelöste Kryo-EM enthüllt). Vorakkommodiert ist der neuere und strukturell begründete Begriff. Peptid 2 Anbieter
Der fünfte Fehler besteht darin, dass EF-P jedes Prolinproblem behebt. EF-P beseitigt den Strömungsabriss bei Polyprolin-Strecken, hat aber kaum oder gar keine Wirkung auf RxPP, DTS-Stopp, oder Glu-Pro-stoppt das Abwürgen (Naszierende Peptide, die die Proteinsynthese in Bakterien blockieren).
Nächste Schritte für eine Sequenz, die Sie bereits vermuten
Beginnen Sie mit der Sequenzdatei, nicht der Ausdruck run. Markieren Sie jedes C-terminale Pro innerhalb von zwei Resten eines Stoppcodons, jeder Lauf von drei oder mehr aufeinanderfolgenden Prolinen, und die Identitäten von Positionen 3 durch 5 und Position 7. Das sind die Merkmale, die die oben genannten Beweise mit dem Abwürgen in Verbindung bringen, und sie sind sichtbar, bevor ein Reagenz eingesetzt wird.
Dann legen Sie die Route fest. Wenn die gekennzeichneten Merkmale vorhanden sind und die Menge gering bis mittel ist, Die chemische Synthese beseitigt den ribosomalen Zwang, im Einklang mit dem Muster, das 31 von 38 Kürzlich zugelassene kleine Peptidmedikamente werden chemisch synthetisiert (Chemisch vs. Rekombinant: Die Herstellungsentscheidungen hinter Blockbuster-Peptid-Medikamenten, Decibio, 2026). Wenn die Sequenz sauber ist und die Menge groß ist, die Konstruktionshebel, Wahl des Gastgebers, und das Analysepaket oben sind diejenigen, die angegeben werden müssen.
Schreiben Sie die Spezifikation vor der Produktion. Geben Sie die Zielreinheit an, Der analytische Ansatz, die angeforderte Dokumentation, und alle besonderen Projekterwartungen, und erfordern chargenspezifische HPLC- und MS-Daten, die die verkürzten Spezies vom Ziel anhand der angegebenen Methode auflösen. Die Anforderung von ICH Q6B, dass Identitätstests hochspezifisch für das Molekül sein müssen, ggf. mit mehr als einem Test, ist eher der Boden als die Decke (ICH Q6B, ICH, 1999).
Eine Grenze sollte mit dem Plan reisen. Keine hier gelesene Quelle berichtet über eine gemessene Verweilzeit im Sekundenbereich für ein entstehendes Peptid im Tunnel, und die Fluchtzeiten aus der Simulation, Mikrosekunden in Millisekunden, wurden nicht experimentell validiert (Drei Epochen entstehender Proteintranslokation durch den Ribosomen-Ausgangstunnel, arXiv-Vorabdruck). Die Verweilzeit ist eine abgeleitete Größe, und jedes Lieferantengespräch, das es als messbare Konstante betrachtet, ist den Beweisen voraus.
Häufig gestellte Fragen
Begrenzt die Breite des Ausgangstunnels, welche Peptide exprimiert werden können??
NEIN. Der Tunnel ist breit genug für eine vollständig ausgedehnte Kette und sogar eine α-Helix, Daher blockiert die Größe allein selten den Ausdruck. Die Grenze ist kinetisch: eine Sequenz, die die entstehende Kette zu lange im Tunnel hält, oder im falschen Register, kann die Dehnung blockieren oder die Freigabe beeinträchtigen. Die Breite legt die Geometrie fest; Das Timing bestimmt das Ergebnis.
Sind Abwürgen und Abschneiden derselbe Fehler??
NEIN, und wenn man sie so behandelt, als würde man die Fehlerbehebung in die falsche Richtung lenken. Stalling ist eine Pause in der Verlängerung, und das Ribosom kann oft wieder aufgenommen werden, sobald das Hindernis beseitigt ist. Kürzung ist das dauerhafte Ergebnis: Das Ribosom endet früh, oder das Produkt in voller Länge wird abgebaut, und die kürzere Kette ist das, was Sie wiederherstellen. Ein Stall, der sich auflöst, hinterlässt keine abgeschnittenen Arten; Ein Stillstand, der sich nicht auflöst, löst sich normalerweise auf.
Wie erkenne ich ein Übersetzungsproblem von einem Löslichkeitsproblem??
Schauen Sie, wohin das Produkt geht, nicht nur, wie viel du bekommst. Ein Problem auf der Translationsseite führt zu einer Leiter kürzerer Banden auf dem Gel, was auf einen vorzeitigen Abbruch innerhalb des Tunnels hindeutet. Ein Löslichkeitsproblem ergibt das richtige Molekulargewicht in der unlöslichen Fraktion, mit wenig oder keinem im löslichen Pool. Führen Sie beide Fraktionen aus, bevor Sie das Konstrukt ändern, weil die Lösung bei jedem unterschiedlich ist.
Kann die Codon-Optimierung ein Blockierungsmotiv retten??
Synonyme Codon-Änderungen bewahren das kodierte Peptidmotiv, können jedoch die Translationskinetik und das mRNA-Verhalten verändern. Sie können in manchen Zusammenhängen die Expression oder das Anhalten beeinflussen, ohne notwendigerweise einen Peptid-vermittelten Arretiermechanismus aufzuheben. Testen Sie die vorgeschlagene Änderung experimentell.
Welche Reinheitsspezifikation passt zu einer schwierigen Sequenz??
Legen Sie das Ziel vor der Produktion fest, nicht danach. A 95% Die Spezifikation kann für viele Forschungs- und Screening-Workflows geeignet sein, während 98% kann für anspruchsvolle Analysen ausgewählt werden, biologisch, oder formulierungssensitives Arbeiten; Eine höhere Reinheit kann die Interpretierbarkeit verbessern, kann jedoch bei einer schwierigen Sequenz zu höheren Kosten und einer geringeren Ausbeute führen. Die Identität sollte durch hochspezifische Tests für das Molekül bestätigt werden, ggf. mit mehr als einem Test (ICH Q6B, ICH, 1999).
Kann die Verweilzeitschätzung heute prädiktiv genutzt werden??
Nicht als quantitativer Prädiktor. Die Angaben zur Verweilzeit stammen aus Struktur- und Einzelmolekülarbeiten an bestimmten Sequenzen und Bedingungen, und sie sind kein allgemeines Modell, das eine beliebige Sequenz annimmt und eine Stall-Wahrscheinlichkeit zurückgibt. Nutzen Sie sie, um zu überlegen, welche Konstrukte ein höheres Risiko bergen, und um zu entscheiden, was gemessen werden soll, Bestätigen Sie dann mit Ihren eigenen Expressions- und Charakterisierungsdaten.
Abschluss
Die Entwurfsreaktion ergibt sich aus diesen Ankern. Markieren Sie C-terminales Pro neben einem Stoppcodon, Fahnenläufe aus drei oder mehr Prolinen, Positionen prüfen 3 durch 5 und Position 7, und wählen Sie den Host unter Berücksichtigung der Dehnungsrate aus. Wenn die gekennzeichneten Merkmale vorhanden sind und die Menge gering bis mittel ist, Die chemische Synthese beseitigt den ribosomalen Zwang; wo die Sequenz sauber und die Menge groß ist, Die Konstruktionshebel und das Analysepaket tragen das Risiko.
Bei jeder Entscheidung sollten zwei Grenzen gelten. Die Aufenthaltszeit im Tunnel ist eine abgeleitete Größe, keine gemessene Konstante, und die simulationsbasierten Fluchtzeiten wurden nicht experimentell validiert. Die Entfernung vom PTC zur Engstelle wurde in den hier gelesenen Quellen nicht bestätigt. Ein Lieferantengespräch, das genau auf diese Grenzen eingeht, und über die HPLC- und MS-Daten auf Chargenebene, die eine verkürzte Spezies vom Ziel auflösen, ist derjenige, der bestehen bleibt, wenn der nächste Lauf mit dem letzten verglichen wird.
Über den Verlag. MOL Changes ist eine Peptidforschungs- und -entwicklungsorganisation, die kundenspezifisches Sequenzdesign anbietet, Synthese und Produktion, einschließlich Festphasen- und mikrobieller Fermentationsrouten. Es besteht daher ein kommerzielles Interesse daran, wie schwierige Sequenzen erstellt werden, und die Leser sollten ihre Perspektive unter diesem Gesichtspunkt abwägen. Die obige Anleitung steht für sich allein und ist nicht von den entsprechenden Diensten abhängig.