Hvad er Ribosomal Exit Tunnel, og hvorfor sætter dens størrelse en hård grænse for forlængelse?
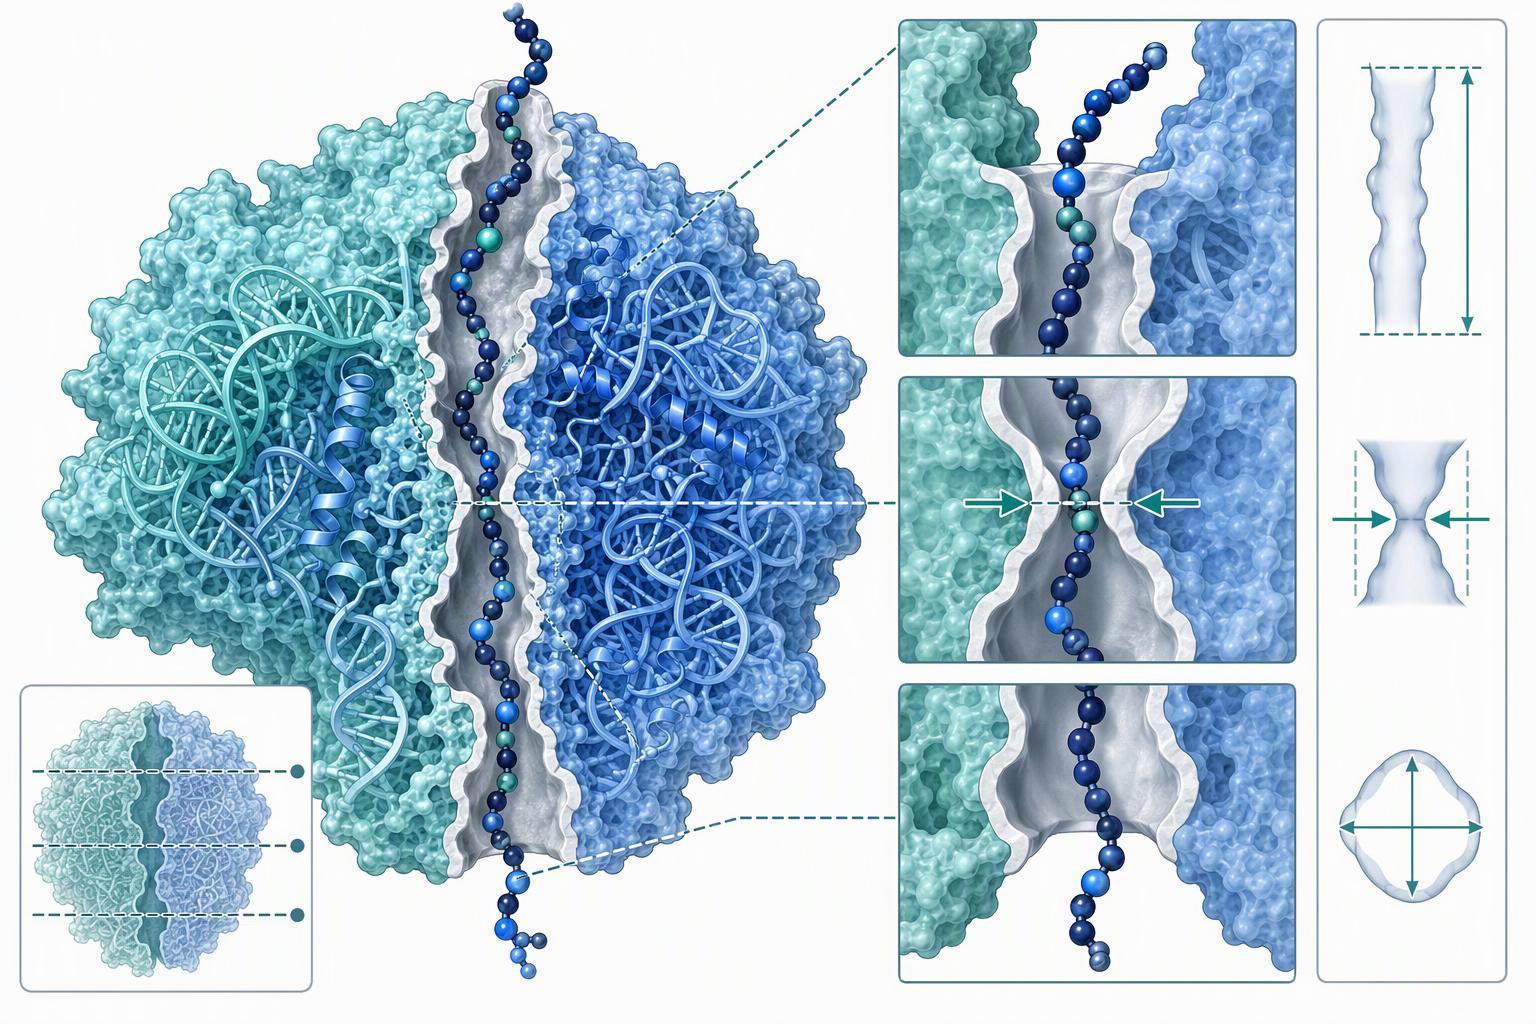
Den geometri konverteres til et restbudget. Et fuldstændigt a-spiralformet polypeptid ville groft begrave 23 rester, hvis de er helt udstrakte og omkring 53 hvis den er fuldstændig α-spiralformet, på 1.5 Åh and 3.5 Å pr. rest hhv (Proteinfoldning ved udgangstunnelen). Målt beskyttelse ligger mellem disse estimater: 30–40 rester beskyttet mod proteolyse, efter Malkin & Rich's 1967 pulse-chase arbejde på begyndende globin i eukaryote polysomer.
De to figurer besvarer forskellige spørgsmål. Proteolysebeskyttelse måler, hvad tunnelen beskytter mod enzymer; bolig måler, hvad der passer inde i ribosomet. EN 2024 preprint syntese af strukturelle, optisk pincet og simuleringsdata rapporterer, at op til 50 rester kan rummes, med ca 30 C-terminale rester udstødt i det sidste trin (Tre epoker med begyndende proteintranslokation gennem ribosomudgangstunnelen, arXiv fortryk). Den fysiske flaskehals er uL4/uL22-indsnævringen, dannet af udvidede løkker af disse proteiner med store underenheder (Proteinfoldning ved udgangstunnelen). Gennemgangen angiver indsnævringens identitet, men ikke dens afstand fra PTC, så afstanden forbliver kvalitativ her frem for estimeret.
Hvor længe bliver et spirende peptid i tunnelen, før en frigivelsesfaktor kan afslutte oversættelsen?
Der er ingen målt sekundskalaværdi for begyndende opholdstid for peptidudgangstunnel. Det tidsopløste cryo-EM måler er akkommodationstrinnet, der går forud for frigivelsen: på 24 ms reaktionstid, 25% af ribosombundet RF1 er i den kompakte præ-akkommodationsform, og indeni 60 ms stort set alle ribosombundne frigivelsesfaktorer er transformeret til deres udvidede former (Det strukturelle grundlag for frigivelsesfaktoraktivering under translationsafslutning afsløret af tidsopløst cryo-EM, Naturkommunikation, 2019).
Den samme undersøgelse fikserer peptidets position på hvert punkt. På 60 ms er det RF1-bundne ribosomensemble domineret af den udvidede form, med det accommoderede kompleks og tripeptidet stadig i udgangstunnelen; ved 45 s tripeptiddensiteten ikke længere er til stede i tunnelen. Frigivelsesfaktorsekvestrering under oversættelsesafslutning er derfor ikke øjeblikkelig, og vinduet mellem stop-codon-indgang og hydrolyse er, hvor sekvensafhængig interferens virker.
Selve opsigelsen er en sekvens af definerede trin. Frigivelsesfaktoren binder A-stedet i en katalytisk inaktiv konformation; på stop-codon genkendelse switch loop og domæne 3 omarrangere, GGQ-motivet indsættes i PTC'en, og hydrolyse af peptidyl-tRNA-esterbindingen følger (Strukturelle aspekter af translationsterminering på ribosomet, PMC). Den målte frigivelseshastighed kombinerer tre elementære trin: frigivelsesfaktor konformationsændring, hydrolyse af peptidet, og dissociation af peptidet fra ribosomet (Dynamisk grundlag for troskab og hurtighed i oversættelse, PMC, 2017).
Den nedbrydning forklarer, hvorfor kodonidentitet betyder så meget. Ændring af kodonet ændrede både frigivelsesfaktorens dissociationshastighed og den målte frigivelseshastighed med op til tre størrelsesordener, uden væsentlig ændring i den oprindelige associationsrate. Samlet oversættelse løber på ca 20 aminosyrer pr. sekund in vivo, svarende til 50 ms pr. kodon, så en tunnelbelægning på 30 til 40 rester svarer nogenlunde til 1.5 til 2 sekunders transit med den hastighed. Behandl det som et afledt skøn, ikke en målt konstant.
Hvilke sekvenser ændrer den timing, og hvad viser de målte beviser?
Mod det korte vindue, en håndfuld sekvensmotiver tipper balancen pålideligt, og de fleste af dem virker ved at forstyrre frigivelsesfaktorsekvestrering under oversættelsesafslutning. Prolin i C-terminalen ved siden af et stopkodon er det dominerende standsningssignal. En genetisk screening af tilfældige peptidbiblioteker i E. coli fandt, at den mest almindelige årsag til at gå i stå, ind over 90% af kloner, er ineffektiv afslutning ved sekvensen Pro-Stop, med det opale stopkodon UGA overrepræsenteret ved 23 af 29 kloner og Glu overrepræsenteret kl 16 af 29 i −2 positionen (Genetisk identifikation af nyopståede peptider, der inducerer ribosomstop, PMC, 2009). Frigivelse er især ineffektiv, når Pro-Stop er forudgået af Asp, Glu, eller Pro. Dette er en enkelt skærm, og frekvenserne er klontællinger fra ét selektionssystem, ikke befolkningstal.
Forlængelse-fase motiver er lige så specifikke. Tre på hinanden følgende proliner er nødvendige og tilstrækkelige til robust stalling, og robust stalling af PP(X) opstår, når X er Asn, Asp, Glu, Gly, Pro, eller Trp (Nydende peptider, der blokerer proteinsyntese i bakterier, PMC). Det samme arbejde definerer forlængelseskonsensus som RxPP og HGPP, og et afslutningsmotiv som DTS-stop.
SecM arrestmotivet FxxxxWIxxxxGIRAGP viser, hvor langt opstrøms et motiv kan nå. En Trp sidekæde 11 rester opstrøms for stallstedet binder nær indsnævringen, Arg tre resterne opstrøms sidder tæt på PTC, og uomsat Pro-tRNA er bundet til A-stedet (Nydende peptider, der blokerer proteinsyntese i bakterier, PMC). Den kritiske Pro166 er ikke inkorporeret i den stoppede kæde, og uomsat Pro-tRNA forbliver i A-stedet (Modulering af aktiviteten af peptidyltransferasecentret i ribosomet, PMC, 2008).
EN 2025 cryo-EM-struktur tilføjer en anden mekanisme i samme trin. PepNL mini-hårnålen blokerer RF2 ved stopkodonen: PepNL er en 14-aminosyre ORF, der standser translation ved UGA15 ved at hæmme RF2, og dens næstsidste Ile13 optager lommen dannet af A2451, C2452, og U2506 af 23S rRNA, støder sterisk sammen med GGQ-motivet af RF2 (Et mini-hårnåleformet begyndende peptid blokerer translationsterminering, Naturkommunikation, 2025). Efter stop-codon-gennemlæsning migrerede ribosomet med ca. én aminosyre pr. minut versus 4.8 til 26.4 minut i PURE-systemet.
Nøgle takeaway: De rester, der betyder noget, er positionelle, ikke kompositorisk. At flytte et motiv nogle få rester ændrer resultatet, og det er risikoen for trunkering af peptidekspression, som en sekvensfil kan markere, før ethvert bench-arbejde starter.
Den praktiske konsekvens er, at prolinrige og næstsidste restmekanismer går igen på tværs af uafhængige selektionssystemer, altså en C-terminal Pro efterfulgt af et stopkodon, eller et løb af proliner midt i sekvensen, er et flag på sekvensfilen i stedet for en overraskelse ved gelen.
Hvorfor afkortes vanskelige eller ukonventionelle sekvenser, Bås, eller Udtryk dårligt?
Kommerciel peptidsyntese Lavt udbytte på en vanskelig sekvens læses normalt som ét problem. Det er mindst tre, og de har brug for forskellige rettelser. Oversættelsessiden går i stå, stop-codon-uafhængig drop-off, og post-translationel ustabilitet reducerer alle den endelige mængde af produkt i fuld længde, hvilket er grunden til, at risikoen for trunkering af peptidekspression så ofte tilskrives det forkerte trin.
Mekanismen på oversættelsessiden starter inde i tunnelen. PTC katalyserer peptidbindingsdannelse og, sammen med frigivelsesfaktor, frigivelse af peptid, og dets aktivitet moduleres ved signalering fra peptidudgangstunnelen (Modulering af aktiviteten af peptidyltransferasecentret i ribosomet, RNA samfund, 2008). To navngivne peptider viser retningen af denne signalering: SecM går i stå ved at hæmme dannelse af peptidbindinger, og TnaC undertrykker den frigivelsesfaktor-inducerede hydrolytiske aktivitet af PTC'en inde fra tunnelen. Tidlig forlængelse er, hvor dette er mest skrøbeligt. De fleste peptider med fem rester ville nå et kritisk område af PTC-hulrummet, og små rester ved positioner 3 til 5 hindre tragten mod tunnelen, fordi den konformationelle frihed, de giver, forhindrer kæden i at orientere sig mod indgangen (Jia, Wang & Lehmann, Videnskabelige rapporter 11:24061, 2021). Den syvende rest sidder på niveau med U2609.
Når stalling ikke er løst, kvalitetskontrollen tager over. Kolliderede ribosomer er den universelle signatur på stalling, og stoppede ribosomer er defineret af en tom mRNA-kanal i A-stedet (Detektering og redning af fastlåste ribosomer, PMC, 2021). Ved de ribosomer, Pelota/Dom34 leveret af Hbs1 mangler GGQ-motivet og efterlader peptidyl-tRNA på den store underenhed, mens ZNF598/Hel2 ubiquitylerer 40S-proteiner og rekrutterer ASC-1/RQT; det splittede 60S bevarer peptidyl-tRNA, som ribosomkvalitetskontrolvejen nedbryder (Kvalitetskontrol og signalveje ved stoppede ribosomer, Eksperimentel & Molekylær medicin, 2026).
Ingen kilde læst her giver en trunkeringsfrekvens i sig selv, så behandle enhver procentdel, du ser anført for en bestemt sekvens, som ubekræftet. Det, der måles, er hyppigheden af selve den stop-codon-uafhængige drop-off hændelse, og det er det tal, man skal ræsonnere ud fra.
⚠️ Advarsel: Tre fejltilstande, tre kendetegnende observerbare. Oversættelse på siden viser kolliderede ribosomer og en peptidyl-tRNA-pulje, som kvalitetskontrol aktivt fjerner. Stop-kodon-uafhængig drop-off frigiver et trunkeret produkt, mens ribosomet bliver ved med at oversætte, så den afkortede art fremstår uden en standset-ribosomsignatur. Post-translationel ustabilitet giver produkt i fuld længde ved frigivelse, der nedbrydes efterfølgende, så tabet skalerer med tid og håndtering frem for med udtryk. Tildel dit lave udbytte til den forkerte, og den konstruktionsændring, du laver, vil ikke flytte den.
Hvad kan ændres i en konstruktion for at reducere denne risiko?
Peptid 1 Fabrik Hvis mekanismen er på sekvensniveau, det samme er afhjælpningen. Det første håndtag er C-terminalen. Fordi Pro-Stop er den dominerende anholdelsesklasse, og frigivelse er især ineffektiv, når Pro-Stop er forudgået af Asp, Glu, eller Pro (Genetisk Lang peptidsyntese Identifikation af begyndende peptider, der inducerer ribosomstopp), en terminal Pro, der støder op til stopkodonet, er en defekt på sekvensniveau, som kan fjernes før enhver ekspressionskørsel.
Det andet håndtag er prolinløbet. Tre på hinanden følgende Pro-kodoner er nødvendige og tilstrækkelige til robust stalling, og PP(X) går i stå, når X er Asn, Asp, Glu, Gly, Pro, eller Trp (Nydende peptider, der blokerer proteinsyntese i bakterier). Den samme kilde rapporterer, at EF-P ophæver stalling ved polyprolin-strækninger, men har ringe eller ingen effekt på andre stalling-peptider, inklusive RxPP, DTS-stop, og Glu-Pro-stop. Den sondring er handlebar: polyprolin stalling er et værtsfaktor spørgsmål, mens de øvrige motiver slet ikke reddes af EF-P.
Det tredje håndtag er den tidlige kæde. De fleste peptider med fem rester ville nå et kritisk område af PTC-hulrummet, hvilket kan resultere i peptidjamming, hvis den N-terminale rest ikke er orienteret mod tunnelindgangen, og små aminosyrer i positioner 3 til 5 giver høj konformationel frihed, der kan forhindre peptidet i at blive ledet mod tunnelen. Den 7. aminosyre sidder på niveauet U2609, som kan være en nøglerest, der sikrer integration af det begyndende peptid inde i udgangstunnelen. Forankring af initiator-methionin i tunnelen ville gøre det muligt for peptidet at blive udrettet fra starten.
Det fjerde håndtag er værten. Forlængelsehastighed i bakteriegennemsnit 10 til 20 rester pr. sekund og 4 til 5 i eukaryoter, og fase I, N-terminalen, der krydser tunnelen, er anslået til 2 til 12 sekunder (Tre epoker med begyndende proteintranslokation gennem ribosomudgangstunnelen, arXiv fortryk). Et langsommere ribosom ændrer, hvor længe et marginalt motiv sidder i en position til at forstyrre, hvilket er en af grundene til, at den samme konstruktion kan opføre sig forskelligt på tværs af værter.
Hvilken analytisk evidens er nødvendig, før et resultat med en vanskelig sekvens behandles som reproducerbart?
Når konstruktionen er fikset, det resterende spørgsmål er, hvilke beviser der gør resultatet troværdigt. Identitet og renhed er separate påstande og kræver separate beviser. ICH Q6B kræver identitetstest, der er meget specifikke for molekylet og angiver, at mere end én test kan være nødvendig (I Q6B: Specifikationer: Testprocedurer og acceptkriterier for bioteknologiske/biologiske produkter, jeg, 1999). Et enkelt bånd på en gel er ikke en identitetstest.
Renhed skal defineres i forhold til en metode. Peptidrenhed beskriver andelen af målpeptidet i forhold til beslægtede syntesebiprodukter, trunkerede sekvenser, slette produkter, eller andre urenheder, der er synlige under den valgte analysemetode, og en nyttig specifikation angiver målet Peptid 1 Engroshandel renhed, den analytiske tilgang, efterspurgt dokumentation, og eventuelle særlige projektforventninger inden produktionen begynder. EN 95% specifikation kan passe til mange forsknings- og screeningsarbejdsgange, mens 98% kan vælges til mere krævende analytisk, biologiske, eller formuleringsfølsomme applikationer.
For en svær sekvens, fejltilstandene er kendte og bør nævnes i specifikationen. Nogle sekvenser er i sagens natur vanskelige på grund af hydrofobicitet, længde, oplade, eller tilbøjelighed til at aggregere, og vanskeligheder er drevet af sekvensadfærd, inklusive aggregering, sekundær struktur, steriske effekter, eller labile motiver, frem for længden alene. Højere renhed kan forbedre fortolkningen, men det kan øge omkostningerne og reducere udbyttet, især til svære sekvenser.
Reproducerbarhedsspørgsmålet besvares af data på partiniveau, ikke alene ved et analysecertifikat. Fordi trunkering opstår fra et stoppet ribosom, hvis peptidyl-tRNA nedbrydes af RQC-vejen (Kvalitetskontrol og signalveje ved stoppede ribosomer), en afkortet art er et særskilt produkt med sin egen masse, og det vil vises i det samme kromatografiske vindue på tværs af kørsler, hvis konstruktionen er uændret. Lot-specifikke HPLC- og MS-data, der opløser den trunkerede art fra målet, anført mod den metode, der anvendes til at definere renhed, er det, der gør et vanskeligt resultat forsvarligt.
Hvornår bør en vanskelig sekvens laves ved kemisk syntese i stedet for ribosomalt udtryk?
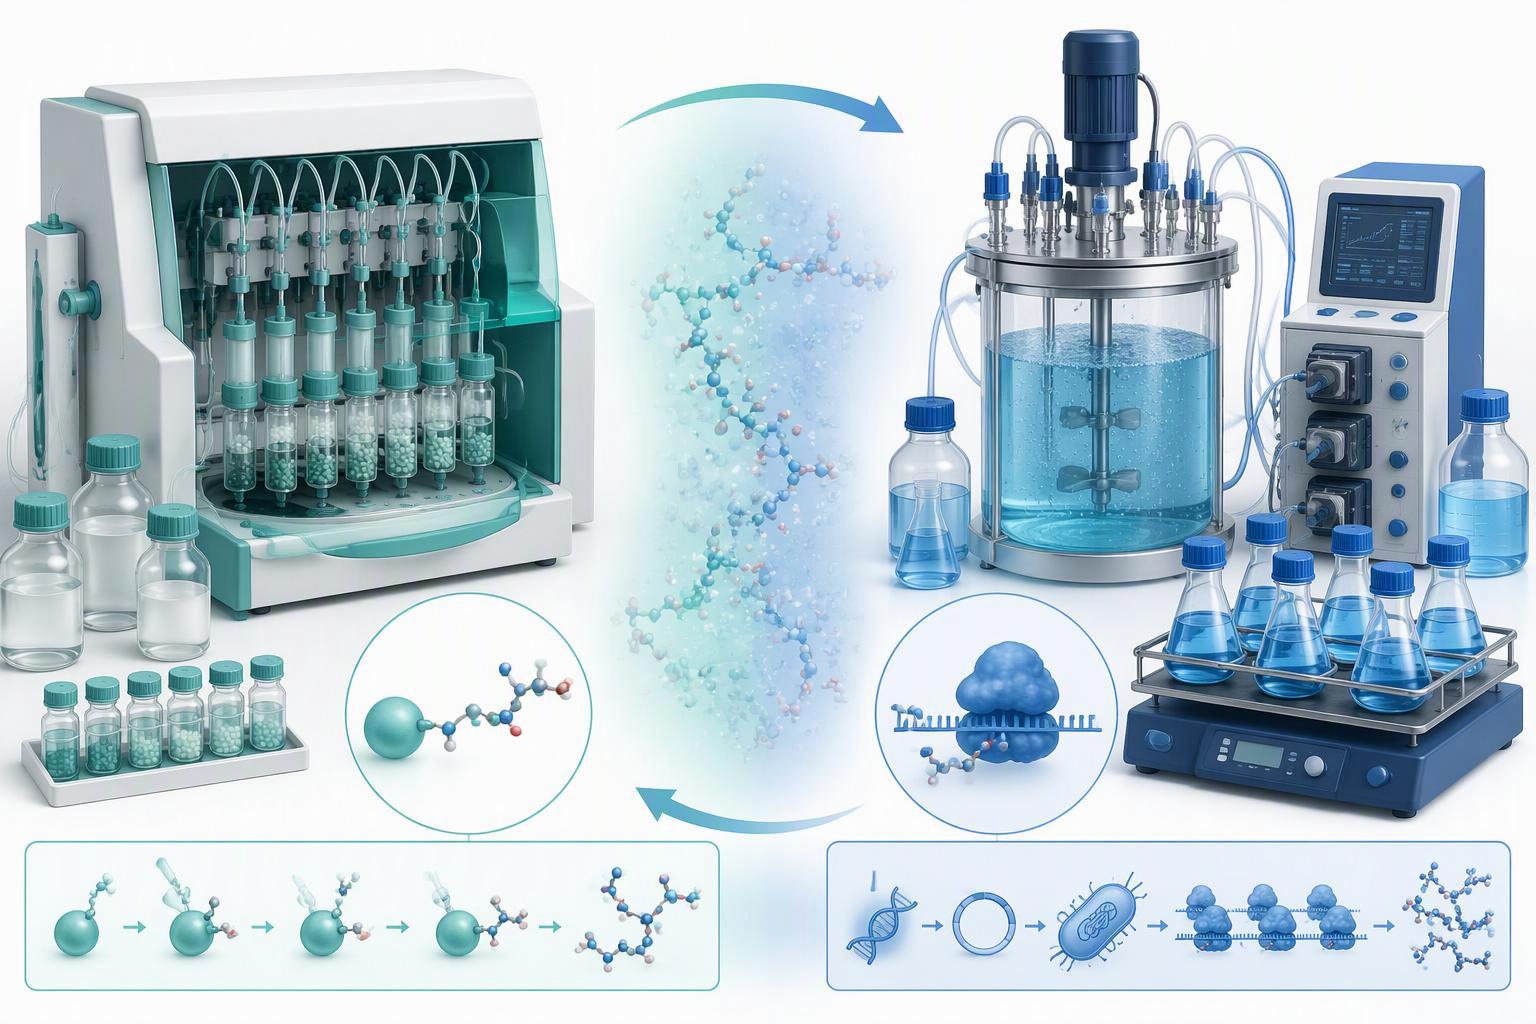
For nogle sekvenser, ingen mængde analytisk stringens fastlægger en rute, som ribosomet ikke vil fuldføre. Markedsmønsteret er klart, selv hvor head-to-head data ikke er det: 31 af 38 nyligt godkendte små peptidlægemidler er kemisk syntetiseret, og aminosyrelængde, molekylvægt, og strukturel kompleksitet spor med, om et lægemiddel er fremstillet rekombinant eller kemisk (Kemisk vs. Rekombinant: Fremstillingsbeslutningerne bag Blockbuster-peptidstoffer, Decibio, 2026). Kemisk syntese passer til små til mellemstore mængder med stram renhedskontrol; rekombinant bliver mere omkostningseffektiv og skalerbar ved større mængder og længere sekvenser. I 2021 FDA udsendte en vejledning, der forventer, at generiske peptidlægemidler fremstilles kemisk.
Længdegrænsen er retningsbestemt, ikke målt. Sekvenser overstået 30 til 50 rester er ofte markeret som vanskelige, og vanskeligheder er drevet af sekvensadfærd frem for længde alene (Vanskelig & Udfordrende peptider, Biosyntese). At 30 til 50 resttærskel er leverandørframing snarere end et målt resultat. Der findes ingen kontrolleret head-to-head udbytte eller renhedssammenligning mellem de to ruter i den publicerede litteratur, så grænsen er et afvejningsbånd, ikke en afskæring.
Mekanismen argumenterer for den samme konklusion fra den anden side. En sekvens, der stopper ribosomet, vil blive håndteret dårligt af den ribosomale rute uanset skala, og anholdelsesmotiverne er specifikke nok til at kontrollere, før de begår: en C-terminal prolin ved siden af et stopkodon, et løb på tre eller flere proliner, eller en næstsidste rest, der kan forvrænges ind i GGQ-lommen. Hvor disse funktioner er til stede, og den nødvendige mængde er lille til medium, kemisk syntese fjerner den ribosomale begrænsning helt.
Hvor rækkefølgen er ren og mængden stor, den rekombinante rutes omkostnings- og skalafordele gælder. Vanskelig peptidsekvenskarakterisering starter derfor med en rutebeslutning, der er taget før den første ekspressionskørsel, ikke et redningsforsøg, efter at en trunkeringsstige dukker op. Biotinyleret peptidsyntese
Hvad tager folk galt med udgangstunnelen?
Den anden fejl antager, at tunnelen inducerer helicitet universelt. Effekten er sekvensafhængig: FRET-arbejde viste, at en sekretorisk proteinsekvens er mindre spiralformet end en membranproteinsekvens inde i den eukaryote tunnel, og opløselige proteinsekvenser har ubetydelig helicitet inden i eller uden for den, mens cryo-EM kun detekterede spiralstruktur for sekvenser med høj spiralformet tilbøjelighed (Proteinfoldning ved udgangstunnelen). Om α-helixer kan dannes på korte begyndende peptider under fase I, før N-terminalen forlader tunnelen, er eksplicit ikke klart i kilden.
Den tredje fejl er at læse 30-til-40-resttallet som en enkelt målt konstant. Det er en række fra proteolysebeskyttelse, og det måler noget andet end tallet på op til 50-rester (Tre epoker med begyndende proteintranslokation gennem ribosomudgangstunnelen, arXiv fortryk). Sammenblanding af de to giver et kapacitetsestimat, der er forkert i begge retninger.
Den fjerde fejl behandler den kompakte frigivelsesfaktorform som simpelthen inaktiv. Den tidligere framing kalder den katalytisk inaktiv og den åbne form katalytisk kompetent (Strukturelle aspekter af translationsterminering på ribosomet), mens den tidsbestemte undersøgelse kalder det pre-accommodation og bemærker, at kompakte frigivelsesfaktorer binder A-stedet uanset afkodningscenterets konformation, med den selektive fordel er hurtig binding og dissociation i en nøjagtighedsmaksimerende tilstand (Det strukturelle grundlag for frigivelsesfaktoraktivering under translationsafslutning afsløret af tidsopløst cryo-EM). Pre-accommodated er det nyere og strukturelt funderede udtryk. Peptid 2 Leverandør
Den femte fejl forventer, at EF-P vil redde ethvert prolinproblem. EF-P fjerner stalling ved polyprolin-strækninger, men har ringe eller ingen effekt på RxPP, DTS-stop, eller Glu-Pro-stop går i stå (Nydende peptider, der blokerer proteinsyntese i bakterier).
Næste trin for en sekvens, du allerede har mistanke om
Start med sekvensfilen, ikke udtrykket køre. Marker hver C-terminal Pro inden for to rester af et stopkodon, hver gang af tre eller flere på hinanden følgende proliner, og positionernes identitet 3 ved 5 og position 7. Det er de træk, som beviserne ovenfor forbinder med at gå i stå, og de er synlige, før nogen reagens er begået.
Bestem derefter ruten. Hvis de markerede funktioner er til stede, og mængden er lille til medium, kemisk syntese fjerner den ribosomale begrænsning, i overensstemmelse med det mønster, der 31 af 38 nyligt godkendte små peptidlægemidler er kemisk syntetiseret (Kemisk vs. Rekombinant: Fremstillingsbeslutningerne bag Blockbuster-peptidstoffer, Decibio, 2026). Hvis rækkefølgen er ren, og mængden er stor, konstruktionshåndtagene, vært valg, og den analytiske pakke ovenfor er dem, der skal specificeres.
Skriv specifikationen før produktion. Angiv målrenheden, den analytiske tilgang, den ønskede dokumentation, og eventuelle særlige projektforventninger, og kræver partispecifikke HPLC- og MS-data, der opløser den trunkerede art fra målet mod den angivne metode. ICH Q6B’s krav om, at identitetstests skal være meget specifikke for molekylet, med mere end én test, hvor det er nødvendigt, er gulvet frem for loftet (I Q6B, jeg, 1999).
En grænse skal rejse med planen. Ingen kilde læst her rapporterer en målt opholdstid i sekundskala for et begyndende peptid i tunnelen, og flugttider fra simulering, mikrosekunder til millisekunder, er ikke blevet eksperimentelt valideret (Tre epoker med begyndende proteintranslokation gennem ribosomudgangstunnelen, arXiv fortryk). Opholdstid er en afledt størrelse, og enhver leverandørsamtale, der behandler det som en målt konstant, er foran beviserne.
Ofte stillede spørgsmål
Begrænser udgangstunnelens bredde, hvilke peptider der kan udtrykkes?
Ingen. Tunnelen er bred nok til en fuldt forlænget kæde og endda en α-helix, så størrelse alene blokerer sjældent for udtryk. Grænsen er kinetisk: en sekvens, der holder den begyndende kæde i tunnelen for lang, eller i det forkerte register, kan stoppe forlængelse eller forstyrre frigivelsen. Bredde sætter geometrien; timing bestemmer resultatet.
Er stalling og trunkering den samme fejl?
Ingen, og behandle dem som man sender fejlfinding i den forkerte retning. Stalling er en pause i forlængelsen, og ribosomet kan ofte genoptages, når forhindringen forsvinder. Trunkering er det permanente resultat: ribosomet ophører tidligt, eller produktet i fuld længde er nedbrudt, og den kortere kæde er, hvad du genvinder. En stall, der løser efterlader ingen afkortede arter; en stall, der ikke løser sig, gør det normalt.
Hvordan skelner jeg et problem på oversættelsessiden fra et opløselighedsproblem?
Se på, hvor produktet går hen, ikke kun hvor meget du får. Et problem på oversættelsessiden giver en stige med kortere bånd på gel, hvilket peger på for tidlig afslutning inde i tunnelen. Et opløselighedsproblem giver den rigtige molekylvægt i den uopløselige fraktion, med lidt eller ingen i den opløselige pool. Kør begge fraktioner, før du ændrer konstruktionen, fordi rettelsen er forskellig for hver.
Kan kodonoptimering redde et stilstandsmotiv?
Synonyme kodonændringer bevarer det kodede peptidmotiv, men kan ændre translationskinetik og mRNA-adfærd. De kan påvirke ekspression eller pause i nogle sammenhænge uden nødvendigvis at fjerne en peptid-medieret standsningsmekanisme. Test den foreslåede ændring eksperimentelt.
Hvilken renhedsspecifikation passer til en svær sekvens?
Indstil målet før produktion, ikke efter. EN 95% specifikation kan passe til mange forsknings- og screeningsarbejdsgange, mens 98% kan vælges til krævende analytisk, biologiske, eller formuleringsfølsomt arbejde; højere renhed kan forbedre fortolkningen, men kan øge omkostningerne og lavere udbytte for en vanskelig sekvens. Identiteten skal bekræftes af tests, der er meget specifikke for molekylet, med mere end én test, hvor det er nødvendigt (I Q6B, jeg, 1999).
Kan opholdstidsestimatet bruges prædiktivt i dag?
Ikke som en kvantitativ forudsigelse. Tallene for opholdstid kommer fra strukturelt og enkeltmolekyle arbejde med specifikke sekvenser og forhold, og de er ikke en generel model, der tager en vilkårlig sekvens og returnerer en stall-sandsynlighed. Brug dem til at ræsonnere om, hvilke konstruktioner der har højere risiko, og til at beslutte, hvad der skal måles, bekræft derefter med dit eget udtryk og karakteriseringsdata.
Konklusion
Designresponsen følger af disse ankre. Flag C-terminal Pro ved siden af et stopkodon, flagløb af tre eller flere proliner, kontrollere positioner 3 ved 5 og position 7, og vælg værten med forlængelseshastigheden i tankerne. Hvor de markerede funktioner er til stede, og mængden er lille til medium, kemisk syntese fjerner den ribosomale begrænsning; hvor rækkefølgen er ren og mængden stor, konstruktionshåndtagene og den analytiske pakke bærer risikoen.
To grænser bør rejse med enhver beslutning. Opholdstid i tunnelen er en afledt størrelse, ikke en målt konstant, og de simuleringsbaserede flugttider er ikke blevet eksperimentelt valideret. Afstanden fra PTC til indsnævringen blev ikke bekræftet i kilderne læst her. En leverandørsamtale, der er præcis omkring de grænser, og om HPLC- og MS-data på partiniveau, der vil opløse en trunkeret art fra målet, er den, der holder, når næste løb sammenlignes med sidste.
Om forlaget. MOL Changes er en peptidforsknings- og udviklingsorganisation, der tilbyder tilpasset sekvensdesign, syntese og produktion, herunder fastfase- og mikrobielle fermenteringsruter. Det har derfor en kommerciel interesse i, hvor svære sekvenser der laves, og læserne bør afveje dets perspektiv med det i tankerne. Ovenstående vejledning står for sig selv og er ikke afhængig af dens tjenester.