Đường hầm thoát Ribosome là gì, và tại sao kích thước của nó đặt ra giới hạn cứng cho độ giãn dài?
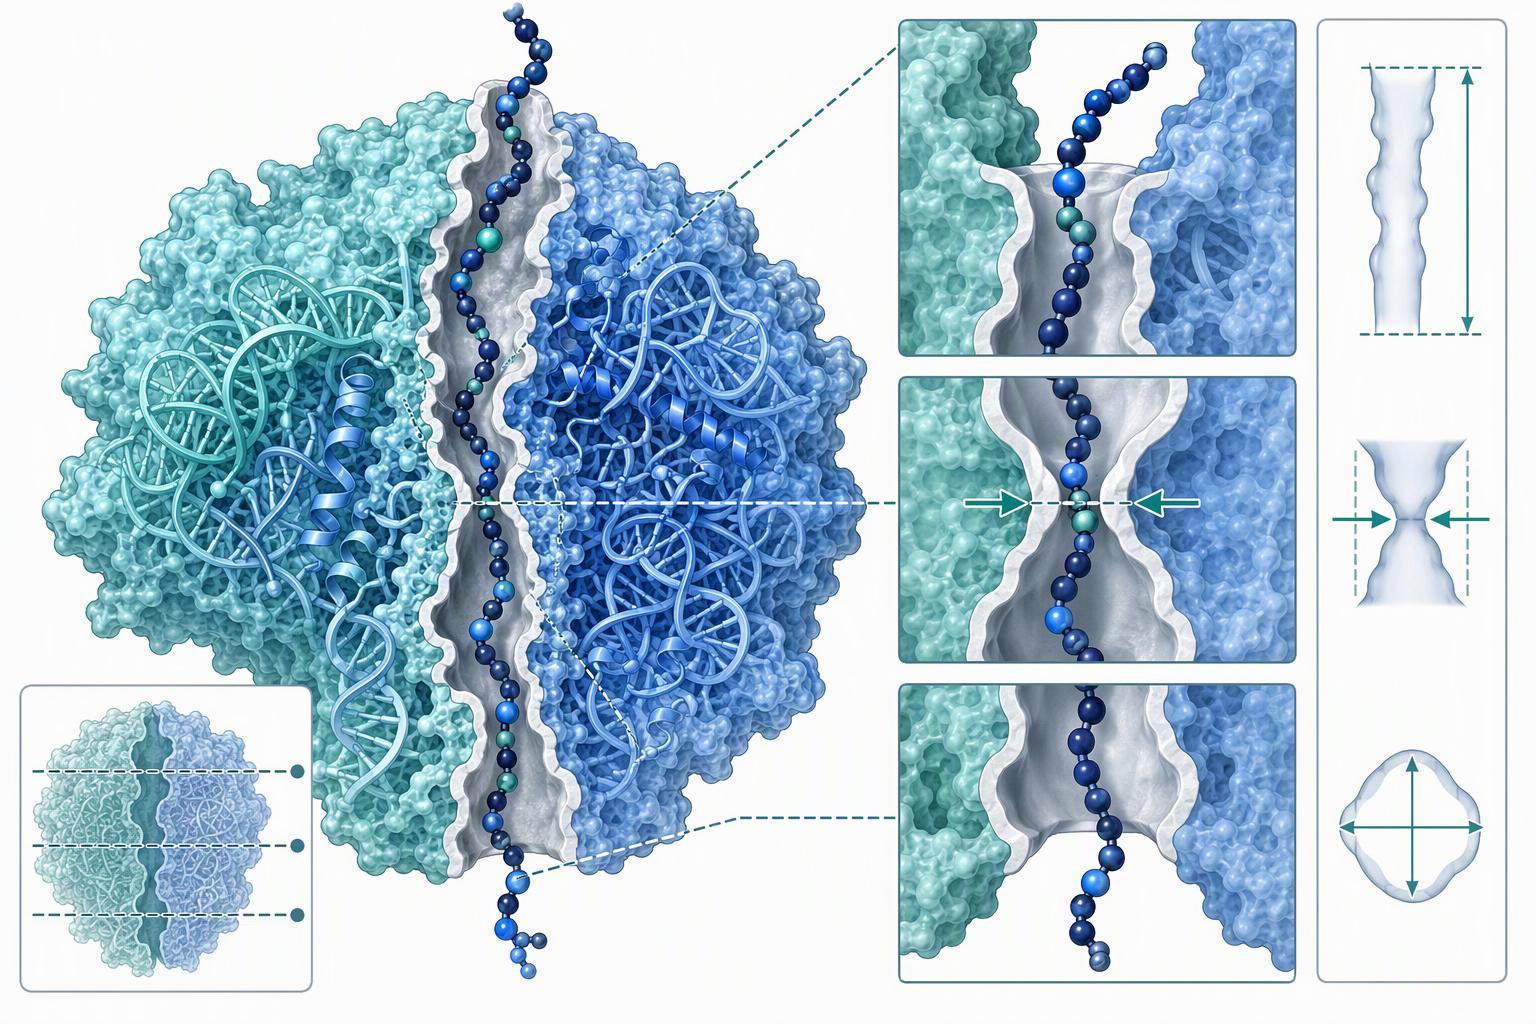
That geometry converts into a residue budget. A fully α-helical polypeptide would bury roughly 23 residues if fully extended and about 53 if fully α-helical, Tại 1.5 Å and 3.5 Å per residue respectively (Protein Folding at the Exit Tunnel). Mức độ bảo vệ được đo lường nằm giữa những ước tính đó: 30–40 gốc được bảo vệ khỏi sự phân giải protein, theo dõi Malkin & giàu có 1967 công việc đuổi bắt xung trên globin mới sinh trong các polysome nhân chuẩn.
Hai nhân vật trả lời các câu hỏi khác nhau. Bảo vệ phân giải protein đo lường những gì đường hầm che chắn khỏi enzyme; đo lường chỗ ở phù hợp bên trong ribosome. MỘT 2024 tổng hợp trước khi in cấu trúc, nhíp quang học và báo cáo dữ liệu mô phỏng lên đến 50 dư lượng có thể được cung cấp, với khoảng 30 Dư lượng đầu cuối C được đẩy ra ở giai đoạn cuối (Ba giai đoạn chuyển vị protein mới sinh qua đường hầm thoát ribosome, bản in trước arXiv). Nút thắt vật lý là điểm thắt uL4/uL22, được hình thành bởi các vòng mở rộng của các protein tiểu đơn vị lớn đó (Protein Folding at the Exit Tunnel). Đánh giá nêu rõ danh tính của nút thắt nhưng không nêu khoảng cách của nó với PTC, nên khoảng cách đó ở đây vẫn mang tính chất định tính hơn là ước tính.
Một peptide mới sinh tồn tại trong đường hầm bao lâu trước khi yếu tố giải phóng có thể chấm dứt quá trình dịch mã?
Không có giá trị thang đo giây nào được đo cho thời gian cư trú trong đường hầm thoát peptide mới sinh. Các biện pháp cryo-EM được giải quyết theo thời gian là bước điều chỉnh trước khi phát hành: Tại 24 thời gian phản ứng ms, 25% của RF1 gắn với ribosome ở dạng tiền điều tiết nhỏ gọn, và bên trong 60 ms hầu như tất cả các yếu tố giải phóng gắn với ribosome đã chuyển sang dạng mở rộng của chúng (Cơ sở cấu trúc để kích hoạt yếu tố giải phóng trong quá trình chấm dứt dịch thuật được tiết lộ bởi cryo-EM được giải quyết theo thời gian, Truyền thông thiên nhiên, 2019).
Nghiên cứu tương tự xác định vị trí của peptide tại mỗi điểm. Tại 60 ms quần thể ribosome gắn với RF1 bị chi phối bởi dạng mở rộng, với phức hợp được điều chỉnh và tripeptide vẫn còn trong đường hầm thoát; qua 45 s mật độ tripeptide không còn hiện diện trong đường hầm. Do đó, việc cô lập hệ số giải phóng trong quá trình kết thúc dịch mã không diễn ra ngay lập tức, và khoảng thời gian giữa sự xâm nhập của codon dừng và quá trình thủy phân là nơi xảy ra các tác động can thiệp phụ thuộc vào trình tự.
Bản thân sự kết thúc là một chuỗi các bước được xác định. Yếu tố giải phóng liên kết vị trí A ở dạng không có hoạt tính xúc tác; về nhận dạng stop-codon, vòng lặp chuyển đổi và miền 3 sắp xếp lại, họa tiết GGQ được chèn vào PTC, và thủy phân liên kết este peptidyl-tRNA sau đó (Các khía cạnh cấu trúc của sự kết thúc dịch mã trên ribosome, PMC). Tốc độ giải phóng đo được kết hợp ba bước cơ bản: thay đổi về hình dạng của yếu tố phát hành, thủy phân peptit, và sự phân ly peptide từ ribosome (Cơ sở năng động của độ trung thực và tốc độ trong dịch thuật, PMC, 2017).
Sự phân rã đó giải thích tại sao nhận dạng codon lại quan trọng đến vậy. Việc thay đổi codon đã thay đổi cả tốc độ phân ly của hệ số giải phóng và tốc độ giải phóng đo được lên đến ba bậc độ lớn, không có thay đổi đáng kể về tỷ lệ liên kết ban đầu. Bản dịch tổng thể chạy vào khoảng 20 axit amin mỗi giây trong cơ thể, tương đương với 50 ms trên mỗi codon, vì vậy sức chứa đường hầm của 30 ĐẾN 40 dư lượng tương ứng với 1.5 ĐẾN 2 số giây vận chuyển với tốc độ đó. Hãy coi đó là ước tính xuất phát, không phải là hằng số đo được.
Trình tự nào thay đổi thời gian đó, và bằng chứng đo lường cho thấy điều gì?
Đối diện với khung cửa sổ ngắn ngủi đó, một số mô típ trình tự đáng tin cậy có thể làm cân bằng sự cân bằng, và hầu hết chúng hoạt động bằng cách can thiệp vào việc cô lập yếu tố giải phóng trong quá trình kết thúc dịch thuật. Proline ở đầu C bên cạnh codon dừng là tín hiệu bắt giữ chủ yếu. Sàng lọc di truyền các thư viện peptide ngẫu nhiên trong E. coli phát hiện ra rằng nguyên nhân phổ biến nhất gây ra tình trạng trì trệ, ở trên 90% của bản sao, việc chấm dứt không hiệu quả ở trình tự Pro-Stop, với codon dừng opal UGA được đại diện quá mức tại 23 của 29 dòng vô tính và Glam đại diện quá mức tại 16 của 29 ở vị trí −2 (Nhận dạng di truyền của các peptide mới sinh gây ra sự ngưng trệ Ribosome, PMC, 2009). Việc phát hành đặc biệt kém hiệu quả khi Pro-Stop đứng trước Asp, keo, hoặc chuyên nghiệp. Đây là một màn hình duy nhất, và tần số là số lượng bản sao từ một hệ thống lựa chọn, không phải tỷ lệ dân số.
Các họa tiết pha kéo dài đều cụ thể như nhau. Ba prolines liên tiếp là cần thiết và đủ để trì hoãn mạnh mẽ, và sự trì trệ mạnh mẽ của PP(X) xảy ra khi X là Asn, Asp, keo, Gly, chuyên nghiệp, hoặc Trp (Các peptide mới sinh ngăn chặn sự tổng hợp protein ở vi khuẩn, PMC). Công việc tương tự xác định sự đồng thuận kéo dài là RxPP và HGPP, và mô-típ chấm dứt là DTS-stop.
Mô-đun bắt giữ SecM FxxxxWIxxxxGIRAGP cho thấy mô-đun ngược dòng có thể đạt được bao xa. Chuỗi bên Trp 11 cặn ở thượng nguồn của vị trí ứ đọng liên kết gần chỗ thắt, dư lượng Arg ba ở thượng nguồn nằm gần PTC, và Pro-tRNA không phản ứng được gắn vào vị trí A (Các peptide mới sinh ngăn chặn sự tổng hợp protein ở vi khuẩn, PMC). Pro166 quan trọng không được đưa vào chuỗi bị đình trệ, và Pro-tRNA không phản ứng vẫn còn ở vị trí A (Điều chỉnh hoạt động của trung tâm peptidyl transferase của ribosome, PMC, 2008).
MỘT 2025 Cấu trúc cryo-EM bổ sung cơ chế thứ hai ở cùng bước. Kẹp tóc mini PepNL chặn RF2 ở codon dừng: PepNL là ORF gồm 14 axit amin có tác dụng ngăn chặn sự dịch mã ở UGA15 bằng cách ức chế RF2, và Ile13 áp chót của nó chiếm vị trí do A2451 tạo thành, C2452, và U2506 của 23S rRNA, xung đột hoàn toàn với mô típ GGQ của RF2 (Một peptide mới hình thành chiếc kẹp tóc nhỏ chặn sự dịch mã, Truyền thông thiên nhiên, 2025). Sau khi đọc qua stop-codon, ribosome di chuyển với tốc độ xấp xỉ một axit amin mỗi phút so với 4.8 ĐẾN 26.4 mỗi phút trong hệ thống PURE.
Chìa khóa mang đi: Các dư lượng quan trọng là vị trí, không thành phần. Di chuyển một mô típ một vài dư lượng sẽ thay đổi kết quả, và đó là nguy cơ cắt bớt biểu thức peptide mà tệp trình tự có thể gắn cờ trước khi bất kỳ công việc chuẩn bị nào bắt đầu.
Hậu quả thực tế là cơ chế giàu proline và dư lượng áp chót tái diễn trên các hệ thống chọn lọc độc lập, vì vậy C-terminal Pro theo sau là codon dừng, hoặc một loạt prolines ở giữa chuỗi, là một lá cờ trên tệp trình tự chứ không phải là một điều bất ngờ ở gel.
Tại sao phải cắt bớt các trình tự khó hoặc khác thường, Quầy hàng, hoặc Thể hiện kém?
Tổng hợp peptide thương mại Năng suất thấp trên một chuỗi khó thường được coi là một vấn đề. Ít nhất là ba, và họ cần những cách sửa chữa khác nhau. Bên dịch bị đình trệ, thả ra độc lập với stop-codon, và sự mất ổn định sau dịch mã đều làm giảm lượng sản phẩm có độ dài đầy đủ cuối cùng, đó là lý do tại sao nguy cơ cắt bớt biểu hiện peptide thường xuyên bị cho là do thực hiện sai bước.
Cơ chế bên dịch bắt đầu từ bên trong đường hầm. PTC xúc tác cho sự hình thành liên kết peptit và, cùng với hệ số giải phóng, giải phóng peptit, và hoạt động của nó được điều chỉnh bằng tín hiệu từ đường hầm thoát peptit (Điều chỉnh hoạt động của trung tâm peptidyl transferase của ribosome, Hiệp hội RNA, 2008). Hai peptide được đặt tên cho thấy hướng truyền tín hiệu đó: SecM ngừng hoạt động bằng cách ức chế sự hình thành liên kết peptide, và TnaC ngăn chặn hoạt động thủy phân do yếu tố giải phóng gây ra của PTC từ bên trong đường hầm. Độ giãn dài sớm là nơi dễ bị tổn thương nhất. Hầu hết các peptide của năm dư lượng sẽ đạt đến vùng quan trọng của khoang PTC, và dư lượng nhỏ tại các vị trí 3 ĐẾN 5 cản trở việc di chuyển về phía đường hầm, bởi vì sự tự do về hình dạng mà chúng mang lại giúp chuỗi không hướng về phía lối vào (Giả, Vương & Lehmann, Báo cáo khoa học 11:24061, 2021). Dư lượng thứ bảy nằm ở cấp độ U2609.
Khi tình trạng trì trệ không được giải quyết, kiểm soát chất lượng tiếp quản. Các ribosome va chạm là dấu hiệu chung của sự trì trệ, và các ribosome bị đình trệ được xác định bởi một kênh mRNA trống ở vị trí A (Phát hiện và giải cứu Ribosome bị đình trệ, PMC, 2021). Tại các ribosome đó, Pelota/Dom34 do Hbs1 phân phối thiếu mô típ GGQ và để lại peptidyl-tRNA trên tiểu đơn vị lớn, trong khi ZNF598/Hel2 phổ biến các protein 40S và tuyển dụng ASC-1/RQT; phần 60S bị phân tách giữ lại peptidyl-tRNA, mà con đường kiểm soát chất lượng ribosome bị suy giảm (Kiểm soát chất lượng và đường truyền tín hiệu tại các ribosome bị đình trệ, thực nghiệm & Y học phân tử, 2026).
Không có nguồn nào được đọc ở đây cung cấp tần số cắt ngắn, vì vậy hãy coi bất kỳ phần trăm nào bạn thấy được trích dẫn cho một chuỗi cụ thể là chưa được xác minh. Những gì được đo là tần suất của chính sự kiện rớt ra không phụ thuộc vào codon dừng, và đó là con số lý do từ.
⚠️ Cảnh báo: Ba chế độ thất bại, ba quan sát phân biệt. Sự đình trệ bên dịch mã cho thấy các ribosome va chạm và nhóm peptidyl-tRNA mà cơ quan kiểm soát chất lượng đang tích cực làm sạch. Stop-codon-independent drop-off releases a truncated product while the ribosome keeps translating, so the truncated species appears without a stalled-ribosome signature. Post-translational instability gives full-length product at release that degrades afterwards, so the loss scales with time and handling rather than with expression. Assign your low yield to the wrong one and the construct change you make will not move it.
Những gì có thể được thay đổi trong một công trình để giảm thiểu rủi ro đó?
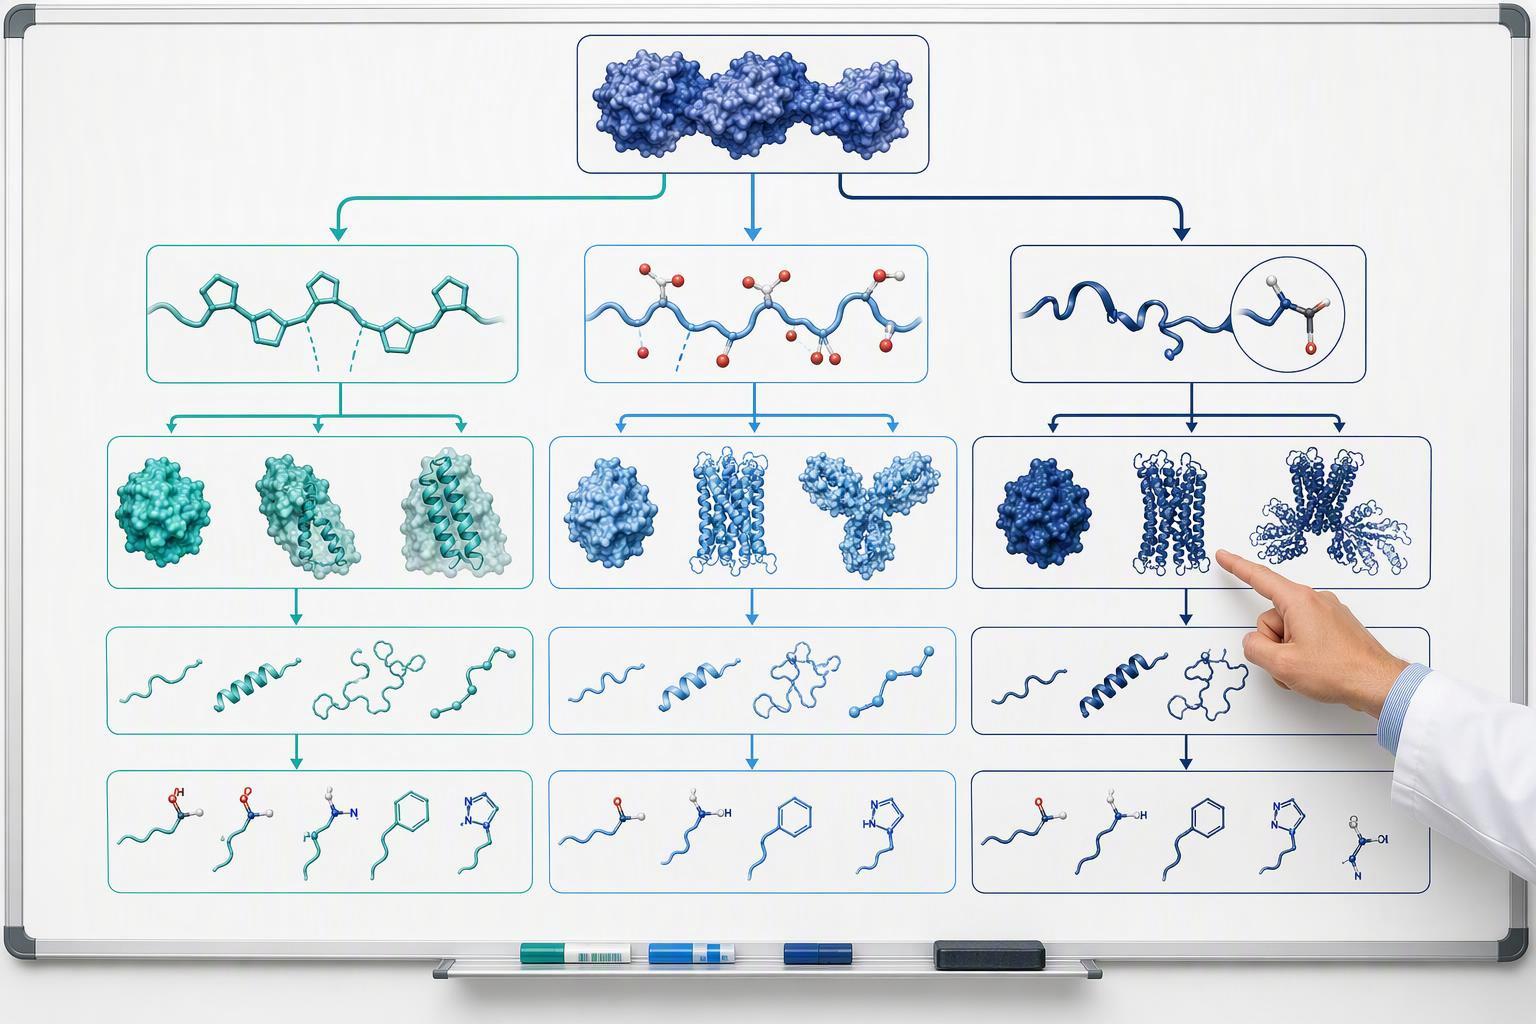
peptit 1 Nhà máy If the mechanism is sequence-level, so is the mitigation. The first lever is the C-terminus. Because Pro-Stop is the dominant arrest class and release is especially inefficient when Pro-Stop is preceded by Asp, keo, hoặc chuyên nghiệp (Genetic Long Peptide Synthesis Xác định các peptide mới sinh gây ra sự ngưng trệ Ribosome), một thiết bị đầu cuối Pro liền kề với codon dừng là một lỗi cấp độ trình tự có thể được loại bỏ trước khi chạy bất kỳ biểu thức nào.
Đòn bẩy thứ hai là chạy proline. Ba codon Pro liên tiếp là cần thiết và đủ để ngăn chặn mạnh mẽ, và PP(X) dừng lại khi X là Asn, Asp, keo, Gly, chuyên nghiệp, hoặc Trp (Các peptide mới sinh ngăn chặn sự tổng hợp protein ở vi khuẩn). Cùng một nguồn báo cáo rằng EF-P loại bỏ tình trạng ngưng trệ ở các đoạn polyproline nhưng có ít hoặc không có tác dụng đối với các peptide bị đình trệ khác, bao gồm cả RxPP, DTS-dừng, và Glu-Pro-stop. Sự khác biệt đó có thể thực hiện được: đình trệ polyproline là một câu hỏi về yếu tố máy chủ, trong khi các họa tiết khác lại không được EF-P giải cứu chút nào.
Đòn bẩy thứ ba là chuỗi đầu. Hầu hết các peptide của năm dư lượng sẽ đạt đến vùng quan trọng của khoang PTC, điều này có thể dẫn đến hiện tượng kẹt peptide nếu phần đầu N không hướng về phía lối vào đường hầm, và các axit amin nhỏ ở vị trí 3 ĐẾN 5 mang lại sự tự do về hình dạng cao có thể ngăn không cho peptide được đưa vào đường hầm. Axit amin thứ 7 nằm ở cấp độ U2609, có thể là dư lượng quan trọng đảm bảo sự tích hợp của peptide mới sinh bên trong đường hầm thoát. Việc neo methionine khởi đầu trong đường hầm sẽ cho phép peptide được làm thẳng ngay từ đầu.
Đòn bẩy thứ tư là chủ nhà. Tốc độ kéo dài trung bình ở vi khuẩn 10 ĐẾN 20 dư lượng mỗi giây và 4 ĐẾN 5 ở sinh vật nhân chuẩn, và Giai đoạn I, đầu N đi qua đường hầm, được ước tính là 2 ĐẾN 12 giây (Ba giai đoạn chuyển vị protein mới sinh qua đường hầm thoát ribosome, bản in trước arXiv). Một ribosome chậm hơn sẽ thay đổi khoảng thời gian mà mô típ cận biên có thể ở vị trí can thiệp, đó là một lý do khiến cùng một cấu trúc có thể hoạt động khác nhau trên các máy chủ.
Cần có bằng chứng phân tích nào trước khi kết quả trình tự khó được coi là có thể tái tạo?
Khi cấu trúc đã được cố định, câu hỏi còn lại là bằng chứng nào làm cho kết quả đáng tin cậy. Danh tính và độ tinh khiết là những tuyên bố riêng biệt và cần bằng chứng riêng biệt. ICH Q6B yêu cầu các xét nghiệm nhận dạng có tính đặc hiệu cao đối với phân tử và cho biết có thể cần nhiều hơn một xét nghiệm (Tôi Q6B: Thông số kỹ thuật: Quy trình thử nghiệm và tiêu chí chấp nhận đối với sản phẩm công nghệ sinh học/sinh học, TÔI, 1999). Một dải duy nhất trên gel không phải là một bài kiểm tra nhận dạng.
Độ tinh khiết phải được xác định theo một phương pháp. Độ tinh khiết của peptide mô tả tỷ lệ của peptide mục tiêu so với các sản phẩm phụ tổng hợp có liên quan, trình tự cắt ngắn, xóa sản phẩm, hoặc các tạp chất khác có thể nhìn thấy được theo phương pháp phân tích đã chọn, và một đặc tả hữu ích nêu rõ mục tiêu peptit 1 Bán buôn sự tinh khiết, phương pháp phân tích, tài liệu được yêu cầu, và bất kỳ kỳ vọng đặc biệt nào của dự án trước khi bắt đầu sản xuất. MỘT 95% đặc điểm kỹ thuật có thể phù hợp với nhiều quy trình nghiên cứu và sàng lọc, trong khi 98% có thể được chọn để phân tích đòi hỏi khắt khe hơn, sinh học, hoặc các ứng dụng nhạy cảm với công thức.
Đối với một trình tự khó, các dạng lỗi đã được biết và phải được đặt tên trong thông số kỹ thuật. Một số trình tự vốn đã khó khăn do tính kỵ nước, chiều dài, thù lao, hoặc xu hướng tổng hợp, và khó khăn được thúc đẩy bởi hành vi trình tự, bao gồm cả tổng hợp, cấu trúc thứ cấp, hiệu ứng không gian, hoặc họa tiết không bền, thay vì chỉ chiều dài. Độ tinh khiết cao hơn có thể cải thiện khả năng diễn giải, nhưng nó có thể làm tăng chi phí và giảm năng suất, đặc biệt đối với những trình tự khó.
Câu hỏi về độ tái lập được trả lời bằng dữ liệu cấp lô, không phải chỉ bằng một chứng chỉ phân tích. Bởi vì sự cắt cụt phát sinh từ một ribosome bị đình trệ có peptidyl-tRNA bị thoái hóa theo con đường RQC (Kiểm soát chất lượng và đường truyền tín hiệu tại các ribosome bị đình trệ), một loài bị cắt cụt là một sản phẩm riêng biệt có khối lượng riêng, và nó sẽ xuất hiện trong cùng một cửa sổ sắc ký trong suốt các lần chạy nếu cấu trúc không thay đổi. Dữ liệu HPLC và MS theo lô cụ thể để phân giải các loài bị cắt bớt khỏi mục tiêu, được nêu chống lại phương pháp được sử dụng để xác định độ tinh khiết, là những gì làm cho một kết quả theo trình tự khó có thể bảo vệ được.
Khi nào nên tạo ra một chuỗi khó bằng tổng hợp hóa học thay vì biểu hiện Ribosome?
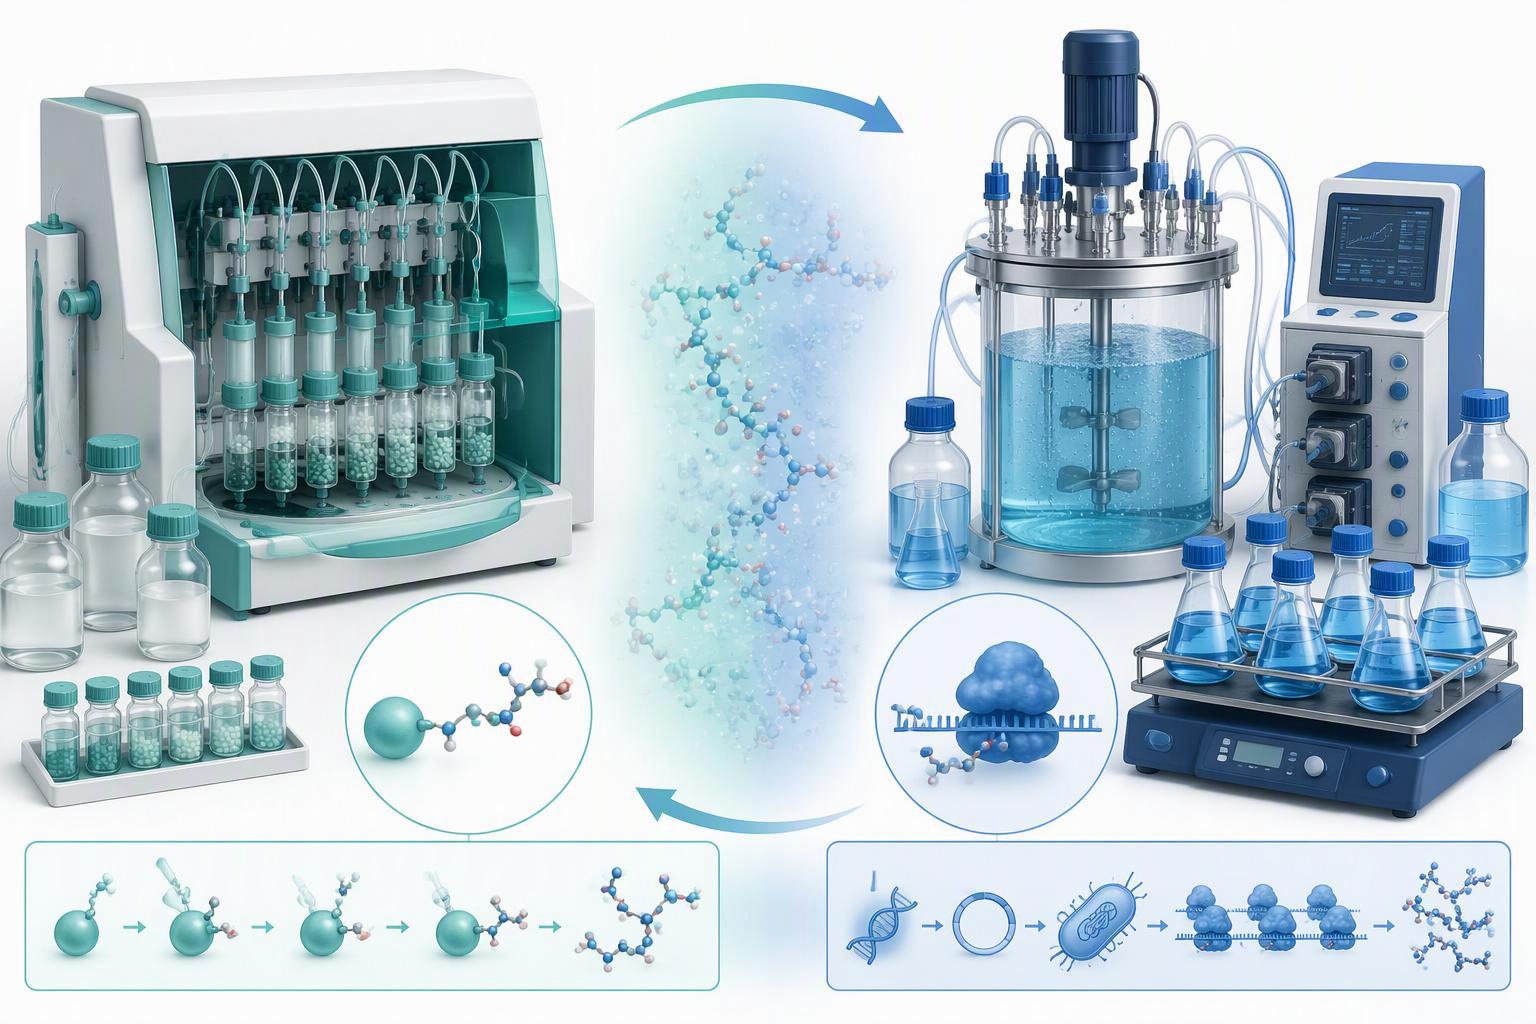
Đối với một số trình tự, không có mức độ phân tích chặt chẽ nào có thể khắc phục được lộ trình mà ribosome sẽ không hoàn thành. Mô hình thị trường rõ ràng ngay cả khi không có dữ liệu đối đầu: 31 của 38 thuốc peptide nhỏ được phê duyệt gần đây được tổng hợp hóa học, và chiều dài axit amin, trọng lượng phân tử, và theo dõi độ phức tạp về cấu trúc để xác định xem thuốc được tạo ra bằng phương pháp tái tổ hợp hay hóa học (Hóa chất vs. tái tổ hợp: Các quyết định sản xuất đằng sau thuốc peptide bom tấn, Decibio, 2026). Tổng hợp hóa học phù hợp với số lượng nhỏ đến trung bình với sự kiểm soát độ tinh khiết chặt chẽ; tái tổ hợp trở nên hiệu quả hơn về mặt chi phí và có thể mở rộng với số lượng lớn hơn và trình tự dài hơn. TRONG 2021 FDA đã ban hành hướng dẫn mong đợi các loại thuốc peptide gốc sẽ được sản xuất bằng phương pháp hóa học.
Ngưỡng độ dài có hướng, không đo được. Trình tự kết thúc 30 ĐẾN 50 dư lượng thường được gắn cờ là khó khăn, và độ khó được điều khiển bởi hành vi trình tự chứ không phải chỉ độ dài (Khó & Peptide đầy thách thức, Tổng hợp sinh học). Cái đó 30 ĐẾN 50 ngưỡng dư lượng là đóng khung của nhà cung cấp chứ không phải là kết quả đo được. Không có so sánh hiệu suất đối đầu hoặc độ tinh khiết được kiểm soát giữa hai tuyến đường trong tài liệu đã xuất bản, vì vậy ranh giới là một dải đánh đổi, không phải là sự cắt đứt.
Cơ chế đưa ra kết luận tương tự từ phía bên kia. Một trình tự ngăn cản ribosome sẽ được xử lý kém bằng con đường ribosome bất kể quy mô, và mô-típ bắt giữ đủ cụ thể để kiểm tra trước khi thực hiện: một proline đầu C bên cạnh một codon dừng, một chuỗi ba hoặc nhiều prolines, hoặc phần dư áp chót có thể biến dạng thành túi GGQ. Trường hợp có những tính năng đó và số lượng yêu cầu là nhỏ đến trung bình, tổng hợp hóa học loại bỏ hoàn toàn ràng buộc ribosome.
Trường hợp trình tự rõ ràng và số lượng lớn, áp dụng lợi thế về quy mô và chi phí của tuyến đường tái tổ hợp. Do đó, việc xác định đặc tính trình tự peptide khó bắt đầu bằng quyết định lộ trình được thực hiện trước khi chạy biểu thức đầu tiên, không nỗ lực giải cứu sau khi một chiếc thang cắt ngắn xuất hiện. Tổng hợp peptide biotatin hóa
Mọi người hiểu sai điều gì về đường hầm thoát hiểm?
Lỗi thứ hai là cho rằng đường hầm gây ra độ xoắn phổ biến. Hiệu ứng phụ thuộc vào trình tự: Công trình FRET cho thấy trình tự protein bài tiết ít xoắn hơn trình tự protein màng bên trong đường hầm của sinh vật nhân chuẩn, và các chuỗi protein hòa tan có độ tự động không đáng kể bên trong hoặc bên ngoài nó, trong khi cryo-EM chỉ phát hiện cấu trúc xoắn ốc đối với các chuỗi có xu hướng xoắn ốc cao (Protein Folding at the Exit Tunnel). Liệu các chuỗi xoắn ốc có thể hình thành trên các peptide ngắn mới sinh trong Giai đoạn I hay không, trước khi đầu N rời khỏi đường hầm, rõ ràng là không rõ ràng trong nguồn.
Lỗi thứ ba là đọc số dư 30 đến 40 dưới dạng một hằng số đo duy nhất. Nó là một phạm vi từ bảo vệ phân giải protein, và nó đo lường điều gì đó khác với con số chỗ ở còn lại lên tới 50 (Ba giai đoạn chuyển vị protein mới sinh qua đường hầm thoát ribosome, bản in trước arXiv). Kết hợp cả hai tạo ra ước tính công suất sai theo cả hai hướng.
Lỗi thứ tư là coi dạng yếu tố phát hành nhỏ gọn là không hoạt động. Việc đóng khung trước đó gọi nó là không có hoạt tính xúc tác và dạng mở có khả năng xúc tác. (Các khía cạnh cấu trúc của sự kết thúc dịch mã trên ribosome), trong khi nghiên cứu được giải quyết theo thời gian gọi đó là tiền điều chỉnh và lưu ý rằng các yếu tố phát hành nhỏ gọn liên kết trang A bất kể cấu hình trung tâm giải mã, với ưu điểm chọn lọc là liên kết và phân ly nhanh ở trạng thái tối đa hóa độ chính xác (Cơ sở cấu trúc để kích hoạt yếu tố giải phóng trong quá trình chấm dứt dịch thuật được tiết lộ bởi cryo-EM được giải quyết theo thời gian). Được cung cấp trước là thuật ngữ gần đây hơn và có cơ sở cấu trúc hơn. peptit 2 Nhà cung cấp
Lỗi thứ năm là mong EF-P giải quyết mọi vấn đề về proline. EF-P loại bỏ tình trạng trì trệ ở các đoạn polyproline nhưng có ít hoặc không ảnh hưởng đến RxPP, DTS-dừng, hoặc Glu-Pro-stop bị đình trệ (Các peptide mới sinh ngăn chặn sự tổng hợp protein ở vi khuẩn).
Các bước tiếp theo cho trình tự mà bạn nghi ngờ
Bắt đầu với tệp trình tự, không phải là biểu thức chạy. Đánh dấu mọi C-terminal Pro trong phạm vi hai phần dư của codon dừng, mỗi lần chạy ba hoặc nhiều prolines liên tiếp, và danh tính của các vị trí 3 bởi vì 5 và vị trí 7. Đó là những đặc điểm mà bằng chứng trên có liên quan đến sự trì trệ, và chúng có thể nhìn thấy được trước khi bất kỳ thuốc thử nào được thực hiện.
Sau đó quyết định lộ trình. Nếu có các đặc điểm được gắn cờ và số lượng từ nhỏ đến trung bình, tổng hợp hóa học loại bỏ sự hạn chế của ribosome, phù hợp với mô hình đó 31 của 38 thuốc peptide nhỏ được phê duyệt gần đây được tổng hợp hóa học (Hóa chất vs. tái tổ hợp: Các quyết định sản xuất đằng sau thuốc peptide bom tấn, Decibio, 2026). Nếu trình tự sạch và số lượng lớn, đòn bẩy xây dựng, lựa chọn chủ nhà, và gói phân tích ở trên là những gói để xác định.
Viết thông số kỹ thuật trước khi sản xuất. Nêu rõ độ tinh khiết mục tiêu, phương pháp phân tích, tài liệu được yêu cầu, và bất kỳ kỳ vọng dự án đặc biệt nào, và yêu cầu dữ liệu HPLC và MS dành riêng cho từng lô để phân giải các loài bị cắt bớt khỏi mục tiêu theo phương pháp đã nêu. ICH Q6B yêu cầu các xét nghiệm nhận dạng phải có tính đặc hiệu cao đối với phân tử, với nhiều hơn một bài kiểm tra khi cần thiết, là sàn chứ không phải trần (Tôi Q6B, TÔI, 1999).
Một giới hạn nên đi du lịch với kế hoạch. Không có nguồn nào được đọc ở đây báo cáo thời gian lưu trú ở thang đo giây cho một peptide mới sinh trong đường hầm, và thời gian thoát khỏi mô phỏng, micro giây đến mili giây, chưa được xác nhận bằng thực nghiệm (Ba giai đoạn chuyển vị protein mới sinh qua đường hầm thoát ribosome, bản in trước arXiv). Thời gian cư trú là một đại lượng dẫn xuất, và bất kỳ cuộc trò chuyện nào của nhà cung cấp coi nó như một hằng số đo lường đều đi trước bằng chứng.
Câu hỏi thường gặp
Chiều rộng của đường hầm thoát có giới hạn peptide nào có thể được biểu thị không?
KHÔNG. Đường hầm đủ rộng cho một chuỗi được mở rộng hoàn toàn và thậm chí cả một chuỗi xoắn ốc, vì vậy chỉ riêng kích thước hiếm khi chặn biểu thức. Giới hạn là động học: trình tự giữ chuỗi mới hình thành trong đường hầm quá lâu, hoặc đăng ký sai, có thể cản trở sự kéo dài hoặc cản trở việc giải phóng. Chiều rộng đặt hình học; thời gian quyết định kết quả.
Are stalling and truncation the same failure?
KHÔNG, và coi chúng như gửi sự cố sai hướng. Đình trệ là sự tạm dừng trong quá trình kéo dài, và ribosome thường có thể hoạt động trở lại sau khi chướng ngại vật được giải quyết. Cắt ngắn là kết quả vĩnh viễn: ribosome kết thúc sớm, hoặc sản phẩm có chiều dài đầy đủ bị xuống cấp, và chuỗi ngắn hơn là thứ bạn phục hồi. Một gian hàng giải quyết không có loài nào bị cắt cụt; một sự đình trệ không giải quyết được thường là như vậy.
How do I tell a translation-side problem from a solubility problem?
Nhìn vào nơi sản phẩm đi, không chỉ là bạn nhận được bao nhiêu. Bài toán phía dịch đưa ra một thang gồm các dải ngắn hơn trên gel, chỉ ra sự kết thúc sớm bên trong đường hầm. Bài toán về độ hòa tan cho khối lượng phân tử phù hợp của phần không hòa tan, có rất ít hoặc không có trong bể hòa tan. Chạy cả hai phân số trước khi thay đổi cấu trúc, bởi vì cách khắc phục ở mỗi nơi là khác nhau.
Can codon optimization rescue a stalling motif?
Những thay đổi codon đồng nghĩa bảo tồn mô-đun peptide được mã hóa nhưng có thể thay đổi động học dịch mã và hành vi của mRNA. Chúng có thể ảnh hưởng đến việc biểu đạt hoặc tạm dừng trong một số bối cảnh mà không nhất thiết phải loại bỏ cơ chế bắt giữ qua trung gian peptide. Kiểm tra sự thay đổi được đề xuất bằng thực nghiệm.
What purity specification suits a difficult sequence?
Đặt mục tiêu trước khi sản xuất, không sau. MỘT 95% đặc điểm kỹ thuật có thể phù hợp với nhiều quy trình nghiên cứu và sàng lọc, trong khi 98% có thể được chọn để yêu cầu phân tích, sinh học, hoặc công việc nhạy cảm với công thức; độ tinh khiết cao hơn có thể cải thiện khả năng diễn giải nhưng có thể làm tăng chi phí và năng suất thấp hơn đối với một chuỗi khó. Danh tính phải được xác nhận bằng các xét nghiệm có tính đặc hiệu cao đối với phân tử, với nhiều hơn một bài kiểm tra khi cần thiết (Tôi Q6B, TÔI, 1999).
Can the residence-time estimate be used predictively today?
Không phải là một công cụ dự đoán định lượng. Các số liệu về thời gian cư trú đến từ hoạt động cấu trúc và phân tử đơn trên các trình tự và điều kiện cụ thể, and they are not a general model that takes an arbitrary sequence and returns a stall probability. Use them to reason about which constructs carry higher risk and to decide what to measure, then confirm with your own expression and characterization data.
Phần kết luận
The design response follows from those anchors. Flag C-terminal Pro adjacent to a stop codon, flag runs of three or more prolines, check positions 3 bởi vì 5 và vị trí 7, and choose the host with the elongation rate in mind. Where the flagged features are present and the quantity is small to medium, tổng hợp hóa học loại bỏ sự hạn chế của ribosome; where the sequence is clean and the quantity is large, the construct levers and the analytical package carry the risk.
Two limits should travel with any decision. Residence time in the tunnel is a derived quantity, không phải là hằng số đo được, và thời gian thoát dựa trên mô phỏng chưa được xác thực bằng thực nghiệm. Khoảng cách từ PTC đến điểm thắt không được xác nhận trong các nguồn đọc ở đây. Cuộc trò chuyện với nhà cung cấp chính xác về những giới hạn đó, và về dữ liệu HPLC và MS cấp lô sẽ giải quyết các loài bị cắt bớt khỏi mục tiêu, là cái sẽ giữ vững khi lần chạy tiếp theo được so sánh với lần chạy trước.
Về nhà xuất bản. MOL Changes là một tổ chức nghiên cứu và phát triển peptide cung cấp thiết kế trình tự tùy chỉnh, tổng hợp và sản xuất, bao gồm cả quá trình lên men pha rắn và vi sinh vật. Do đó, nó có lợi ích thương mại trong việc tạo ra các trình tự khó như thế nào, và độc giả nên cân nhắc quan điểm của nó với suy nghĩ đó. Hướng dẫn trên là độc lập và không phụ thuộc vào dịch vụ của nó.