Cos'è il tunnel di uscita ribosomiale, e perché le sue dimensioni stabiliscono un limite rigido all'allungamento?
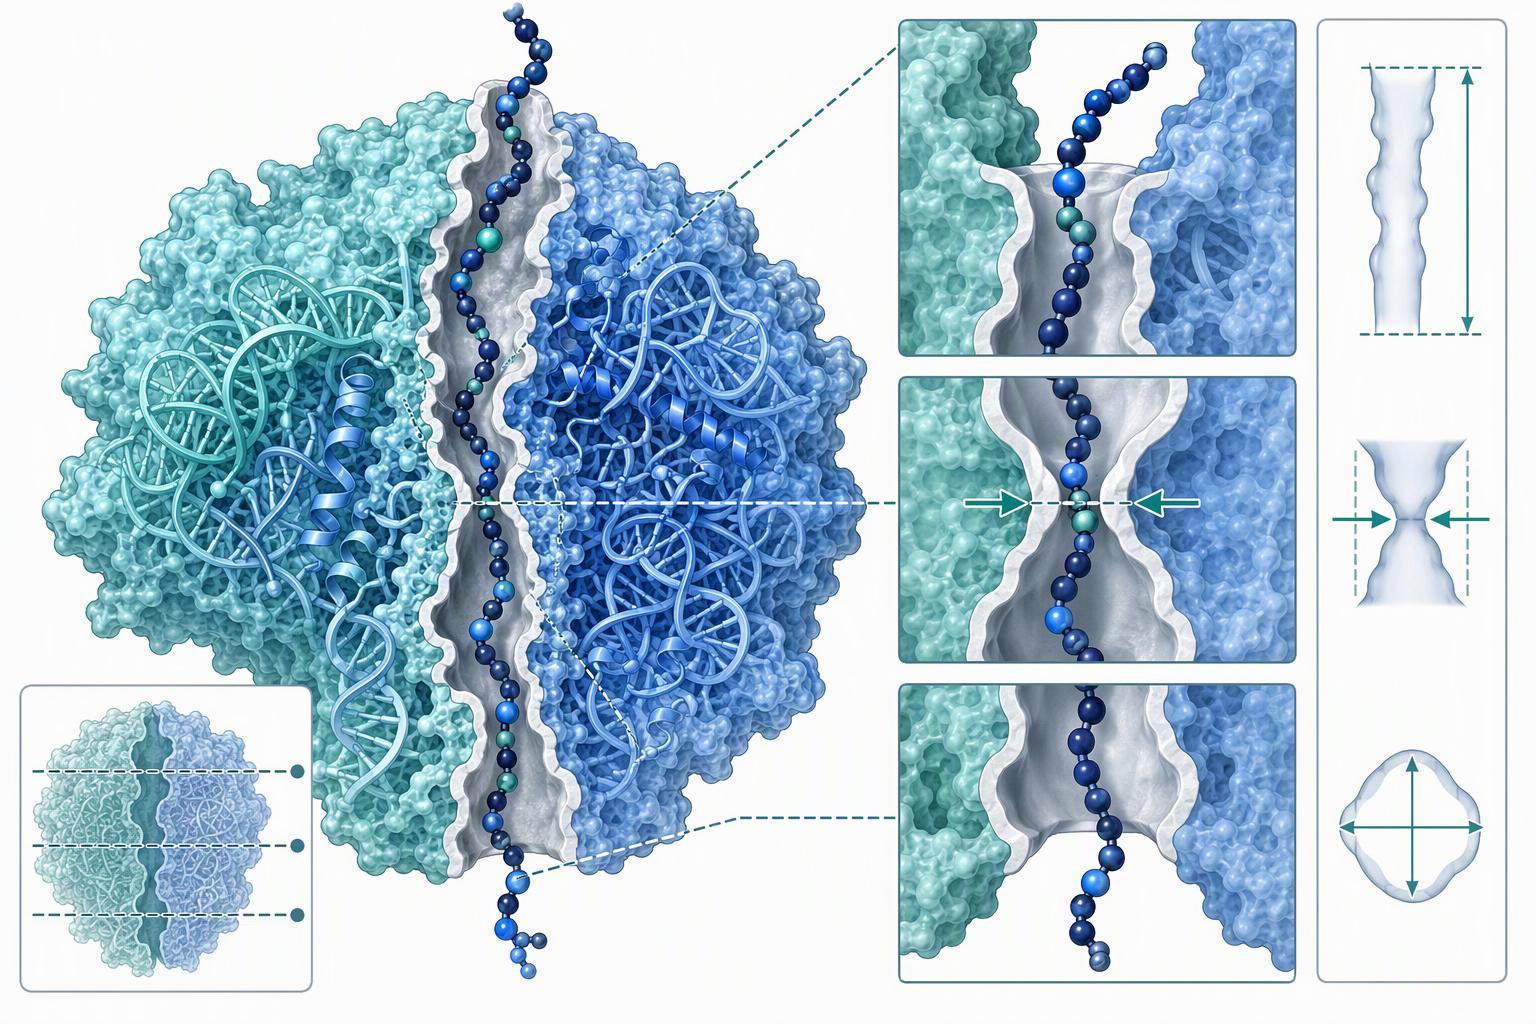
Quella geometria si converte in un budget residuo. Un polipeptide completamente ad α-elica verrebbe sepolto approssimativamente 23 residui se completamente estesi e circa 53 se completamente α-elicoidale, A 1.5 Oh anatra 3.5 Å per residuo rispettivamente (Ripiegamento delle proteine nel tunnel di uscita). La protezione misurata si colloca tra queste stime: 30–40 residui protetti dalla proteolisi, seguendo Malkin & Quello di Rich 1967 lavoro di inseguimento degli impulsi sulla globina nascente nei polisomi eucariotici.
Le due figure rispondono a domande diverse. La protezione della proteolisi misura ciò che il tunnel protegge dagli enzimi; L'accomodamento misura ciò che si inserisce all'interno del ribosoma. UN 2024 sintesi prestampa di strutturale, pinzette ottiche e dati di simulazione riportano fino a 50 i residui possono essere sistemati, con circa 30 Residui C-terminali espulsi nella fase finale (Tre epoche di traslocazione delle proteine nascenti attraverso il tunnel di uscita dei ribosomi, arXiv prestampa). Il collo di bottiglia fisico è la costrizione uL4/uL22, formato da anelli estesi di quelle proteine a subunità grandi (Ripiegamento delle proteine nel tunnel di uscita). La revisione indica l’identità della restrizione ma non la sua distanza dal PTC, in modo che la distanza rimanga qui qualitativa piuttosto che stimata.
Quanto tempo rimane un peptide nascente nel tunnel prima che un fattore di rilascio possa interrompere la traduzione?
Non esiste un valore misurato su scala di secondi per il tempo di residenza del tunnel di uscita del peptide nascente. Ciò che misura la crio-EM risolta nel tempo è la fase di accomodamento che precede il rilascio: A 24 tempo di reazione ms, 25% di RF1 legato al ribosoma è nella forma compatta di pre-accomodamento, e dentro 60 ms praticamente tutti i fattori di rilascio legati ai ribosomi si sono trasformati nelle loro forme estese (La base strutturale per l'attivazione del fattore di rilascio durante la terminazione della traduzione rivelata dal crio-EM risolta nel tempo, Comunicazioni sulla natura, 2019).
Lo stesso studio fissa la posizione del peptide in ogni punto. A 60 ms l'insieme ribosomiale legato a RF1 è dominato dalla forma estesa, con il complesso ospitato e il tripeptide ancora nel tunnel di uscita; di 45 s la densità del tripeptide non è più presente nel tunnel. Il sequestro del fattore di rilascio durante la terminazione della traduzione non è quindi istantaneo, e la finestra tra l'ingresso del codone di stop e l'idrolisi è dove agisce l'interferenza dipendente dalla sequenza.
La terminazione stessa è una sequenza di passaggi definiti. Il fattore di rilascio lega il sito A in una conformazione cataliticamente inattiva; sul riconoscimento del codone di stop, il loop e il dominio dell'interruttore 3 riorganizzare, il motivo GGQ viene inserito nel PTC, e segue l'idrolisi del legame estere peptidil-tRNA (Aspetti strutturali della terminazione della traduzione sul ribosoma, PMC). La velocità di rilascio misurata combina tre passaggi elementari: cambiamento conformazionale del fattore di rilascio, idrolisi del peptide, e dissociazione del peptide dal ribosoma (Base dinamica della fedeltà e velocità nella traduzione, PMC, 2017).
Questa scomposizione spiega perché l’identità del codone è così importante. La modifica del codone ha modificato sia il tasso di dissociazione del fattore di rilascio che il tasso di rilascio misurato fino a tre ordini di grandezza, senza alcun cambiamento significativo nel tasso di associazione iniziale. La traduzione complessiva viene eseguita a circa 20 aminoacidi al secondo in vivo, equivalente a 50 ms per codone, quindi un'occupazione del tunnel di 30 A 40 i residui corrispondono approssimativamente a 1.5 A 2 secondi di transito a quella velocità. Consideralo come una stima derivata, non una costante misurata.
Quali sequenze cambiano quel tempismo, e cosa mostrano le prove misurate?
Contro quella breve finestra, una manciata di motivi di sequenza inclinano in modo affidabile l'ago della bilancia, e la maggior parte di essi funziona interferendo con il sequestro dei fattori di rilascio durante la terminazione della traduzione. La prolina all'estremità C accanto al codone di stop è il segnale di arresto dominante. Uno schermo genetico di librerie di peptidi casuali in E. coli ha scoperto che la causa più comune di stallo, oltre 90% di cloni, è una terminazione inefficiente nella sequenza Pro-Stop, con il codone di stop opale UGA sovrarappresentato 23 Di 29 cloni e Glu sovrarappresentati 16 Di 29 nella posizione −2 (Identificazione genetica dei peptidi nascenti che inducono lo stallo dei ribosomi, PMC, 2009). Il rilascio è particolarmente inefficiente quando Pro-Stop è preceduto da Asp, Glu, o professionista. Questa è una schermata singola, e le frequenze sono conteggi di cloni da un sistema di selezione, non i tassi di popolazione.
I motivi della fase di allungamento sono ugualmente specifici. Tre proline consecutive sono necessarie e sufficienti per uno stallo robusto, e stallo robusto da parte di PP(X) si verifica quando X è Asn, Asp, Glu, Gly, Pro, o Trp (Peptidi nascenti che bloccano la sintesi proteica nei batteri, PMC). Lo stesso lavoro definisce il consenso sull'allungamento come RxPP e HGPP, e un motivo di terminazione come DTS-stop.
Il motivo di arresto SecM FxxxxWIxxxxGIRAGP mostra quanto a monte può arrivare un motivo. Una catena laterale Trp 11 i residui a monte del sito della stalla si legano vicino alla strozzatura, i tre residui Arg a monte si trovano vicino al PTC, e il Pro-tRNA non reagito si lega al sito A (Peptidi nascenti che bloccano la sintesi proteica nei batteri, PMC). Il Pro166 critico non è incorporato nella catena in stallo, e il Pro-tRNA non reagito rimane nel sito A (Modulando l'attività del centro peptidiltransferasi del ribosoma, PMC, 2008).
UN 2025 La struttura cryo-EM aggiunge un secondo meccanismo nello stesso passaggio. Il mini-tornante PepNL blocca RF2 al codone di stop: PepNL è un ORF di 14 aminoacidi che arresta la traduzione in UGA15 inibendo RF2, e la sua penultima Ile13 occupa la sacca formata da A2451, C2452, e U2506 dell'rRNA 23S, scontrandosi stericamente con il motivo GGQ di RF2 (Un peptide nascente a forma di mini-forcina blocca la terminazione della traduzione, Comunicazioni sulla natura, 2025). Dopo la lettura del codone di stop, il ribosoma è migrato a una velocità di circa un amminoacido al minuto rispetto a 4.8 A 26.4 al minuto nel sistema PURE.
Chiave da asporto: I residui che contano sono posizionali, non compositivo. Spostare un motivo di alcuni residui cambia il risultato, e questo è il rischio di troncamento dell'espressione peptidica che un file di sequenza può segnalare prima che inizi qualsiasi lavoro al banco.
La conseguenza pratica è che i meccanismi ricchi di prolina e di penultimo residuo ricorrono attraverso sistemi di selezione indipendenti, quindi un terminale C Pro seguito da un codone di stop, o una sequenza di proline a metà sequenza, è una segnalazione sul file di sequenza anziché una sorpresa nel gel.
Perché le sequenze difficili o non convenzionali vengono troncate, Stallo, o esprimersi male?
Sintesi di peptidi commerciali La bassa resa in una sequenza difficile viene solitamente letta come un problema. Sono almeno le tre, e hanno bisogno di soluzioni diverse. Stallo dal lato della traduzione, drop-off indipendente dal codone di stop, e l'instabilità post-traduzionale riducono la quantità finale del prodotto integrale, ecco perché il rischio di troncamento dell’espressione peptidica viene così spesso attribuito al passaggio sbagliato.
Il meccanismo lato traslazione inizia all'interno del tunnel. Il PTC catalizza la formazione del legame peptidico e, insieme al fattore di rilascio, rilascio del peptide, e la sua attività è modulata dalla segnalazione dal tunnel di uscita del peptide (Modulando l'attività del centro peptidiltransferasi del ribosoma, Società dell'RNA, 2008). Due peptidi con nome mostrano la direzione di quella segnalazione: SecM si blocca inibendo la formazione del legame peptidico, e il TnaC sopprime l'attività idrolitica del PTC indotta dal fattore di rilascio dall'interno del tunnel. L’allungamento precoce è dove questo è più fragile. La maggior parte dei peptidi di cinque residui raggiungerebbe una regione critica della cavità PTC, e piccoli residui nelle posizioni 3 A 5 impedire l'incanalamento verso il tunnel, perché la libertà conformazionale che conferiscono impedisce alla catena di orientarsi verso l'ingresso (Jia, Wang & Lehmann, Rapporti scientifici 11:24061, 2021). Il settimo residuo si trova al livello di U2609.
Quando lo stallo non viene risolto, subentra il controllo qualità. I ribosomi in collisione sono la firma universale dello stallo, e i ribosomi bloccati sono definiti da un canale mRNA vuoto nel sito A (Rilevamento e salvataggio dei ribosomi bloccati, PMC, 2021). A quei ribosomi, Pelota/Dom34 trasportato da Hbs1 è privo del motivo GGQ e lascia peptidil-tRNA sulla subunità grande, mentre ZNF598/Hel2 ubiquitila le proteine 40S e recluta ASC-1/RQT; la divisione 60S trattiene il peptidil-tRNA, che il percorso di controllo della qualità dei ribosomi degrada (Controllo di qualità e vie di segnalazione nei ribosomi in stallo, Sperimentale & Medicina Molecolare, 2026).
Nessuna fonte letta qui fornisce una frequenza di troncamento di per sé, quindi tratta qualsiasi percentuale che vedi citata per una sequenza specifica come non verificata. Ciò che viene misurato è la frequenza dell'evento di drop-off indipendente dal codone di stop stesso, e questo è il numero su cui ragionare.
⚠️ Attenzione: Tre modalità di fallimento, tre osservabili distintivi. Lo stallo sul lato della traduzione mostra ribosomi in collisione e un pool di peptidil-tRNA che il controllo di qualità sta attivamente eliminando. Il drop-off indipendente dal codone di stop rilascia un prodotto troncato mentre il ribosoma continua a tradurre, quindi la specie troncata appare senza una firma ribosomiale bloccata. L'instabilità post-traduzionale fornisce un prodotto completo al momento del rilascio che successivamente si degrada, quindi la perdita aumenta con il tempo e la gestione piuttosto che con l'espressione. Assegna il tuo rendimento basso a quello sbagliato e la modifica del costrutto che apporti non lo sposterà.
Cosa può essere modificato in un costrutto per ridurre tale rischio?
Peptide 1 Fabbrica Se il meccanismo è a livello di sequenza, così è la mitigazione. La prima leva è il terminale C. Perché Pro-Stop è la classe di arresto dominante e il rilascio è particolarmente inefficace quando Pro-Stop è preceduto da Asp, Glu, o professionista (Genetico Sintesi di peptidi lunghi Identificazione di peptidi nascenti che inducono lo stallo dei ribosomi), un terminale Pro adiacente al codone di stop è un difetto a livello di sequenza che può essere rimosso prima dell'esecuzione di qualsiasi espressione.
La seconda leva è la corsa in prolina. Tre codoni Pro consecutivi sono necessari e sufficienti per uno stallo robusto, e PP(X) si ferma quando X è Asn, Asp, Glu, Gly, Pro, o Trp (Peptidi nascenti che bloccano la sintesi proteica nei batteri). La stessa fonte riporta che EF-P abolisce lo stallo negli allungamenti della poliprolina ma ha poco o nessun effetto su altri peptidi di stallo, incluso RxPP, Arresto DTS, e Glu-Pro-stop. Questa distinzione è attuabile: lo stallo della poliprolina è una questione del fattore ospite, mentre gli altri motivi non vengono affatto salvati da EF-P.
La terza leva è la catena anticipata. La maggior parte dei peptidi di cinque residui raggiungerebbe una regione critica della cavità PTC, ciò può provocare un intasamento del peptide se il residuo N-terminale non è orientato verso l'ingresso del tunnel, e piccoli amminoacidi in posizioni 3 A 5 conferiscono un'elevata libertà conformazionale che può impedire al peptide di essere incanalato verso il tunnel. Il 7° amminoacido si trova al livello di U2609, che può essere un residuo chiave che garantisce l'integrazione del peptide nascente all'interno del tunnel di uscita. L'ancoraggio dell'iniziatore metionina nel tunnel consentirebbe al peptide di essere raddrizzato fin dall'inizio.
La quarta leva è l'host. Tasso di allungamento nelle medie dei batteri 10 A 20 residui al secondo e 4 A 5 negli eucarioti, e Fase I, il terminale N che attraversa il tunnel, è stimato a 2 A 12 secondi (Tre epoche di traslocazione delle proteine nascenti attraverso il tunnel di uscita dei ribosomi, arXiv prestampa). Un ribosoma più lento modifica il tempo in cui un motivo marginale rimane nella posizione di interferire, che è uno dei motivi per cui lo stesso costrutto può comportarsi diversamente tra gli host.
Quali prove analitiche sono necessarie prima che un risultato di una sequenza difficile venga considerato riproducibile?
Una volta corretto il costrutto, la domanda rimanente è quali prove rendano affidabile il risultato. Identità e purezza sono affermazioni separate e necessitano di prove separate. ICH Q6B richiede test di identità altamente specifici per la molecola e afferma che potrebbero essere necessari più di un test (Io Q6B: Specifiche: Procedure di prova e criteri di accettazione per prodotti biotecnologici/biologici, IO, 1999). Una singola banda su un gel non è un test di identità.
La purezza deve essere definita rispetto a un metodo. La purezza del peptide descrive la proporzione del peptide bersaglio rispetto ai relativi sottoprodotti di sintesi, sequenze troncate, prodotti di cancellazione, o altre impurità visibili con il metodo analitico selezionato, e una specifica utile indica l'obiettivo Peptide 1 Commercio all'ingrosso purezza, l'approccio analitico, documentazione richiesta, e qualsiasi aspettativa di progetto speciale prima dell'inizio della produzione. UN 95% le specifiche possono adattarsi a molti flussi di lavoro di ricerca e screening, Mentre 98% può essere selezionato per analisi più impegnative, biologico, o applicazioni sensibili alla formulazione.
Per una sequenza difficile, le modalità di guasto sono note e dovrebbero essere indicate nelle specifiche. Alcune sequenze sono intrinsecamente difficili a causa dell'idrofobicità, lunghezza, carica, o propensione all'aggregazione, e la difficoltà è determinata dal comportamento in sequenza, compresa l'aggregazione, struttura secondaria, effetti sterici, o motivi labili, piuttosto che solo la lunghezza. Una maggiore purezza può migliorare l'interpretabilità, ma potrebbe aumentare i costi e ridurre la resa, soprattutto per le sequenze difficili.
Alla domanda sulla riproducibilità viene data risposta dai dati a livello di lotto, non solo da un certificato di analisi. Poiché il troncamento ha origine da un ribosoma in stallo il cui peptidil-tRNA viene degradato dalla via RQC (Controllo di qualità e vie di segnalazione nei ribosomi in stallo), una specie troncata è un prodotto distinto con una propria massa, e apparirà nella stessa finestra cromatografica durante le analisi se il costrutto rimane invariato. Dati HPLC e MS specifici del lotto che separano le specie troncate dal bersaglio, dichiarato rispetto al metodo utilizzato per definire la purezza, sono ciò che rende difendibile il risultato di una sequenza difficile.
Quando una sequenza difficile dovrebbe essere realizzata mediante sintesi chimica invece che mediante espressione ribosomiale?
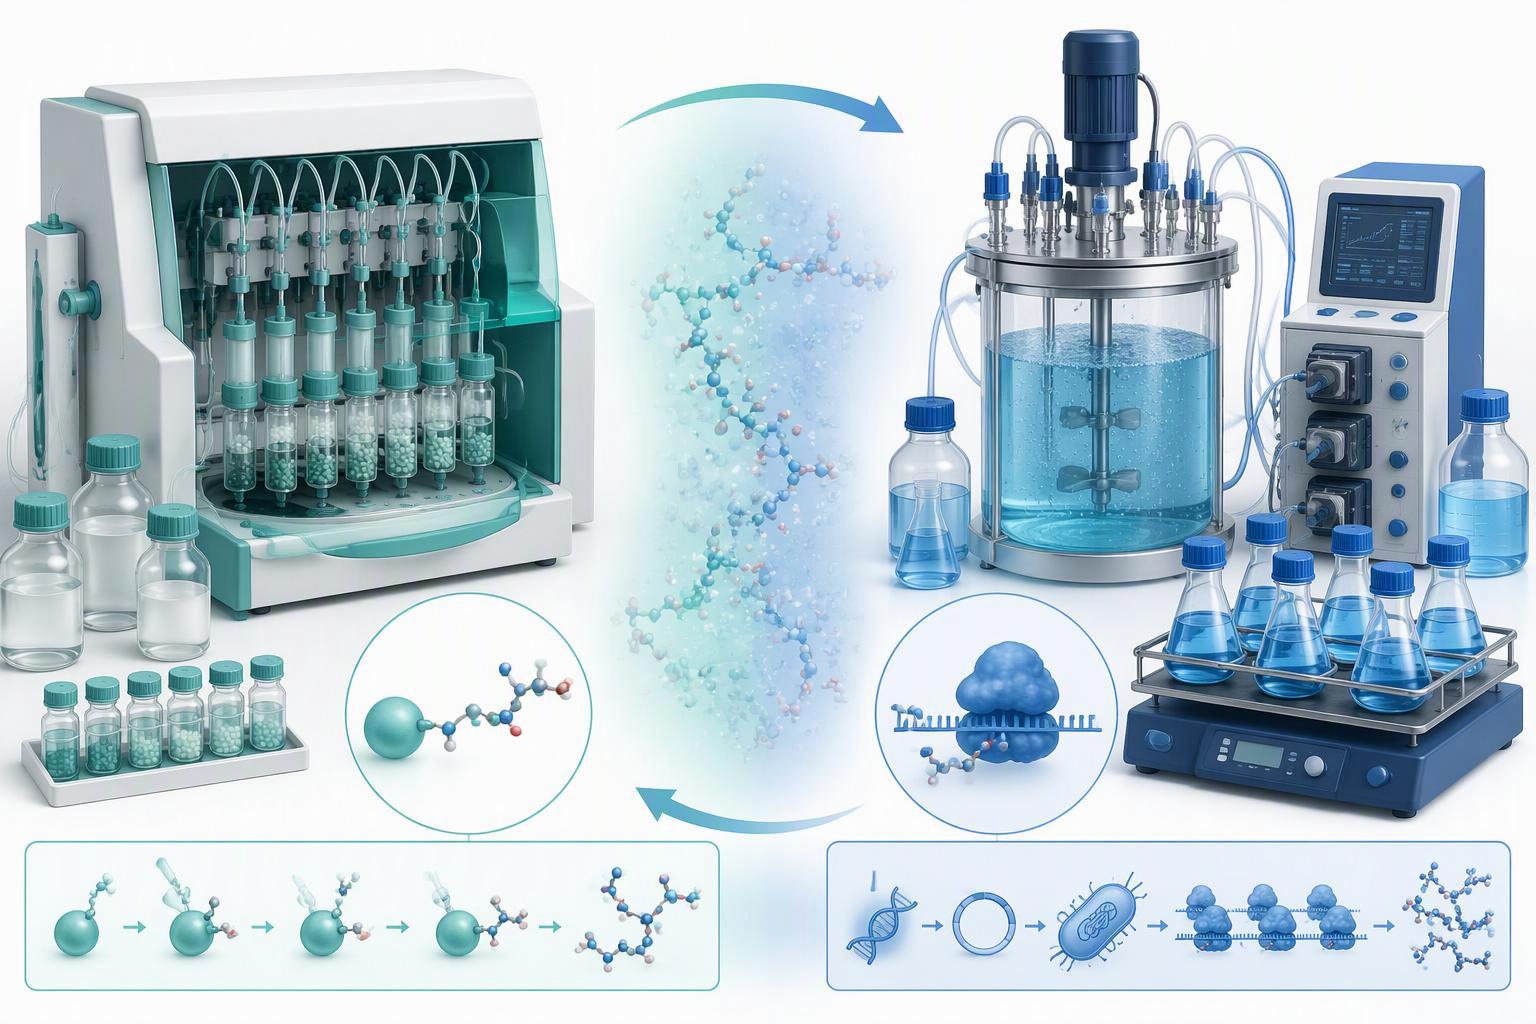
Per alcune sequenze, nessuna quantità di rigore analitico fissa un percorso che il ribosoma non completerà. Il modello di mercato è chiaro anche laddove i dati comparativi non lo sono: 31 Di 38 i farmaci peptidici di recente approvazione sono sintetizzati chimicamente, e la lunghezza degli aminoacidi, peso molecolare, e la complessità strutturale determina se un farmaco è prodotto in modo ricombinante o chimico (Chimico vs. Ricombinante: Le decisioni di produzione dietro i farmaci peptidici di successo, Decibio, 2026). La sintesi chimica è adatta a quantità medio-piccole con un rigoroso controllo della purezza; ricombinante diventa più conveniente e scalabile in quantità maggiori e sequenze più lunghe. In 2021 la FDA ha pubblicato linee guida che prevedono che i farmaci peptidici generici vengano prodotti chimicamente.
La soglia di lunghezza è direzionale, non misurato. Sequenze finite 30 A 50 i residui sono spesso contrassegnati come difficili, e la difficoltà è determinata dal comportamento della sequenza piuttosto che dalla sola lunghezza (Difficile & Peptidi stimolanti, Biosintesi). Quello 30 A 50 la soglia dei residui è l'inquadramento del fornitore piuttosto che un risultato misurato. Nella letteratura pubblicata non esiste alcun confronto testa a testa controllato sulla resa o sulla purezza tra i due percorsi, quindi il confine è una fascia di compromesso, non un taglio.
Il meccanismo sostiene la stessa conclusione dall'altra parte. Una sequenza che blocca il ribosoma verrà gestita in modo inadeguato dal percorso ribosomiale, indipendentemente dalla scala, e i motivi dell'arresto sono sufficientemente specifici da poter essere controllati prima di impegnarsi: una prolina C-terminale accanto a un codone di stop, una corsa di tre o più proline, oppure un penultimo residuo che può distorcersi nella tasca GGQ. Dove queste caratteristiche sono presenti e la quantità richiesta è da piccola a media, la sintesi chimica rimuove completamente il vincolo ribosomiale.
Dove la sequenza è pulita e la quantità è grande, si applicano i vantaggi di costo e di scala della via ricombinante. La difficile caratterizzazione della sequenza peptidica inizia quindi con una decisione sul percorso presa prima della prima esecuzione dell'espressione, nessun tentativo di salvataggio dopo la comparsa di una scala di troncamento. Sintesi di peptidi biotinilati
Cosa sbagliano le persone riguardo al tunnel di uscita?
Il secondo errore è presupporre che il tunnel induca elicità universalmente. L'effetto dipende dalla sequenza: Il lavoro FRET ha mostrato che una sequenza proteica secretoria è meno elicoidale di una sequenza proteica di membrana all'interno del tunnel eucariotico, e le sequenze di proteine solubili hanno un'elicità trascurabile all'interno o all'esterno di esso, mentre la crio-EM ha rilevato la struttura elicoidale solo per sequenze con elevata propensione elicoidale (Ripiegamento delle proteine nel tunnel di uscita). Se le α-eliche possono formarsi su peptidi nascenti corti durante la Fase I, prima che il terminale N lasci il tunnel, non è esplicitamente chiaro nella fonte.
Il terzo errore consiste nel leggere la cifra da 30 a 40 residui come un'unica costante misurata. Si tratta di una gamma di protezione dalla proteolisi, e misura qualcosa di diverso dalla cifra di alloggio fino a 50 residui (Tre epoche di traslocazione delle proteine nascenti attraverso il tunnel di uscita dei ribosomi, arXiv prestampa). La combinazione dei due produce una stima della capacità errata in entrambe le direzioni.
Il quarto errore è considerare la forma compatta con fattore di rilascio semplicemente come inattiva. La definizione precedente la definisce cataliticamente inattiva e la forma aperta cataliticamente competente (Aspetti strutturali della terminazione della traduzione sul ribosoma), mentre lo studio risolto nel tempo lo chiama pre-accomodamento e rileva che i fattori di rilascio compatti legano il sito A indipendentemente dalla conformazione del centro di decodifica, con il vantaggio selettivo di un rapido legame e dissociazione in uno stato di massimizzazione della precisione (La base strutturale per l'attivazione del fattore di rilascio durante la terminazione della traduzione rivelata dal crio-EM risolta nel tempo). Preaccomodato è il termine più recente e strutturalmente radicato. Peptide 2 Fornitore
Il quinto errore è aspettarsi che EF-P risolva ogni problema relativo alla prolina. EF-P abolisce lo stallo nei tratti in poliprolina ma ha poco o nessun effetto su RxPP, Arresto DTS, o Glu-Pro-stop allo stallo (Peptidi nascenti che bloccano la sintesi proteica nei batteri).
Passaggi successivi per una sequenza che già sospetti
Inizia con il file di sequenza, non l'espressione correre. Contrassegnare ogni C-terminale Pro entro due residui di un codone di stop, ogni serie di tre o più proline consecutive, e l'identità delle posizioni 3 Attraverso 5 e posizione 7. Queste sono le caratteristiche che le prove sopra riportate collegano allo stallo, e sono visibili prima che venga impegnato qualsiasi reagente.
Poi decidi il percorso. Se le funzionalità contrassegnate sono presenti e la quantità è da piccola a media, la sintesi chimica rimuove il vincolo ribosomiale, coerente con il modello che 31 Di 38 i farmaci peptidici di recente approvazione sono sintetizzati chimicamente (Chimico vs. Ricombinante: Le decisioni di produzione dietro i farmaci peptidici di successo, Decibio, 2026). Se la sequenza è pulita e la quantità è grande, le leve costruttive, scelta dell'ospite, e il pacchetto analitico di cui sopra sono quelli da specificare.
Scrivere le specifiche prima della produzione. Dichiarare la purezza target, l'approccio analitico, la documentazione richiesta, e qualsiasi aspettativa di progetto speciale, e richiedono dati HPLC e MS lotto-specifici che risolvano le specie troncate dal bersaglio rispetto al metodo indicato. Il requisito dell’ICH Q6B secondo cui i test di identità devono essere altamente specifici per la molecola, con più di un test ove necessario, è il pavimento piuttosto che il soffitto (Io Q6B, IO, 1999).
Un limite dovrebbe viaggiare con il piano. Nessuna fonte letta qui riporta un tempo di residenza misurato su scala di secondi per un peptide nascente nel tunnel, e i tempi di fuga dalla simulazione, microsecondi in millisecondi, non sono stati validati sperimentalmente (Tre epoche di traslocazione delle proteine nascenti attraverso il tunnel di uscita dei ribosomi, arXiv prestampa). Il tempo di residenza è una quantità derivata, e qualsiasi conversazione con un fornitore che la consideri una costante misurata è in anticipo rispetto alle prove.
Domande frequenti
La larghezza del tunnel di uscita limita i peptidi che possono essere espressi?
NO. Il tunnel è sufficientemente largo per una catena completamente estesa e persino per un'α-elica, quindi la dimensione da sola raramente blocca l'espressione. Il limite è cinetico: una sequenza che tiene troppo a lungo la catena nascente nel tunnel, o nel registro sbagliato, possono bloccare l'allungamento o interferire con il rilascio. La larghezza imposta la geometria; il tempismo determina il risultato.
Lo stallo e il troncamento sono lo stesso fallimento?
NO, e trattarli come se mandassero la risoluzione dei problemi nella direzione sbagliata. Lo stallo è una pausa nell'allungamento, e il ribosoma può spesso riprendere una volta superato l'ostacolo. Il troncamento è il risultato permanente: il ribosoma termina presto, oppure il prodotto integrale è degradato, e la catena più corta è quella che recuperi. Uno stallo che si risolve non lascia specie troncate; uno stallo che non si risolve di solito lo fa.
Come faccio a distinguere un problema dal lato della traduzione da un problema di solubilità?
Guarda dove va il prodotto, non solo quanto ottieni. Un problema dal lato della traduzione fornisce una scala di bande più corte sul gel, che indica la conclusione anticipata all'interno del tunnel. Un problema di solubilità fornisce il giusto peso molecolare nella frazione insolubile, con poco o nessuno nel pool solubile. Esegui entrambe le frazioni prima di modificare il costrutto, perché la correzione è diversa per ciascuno.
L'ottimizzazione del codone può salvare un motivo di stallo??
I cambiamenti del codone sinonimo preservano il motivo peptidico codificato ma possono alterare la cinetica di traduzione e il comportamento dell'mRNA. Possono influenzare l'espressione o la pausa in alcuni contesti senza necessariamente rimuovere un meccanismo di arresto mediato dai peptidi. Testare sperimentalmente la modifica proposta.
Quale specifica di purezza si adatta a una sequenza difficile?
Stabilisci l'obiettivo prima della produzione, non dopo. UN 95% le specifiche possono adattarsi a molti flussi di lavoro di ricerca e screening, Mentre 98% può essere selezionato per esigenze analitiche impegnative, biologico, o lavoro sensibile alla formulazione; una maggiore purezza può migliorare l'interpretabilità ma può aumentare i costi e ridurre la resa per una sequenza difficile. L'identità dovrebbe essere confermata da test altamente specifici per la molecola, con più di un test ove necessario (Io Q6B, IO, 1999).
La stima del tempo di residenza può essere utilizzata in modo predittivo oggi?
Non come predittore quantitativo. Le cifre del tempo di residenza provengono dal lavoro strutturale e su singola molecola su sequenze e condizioni specifiche, e non sono un modello generale che prende una sequenza arbitraria e restituisce una probabilità di stallo. Usateli per ragionare su quali costrutti comportano un rischio maggiore e per decidere cosa misurare, quindi confermare con i propri dati di espressione e caratterizzazione.
Conclusione
La risposta progettuale deriva da questi ancoraggi. Contrassegna il terminale C Pro adiacente a un codone di stop, sequenze di bandiere di tre o più proline, controllare le posizioni 3 Attraverso 5 e posizione 7, e scegli l'host tenendo presente il tasso di allungamento. Dove sono presenti le funzionalità contrassegnate e la quantità è da piccola a media, la sintesi chimica rimuove il vincolo ribosomiale; dove la sequenza è pulita e la quantità è grande, le leve costruttive e il pacchetto analitico comportano il rischio.
Due limiti dovrebbero accompagnare qualsiasi decisione. Il tempo di permanenza nel tunnel è una grandezza derivata, non una costante misurata, e i tempi di fuga basati sulla simulazione non sono stati convalidati sperimentalmente. La distanza dal PTC alla costrizione non è stata confermata nelle fonti qui lette. Una conversazione con i fornitori precisa su tali limiti, e sui dati HPLC e MS a livello di lotto che risolveranno una specie troncata dal bersaglio, è quello che reggerà quando la corsa successiva verrà confrontata con l'ultima.
A proposito dell'editore. MOL Changes è un'organizzazione di ricerca e sviluppo di peptidi che offre progettazione di sequenze personalizzate, sintesi e produzione, comprese le vie di fermentazione in fase solida e microbica. Ha quindi un interesse commerciale nel modo in cui vengono realizzate le sequenze difficili, e i lettori dovrebbero valutare la sua prospettiva tenendo presente questo. La guida di cui sopra è autonoma e non dipende dai suoi servizi.