¿Qué es el túnel de salida ribosomal?, y ¿Por qué su tamaño establece un límite estricto de elongación??
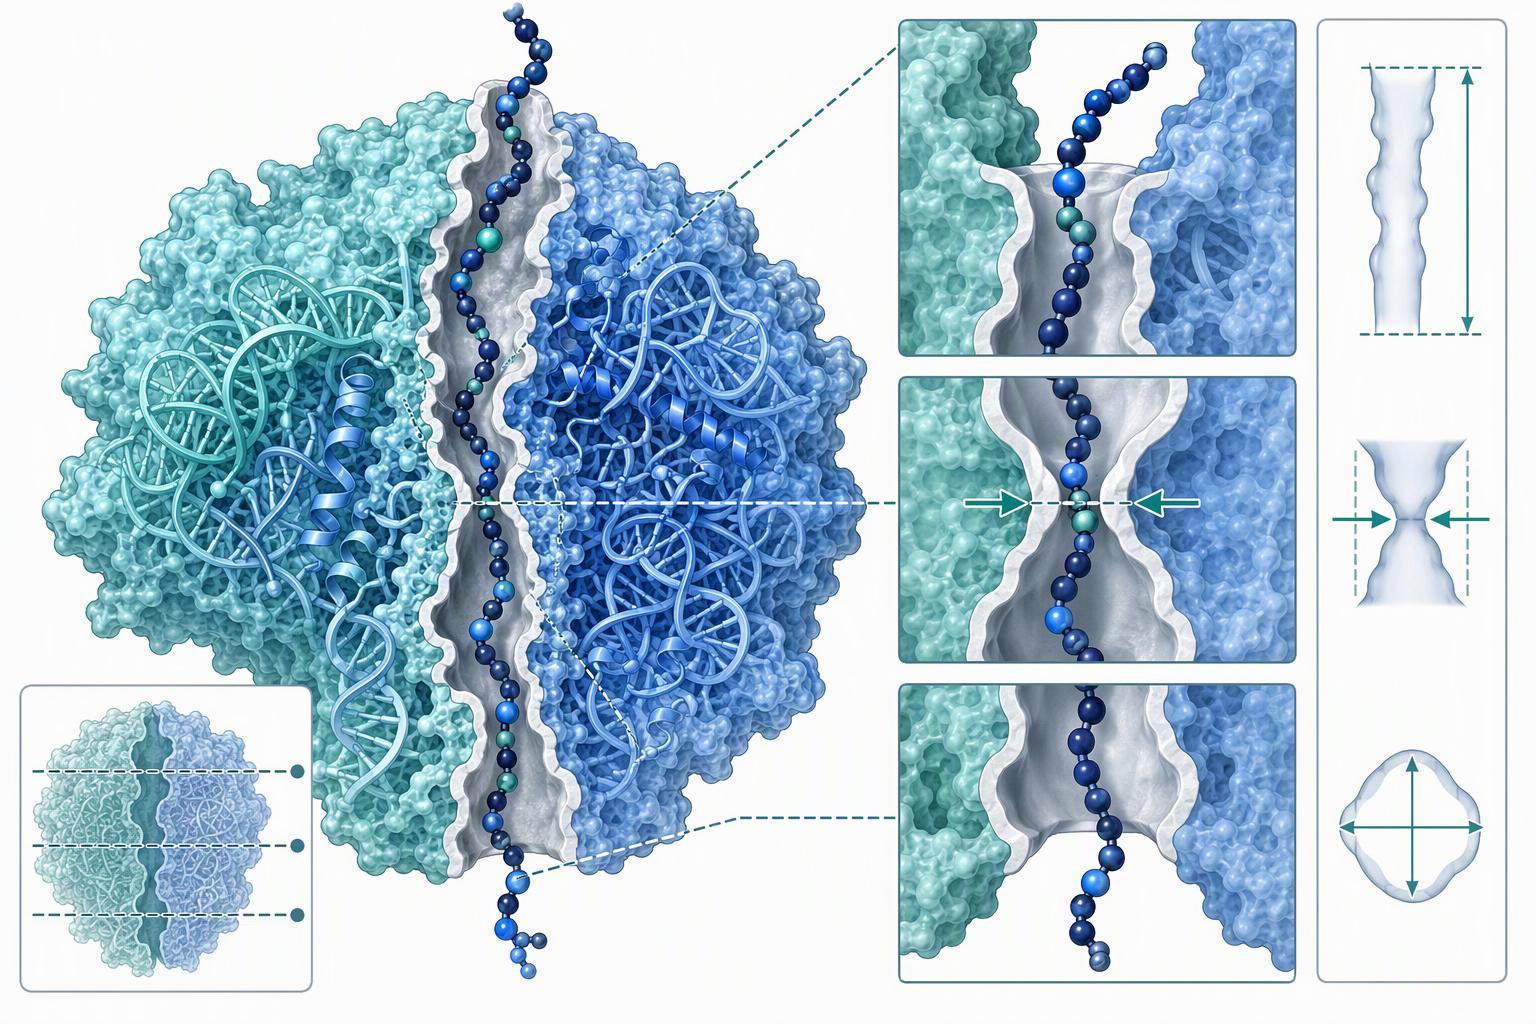
Esa geometría se convierte en un presupuesto residual.. Un polipéptido completamente α-helicoidal enterraría aproximadamente 23 residuos si están completamente extendidos y aproximadamente 53 si es completamente α-helicoidal, en 1.5 oh pato 3.5 Å por residuo respectivamente (Plegamiento de proteínas en el túnel de salida). La protección medida se sitúa entre esas estimaciones: 30–40 residuos protegidos de la proteólisis, siguiendo a malkin & ricos 1967 Trabajo de persecución de pulsos en globina naciente en polisomas eucariotas..
Las dos figuras responden a preguntas diferentes.. La protección de la proteólisis mide lo que el túnel protege de las enzimas.; La acomodación mide lo que cabe dentro del ribosoma.. A 2024 síntesis preimpresa de estructuras, pinzas ópticas y datos de simulación informan que hasta 50 se pueden acomodar los residuos, con aproximadamente 30 Residuos C-terminales expulsados en la etapa final (Tres épocas de translocación de proteínas nacientes a través del túnel de salida del ribosoma, preimpresión de arXiv). El cuello de botella físico es la constricción uL4/uL22., formado por bucles extendidos de esas proteínas de subunidades grandes (Plegamiento de proteínas en el túnel de salida). La revisión indica la identidad de la constricción pero no su distancia del PTC, para que la distancia siga siendo cualitativa aquí en lugar de estimada.
¿Cuánto tiempo permanece un péptido naciente en el túnel antes de que un factor de liberación pueda terminar la traducción??
No existe un valor medido en la escala de segundos para el tiempo de residencia del túnel de salida del péptido naciente. ¿Qué medidas crio-EM resueltas en el tiempo son el paso de acomodación que precede a la liberación?: en 24 ms tiempo de reacción, 25% de RF1 unido a ribosomas está en la forma compacta de preacomodación, y dentro 60 Prácticamente todos los factores de liberación unidos a ribosomas se han transformado a sus formas extendidas. (La base estructural para la activación del factor de liberación durante la terminación de la traducción revelada por crio-EM resuelta en el tiempo, Comunicaciones de la naturaleza, 2019).
El mismo estudio fija la posición del péptido en cada punto. En 60 ms el conjunto de ribosomas unidos a RF1 está dominado por la forma extendida, con el complejo acomodado y el tripéptido aún en el túnel de salida; por 45 s la densidad del tripéptido ya no está presente en el túnel. Por lo tanto, el secuestro del factor de liberación durante la terminación de la traducción no es instantáneo., y la ventana entre la entrada del codón de parada y la hidrólisis es donde actúa la interferencia dependiente de la secuencia..
La terminación en sí es una secuencia de pasos definidos.. El factor de liberación se une al sitio A en una conformación catalíticamente inactiva.; en el reconocimiento del codón de parada, el bucle y el dominio del interruptor 3 arreglar de nuevo, el motivo GGQ se inserta en el PTC, y sigue la hidrólisis del enlace éster de peptidil-tRNA (Aspectos estructurales de la terminación de la traducción en el ribosoma., PMC). La tasa de liberación medida combina tres pasos elementales: cambio conformacional del factor de liberación, hidrólisis del péptido, y disociación del péptido del ribosoma (Base dinámica de fidelidad y velocidad en la traducción., PMC, 2017).
Esa descomposición explica por qué la identidad de los codones es tan importante. Cambiar el codón cambió tanto la tasa de disociación del factor de liberación como la tasa de liberación medida hasta en tres órdenes de magnitud, sin cambios significativos en la tasa de asociación inicial. La traducción general se ejecuta a aproximadamente 20 aminoácidos por segundo in vivo, equivalente a 50 ms por codón, por lo que una ocupación del túnel de 30 a 40 Los residuos corresponden aproximadamente a 1.5 a 2 segundos de tránsito a ese ritmo. Trátelo como una estimación derivada., no es una constante medida.
¿Qué secuencias cambian ese momento?, y ¿Qué muestra la evidencia medida??
Contra esa ventana corta, un puñado de motivos secuenciales inclinan la balanza de forma fiable, y la mayoría de ellos funcionan interfiriendo con el secuestro del factor de liberación durante la terminación de la traducción.. La prolina en el extremo C junto a un codón de parada es la señal de parada dominante. Una pantalla genética de bibliotecas de péptidos aleatorios en mi. coli descubrió que la causa más común de estancamiento, en más 90% de clones, Es una terminación ineficiente en la secuencia Pro-Stop., con el codón de parada de ópalo UGA sobrerrepresentado en 23 de 29 clones y Glu sobrerrepresentados en 16 de 29 en la posición −2 (Identificación genética de péptidos nacientes que inducen el estancamiento de los ribosomas, PMC, 2009). La liberación es especialmente ineficiente cuando Pro-Stop está precedido por Asp, glu, o profesional. Esta es una sola pantalla, y las frecuencias son recuentos de clones de un sistema de selección, no tasas de población.
Los motivos de la fase de alargamiento son igualmente específicos.. Tres prolinas consecutivas son necesarias y suficientes para una pérdida robusta., y un fuerte estancamiento por parte del PP(incógnita) ocurre cuando X es Asn, Áspid, glu, Gly, Pro, o Trp (Péptidos nacientes que bloquean la síntesis de proteínas en bacterias, PMC). El mismo trabajo define el consenso de elongación como RxPP y HGPP., y un motivo final como parada DTS.
El motivo de detención del SecM FxxxxWIxxxxGIRAGP muestra hasta dónde puede llegar un motivo aguas arriba. Una cadena lateral Trp 11 Los residuos aguas arriba del sitio de la pérdida se unen cerca de la constricción., los tres residuos de Arg aguas arriba se encuentran cerca del PTC, y el Pro-ARNt sin reaccionar se une al sitio A (Péptidos nacientes que bloquean la síntesis de proteínas en bacterias, PMC). El crítico Pro166 no está incorporado a la cadena parada, y el Pro-ARNt sin reaccionar permanece en el sitio A. (Modulación de la actividad del centro peptidil transferasa del ribosoma., PMC, 2008).
A 2025 La estructura crio-EM agrega un segundo mecanismo en el mismo paso. La minihorquilla PepNL bloquea RF2 en el codón de parada: PepNL es un ORF de 14 aminoácidos que detiene la traducción en UGA15 al inhibir RF2, y su penúltima Ile13 ocupa la bolsa formada por A2451, C2452, y U2506 del ARNr 23S, chocando estéricamente con el motivo GGQ de RF2 (Un péptido naciente en forma de minihorquilla bloquea la terminación de la traducción, Comunicaciones de la naturaleza, 2025). Después de la lectura del codón de parada, el ribosoma migró a aproximadamente un aminoácido por minuto en comparación con 4.8 a 26.4 por minuto en el sistema PURE.
Conclusión clave: Los residuos que importan son posicionales., no compositivo. Mover un motivo unos pocos residuos cambia el resultado., y ese es el riesgo de truncamiento de la expresión peptídica que un archivo de secuencia puede señalar antes de que comience cualquier trabajo de laboratorio..
La consecuencia práctica es que los mecanismos ricos en prolina y penúltimo residuo se repiten en sistemas de selección independientes., entonces un C-terminal Pro seguido de un codón de parada, o una serie de prolinas a mitad de secuencia, es una bandera en el archivo de secuencia en lugar de una sorpresa en el gel.
¿Por qué se truncan las secuencias difíciles o no convencionales?, Parar, o expresarse mal?
Síntesis de péptidos comerciales El bajo rendimiento en una secuencia difícil suele leerse como un problema. son al menos tres, y necesitan diferentes soluciones. Estancamiento del lado de la traducción, caída independiente del codón de parada, y la inestabilidad postraduccional reducen la cantidad final de producto completo, Es por eso que el riesgo de truncamiento de la expresión de péptidos se atribuye con tanta frecuencia a un paso equivocado..
El mecanismo del lado de traslación comienza dentro del túnel.. El PTC cataliza la formación de enlaces peptídicos y, junto con el factor de liberación, liberación de péptidos, y su actividad está modulada por la señalización del túnel de salida del péptido (Modulación de la actividad del centro peptidil transferasa del ribosoma., Sociedad de ARN, 2008). Dos péptidos con nombre muestran la dirección de esa señalización: SecM se detiene al inhibir la formación de enlaces peptídicos, y TnaC suprime la actividad hidrolítica inducida por el factor de liberación del PTC desde el interior del túnel.. El alargamiento temprano es donde esto es más frágil.. La mayoría de los péptidos de cinco residuos alcanzarían una región crítica de la cavidad del PTC, y pequeños residuos en posiciones 3 a 5 impedir la canalización hacia el túnel, porque la libertad conformacional que confieren evita que la cadena se oriente hacia la entrada (Jia, Wang & Lehman, Informes Científicos 11:24061, 2021). El séptimo residuo se encuentra en el nivel de U2609..
Cuando el estancamiento no se resuelve, el control de calidad se hace cargo. Los ribosomas colisionados son la firma universal del estancamiento, y los ribosomas estancados están definidos por un canal de ARNm vacío en el sitio A. (Detección y rescate de ribosomas estancados, PMC, 2021). En esos ribosomas, Pelota/Dom34 entregado por Hbs1 carece del motivo GGQ y deja peptidil-ARNt en la subunidad grande, mientras que ZNF598/Hel2 ubiquitila las proteínas 40S y recluta ASC-1/RQT; el split 60S retiene peptidil-tRNA, que la vía de control de calidad de los ribosomas degrada (Control de calidad y vías de señalización en ribosomas estancados., Experimental & Medicina molecular, 2026).
Ninguna fuente leída aquí proporciona una frecuencia de truncamiento per se, así que trate cualquier porcentaje que vea citado para una secuencia específica como no verificado. Lo que se mide es la frecuencia del propio evento de caída independiente del codón de terminación., y ese es el número a partir del cual razonar.
⚠️ Advertencia: Tres modos de falla, tres observables distintivos. El estancamiento del lado de la traducción muestra ribosomas en colisión y un grupo de peptidil-ARNt que el control de calidad está limpiando activamente. La caída independiente del codón de parada libera un producto truncado mientras el ribosoma sigue traduciéndose, por lo que la especie truncada aparece sin una firma de ribosoma estancado. La inestabilidad postraduccional genera un producto completo en el momento del lanzamiento que se degrada posteriormente, por lo que la pérdida aumenta con el tiempo y el manejo en lugar de con la expresión. Asigne su bajo rendimiento al incorrecto y el cambio de construcción que realice no lo moverá.
¿Qué se puede cambiar en una construcción para reducir ese riesgo??
péptido 1 Fábrica Si el mecanismo es a nivel de secuencia., también lo es la mitigación. La primera palanca es el extremo C.. Porque Pro-Stop es la clase de arresto dominante y la liberación es especialmente ineficiente cuando Pro-Stop está precedido por Asp., glu, o profesional (Genético Síntesis de péptidos largos Identificación de péptidos nacientes que inducen el estancamiento de los ribosomas), un terminal Pro adyacente al codón de parada es un defecto a nivel de secuencia que se puede eliminar antes de cualquier ejecución de expresión.
La segunda palanca es la carrera prolina.. Tres codones Pro consecutivos son necesarios y suficientes para un estancamiento robusto, y PP(incógnita) se detiene cuando X es Asn, Áspid, glu, Gly, Pro, o Trp (Péptidos nacientes que bloquean la síntesis de proteínas en bacterias). La misma fuente informa que EF-P suprime el estancamiento en los tramos de poliprolina pero tiene poco o ningún efecto sobre otros péptidos estancadores., incluyendo RxPP, parada DTS, y Glu-Pro-stop. Esa distinción es procesable: El estancamiento de la poliprolina es una cuestión del factor huésped., mientras que los otros motivos no son rescatados por EF-P en absoluto.
La tercera palanca es la cadena temprana.. La mayoría de los péptidos de cinco residuos alcanzarían una región crítica de la cavidad del PTC, lo que puede provocar un bloqueo de péptidos si el residuo N-terminal no está orientado hacia la entrada del túnel, y pequeños aminoácidos en posiciones 3 a 5 confieren una alta libertad conformacional que puede evitar que el péptido sea canalizado hacia el túnel. El séptimo aminoácido se encuentra en el nivel de U2609., que puede ser un residuo clave que garantiza la integración del péptido naciente dentro del túnel de salida. Anclar la metionina iniciadora en el túnel permitiría enderezar el péptido desde el principio.
La cuarta palanca es el anfitrión.. Tasa de alargamiento en promedios de bacterias. 10 a 20 residuos por segundo y 4 a 5 en eucariotas, y etapa I, el extremo N que atraviesa el túnel, se estima en 2 a 12 artículos de segunda clase (Tres épocas de translocación de proteínas nacientes a través del túnel de salida del ribosoma, preimpresión de arXiv). Un ribosoma más lento cambia el tiempo que un motivo marginal permanece en posición de interferir, que es una de las razones por las que la misma construcción puede comportarse de manera diferente entre hosts.
Qué evidencia analítica se necesita antes de que el resultado de una secuencia difícil se trate como reproducible?
Una vez que la construcción está arreglada, La pregunta restante es qué evidencia hace que el resultado sea confiable.. La identidad y la pureza son afirmaciones separadas y necesitan evidencia separada. ICH Q6B requiere pruebas de identidad que sean altamente específicas para la molécula y establece que puede ser necesaria más de una prueba. (Yo Q6B: Presupuesto: Procedimientos de prueba y criterios de aceptación para productos biotecnológicos/biológicos, I, 1999). Una sola banda en un gel no es una prueba de identidad.
La pureza debe definirse frente a un método.. La pureza del péptido describe la proporción del péptido objetivo en relación con los subproductos de síntesis relacionados., secuencias truncadas, productos de eliminación, u otras impurezas visibles bajo el método analítico seleccionado, y una especificación útil indica el objetivo péptido 1 Al por mayor pureza, el enfoque analítico, documentación solicitada, y cualquier expectativa especial del proyecto antes de que comience la producción.. A 95% La especificación puede adaptarse a muchos flujos de trabajo de investigación y detección., mientras 98% Puede ser seleccionado para análisis más exigentes., biológico, o aplicaciones sensibles a la formulación.
Para una secuencia difícil, Los modos de falla son conocidos y deben nombrarse en la especificación.. Algunas secuencias son inherentemente difíciles debido a la hidrofobicidad., longitud, cargar, o propensión a agregar, y la dificultad está impulsada por el comportamiento de secuencia, incluyendo agregación, estructura secundaria, efectos estéricos, o motivos lábiles, en lugar de solo la longitud. Una mayor pureza puede mejorar la interpretabilidad, pero puede aumentar el costo y reducir el rendimiento., especialmente para secuencias difíciles.
La cuestión de la reproducibilidad se responde con datos a nivel de lote., no solo por un certificado de análisis. Porque el truncamiento surge de un ribosoma estancado cuyo peptidil-ARNt se degrada por la vía RQC. (Control de calidad y vías de señalización en ribosomas estancados.), una especie truncada es un producto distinto con su propia masa, y aparecerá en la misma ventana cromatográfica en todas las ejecuciones si la construcción no se modifica. Datos de HPLC y MS específicos del lote que resuelven las especies truncadas del objetivo, declarado en contra del método utilizado para definir la pureza, son los que hacen defendible el resultado de una secuencia difícil.
¿Cuándo debería realizarse una secuencia difícil mediante síntesis química en lugar de expresión ribosómica??
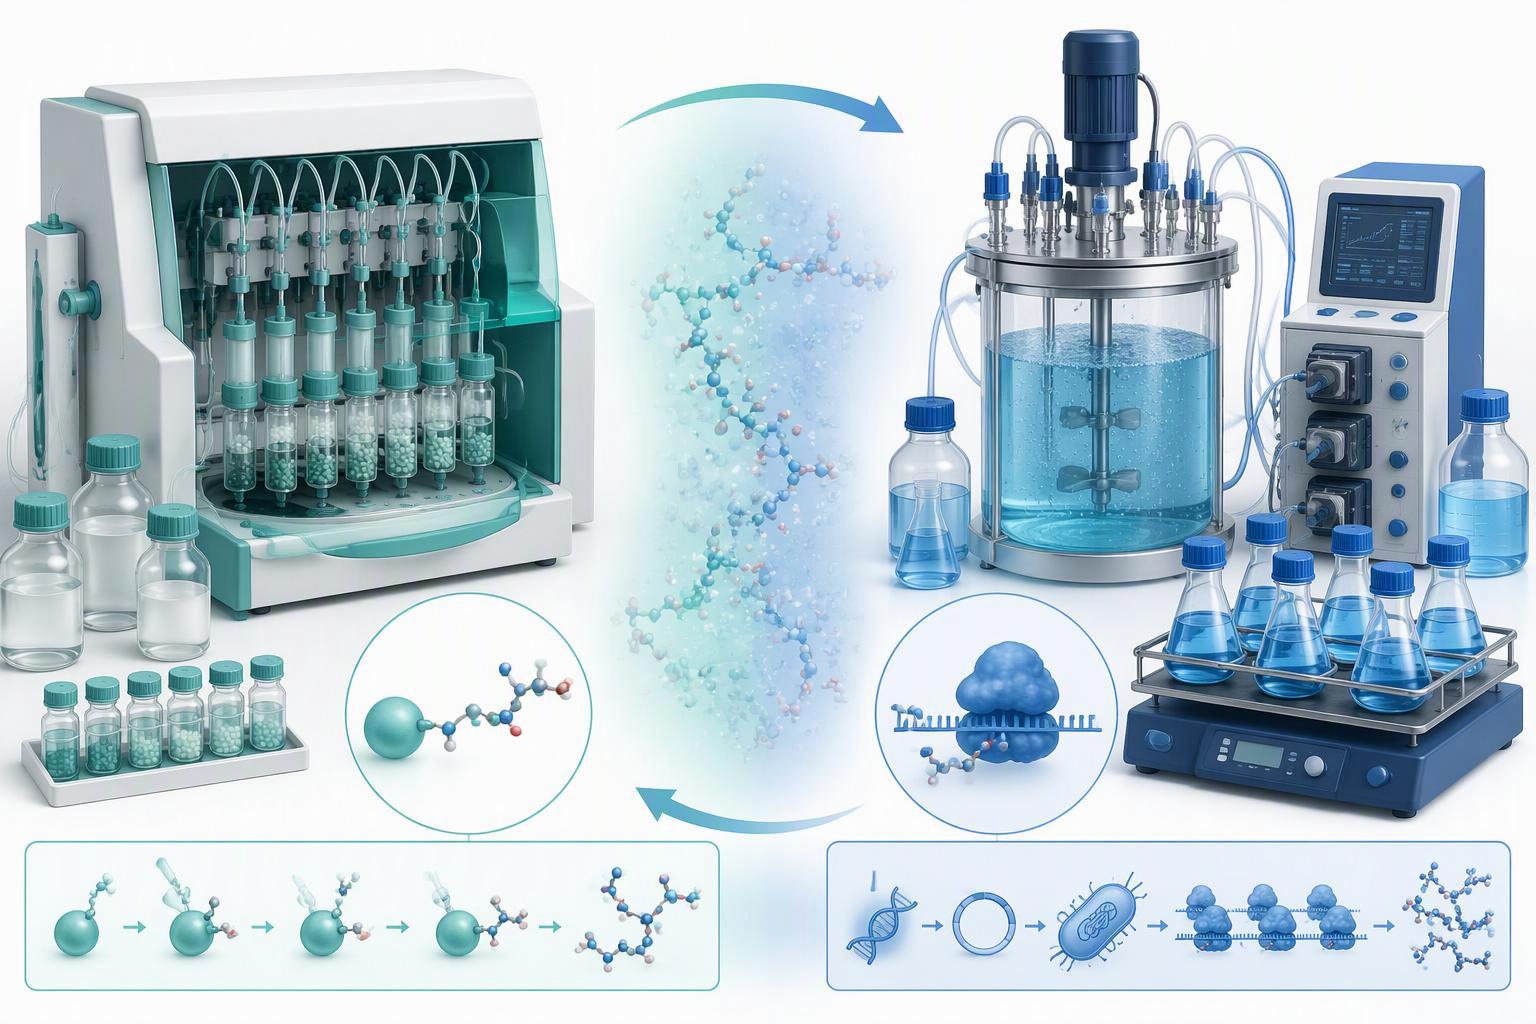
Para algunas secuencias, Ninguna cantidad de rigor analítico fija una ruta que el ribosoma no completará.. El patrón del mercado es claro incluso cuando los datos comparativos no lo son.: 31 de 38 Los fármacos peptídicos pequeños recientemente aprobados se sintetizan químicamente., y longitud de aminoácidos, peso molecular, y la complejidad estructural rastrea si un fármaco se fabrica de forma recombinante o químicamente (Químico vs.. recombinante: Las decisiones de fabricación detrás de los exitosos fármacos peptídicos, Decibio, 2026). La síntesis química se adapta a cantidades pequeñas y medianas con un estricto control de pureza.; El recombinante se vuelve más rentable y escalable en cantidades mayores y secuencias más largas.. En 2021 La FDA emitió una guía esperando que los medicamentos peptídicos genéricos se produzcan químicamente..
El umbral de longitud es direccional., no medido. Secuencias terminadas 30 a 50 Los residuos a menudo se consideran difíciles, y la dificultad está impulsada por el comportamiento de secuencia en lugar de solo por la longitud (Difícil & Péptidos desafiantes, Biosíntesis). Eso 30 a 50 El umbral de residuos es una formulación del proveedor en lugar de un resultado medido.. En la literatura publicada no existe ninguna comparación directa controlada de rendimiento o pureza entre las dos rutas., entonces el límite es una banda de compensación, no es un límite.
El mecanismo sostiene la misma conclusión desde el otro lado.. Una secuencia que detiene el ribosoma será mal manejada por la ruta ribosómica independientemente de la escala., y los motivos del arresto son lo suficientemente específicos como para verificarlos antes de cometerlos.: una prolina C-terminal junto a un codón de parada, una serie de tres o más prolinas, o un penúltimo residuo que puede distorsionarse en el bolsillo GGQ. Cuando esas características están presentes y la cantidad requerida es pequeña o mediana, La síntesis química elimina por completo la restricción ribosómica..
Donde la secuencia es limpia y la cantidad es grande, Se aplican las ventajas de costo y escala de la ruta recombinante.. Por lo tanto, la caracterización de secuencias peptídicas difíciles comienza con una decisión de ruta tomada antes de la primera ejecución de expresión., No se intentó rescatar después de que apareciera una escalera truncada.. Síntesis de péptidos biotinilados
¿En qué se equivoca la gente sobre el túnel de salida??
El segundo error es asumir que el túnel induce helicidad universalmente.. El efecto depende de la secuencia.: El trabajo FRET mostró que una secuencia de proteína secretora es menos helicoidal que una secuencia de proteína de membrana dentro del túnel eucariota, y las secuencias de proteínas solubles tienen helicidad insignificante dentro o fuera de ella., mientras que crio-EM detectó estructura helicoidal solo para secuencias con alta propensión helicoidal (Plegamiento de proteínas en el túnel de salida). Si se pueden formar hélices α en péptidos nacientes cortos durante la Etapa I, antes de que el extremo N abandone el túnel, no está explícitamente claro en la fuente.
El tercer error es leer la cifra de 30 a 40 residuos como una única constante medida.. Es una gama que va desde la protección de la proteólisis, y mide algo diferente a la cifra de alojamiento de hasta 50 residuos (Tres épocas de translocación de proteínas nacientes a través del túnel de salida del ribosoma, preimpresión de arXiv). Combinar los dos produce una estimación de capacidad que es incorrecta en ambas direcciones.
El cuarto error es tratar la forma compacta del factor de liberación como simplemente inactiva.. El marco anterior lo llama catalíticamente inactivo y la forma abierta catalíticamente competente. (Aspectos estructurales de la terminación de la traducción en el ribosoma.), mientras que el estudio resuelto en el tiempo lo llama preacomodación y señala que los factores de liberación compactos se unen al sitio A independientemente de la conformación del centro de decodificación, con la ventaja selectiva de ser una unión y disociación rápidas en un estado que maximiza la precisión (La base estructural para la activación del factor de liberación durante la terminación de la traducción revelada por crio-EM resuelta en el tiempo). Preacomodado es el término más reciente y estructuralmente fundamentado.. péptido 2 Proveedor
El quinto error es esperar que EF-P rescate todos los problemas de prolina.. EF-P elimina el estancamiento en los estiramientos de poliprolina pero tiene poco o ningún efecto sobre RxPP, parada DTS, o Glu-Pro-detener el estancamiento (Péptidos nacientes que bloquean la síntesis de proteínas en bacterias).
Próximos pasos para una secuencia que ya sospecha
Comience con el archivo de secuencia, no es la expresión correr. Marque cada C-terminal Pro dentro de dos residuos de un codón de parada, cada ejecución de tres o más prolinas consecutivas, y las identidades de las posiciones 3 a través de 5 y posición 7. Esas son las características que la evidencia anterior relaciona con el estancamiento., y son visibles antes de que se comprometa cualquier reactivo.
Luego decide la ruta. Si las características marcadas están presentes y la cantidad es pequeña a mediana, La síntesis química elimina la restricción ribosómica., consistente con el patrón que 31 de 38 Los fármacos peptídicos pequeños recientemente aprobados se sintetizan químicamente. (Químico vs.. recombinante: Las decisiones de fabricación detrás de los exitosos fármacos peptídicos, Decibio, 2026). Si la secuencia es limpia y la cantidad es grande, las palancas de construcción, elección de anfitrión, y el paquete analítico anterior son los que deben especificarse.
Escriba la especificación antes de la producción.. Indique la pureza objetivo, el enfoque analítico, la documentación solicitada, y cualquier expectativa especial del proyecto, y requieren datos de HPLC y MS específicos del lote que resuelvan las especies truncadas del objetivo con respecto al método indicado. Requisito de ICH Q6B de que las pruebas de identidad sean altamente específicas para la molécula, con más de una prueba cuando sea necesario, es el piso en lugar del techo (Yo Q6B, I, 1999).
Un límite debe viajar con el plan.. Ninguna fuente leída aquí informa un tiempo de residencia medido en una escala de segundos para un péptido naciente en el túnel., y los tiempos de escape de la simulación, microsegundos en milisegundos, no han sido validados experimentalmente (Tres épocas de translocación de proteínas nacientes a través del túnel de salida del ribosoma, preimpresión de arXiv). El tiempo de residencia es una cantidad derivada., y cualquier conversación con proveedores que lo trate como una constante medida va por delante de la evidencia..
Preguntas frecuentes
¿El ancho del túnel de salida limita qué péptidos se pueden expresar??
No. El túnel es lo suficientemente ancho para una cadena completamente extendida e incluso una hélice α., por lo que el tamaño por sí solo rara vez bloquea la expresión. El límite es cinético.: una secuencia que mantiene la cadena naciente en el túnel demasiado tiempo, o en el registro equivocado, puede detener el alargamiento o interferir con la liberación. El ancho establece la geometría.; el tiempo determina el resultado.
¿El estancamiento y el truncamiento son el mismo fallo??
No, y tratarlos como si enviaran la solución de problemas en la dirección equivocada. El estancamiento es una pausa en el alargamiento, y el ribosoma a menudo puede reanudarse una vez que el obstáculo desaparece. El truncamiento es el resultado permanente.: el ribosoma termina temprano, o el producto completo está degradado, y la cadena más corta es la que recuperas. Un puesto que se resuelve no deja especies truncadas; un bloqueo que no se resuelve normalmente sí lo hace.
¿Cómo distingo un problema del lado de la traducción de un problema de solubilidad??
Mira hacia dónde va el producto., no solo cuánto obtienes. Un problema del lado de la traducción genera una escalera de bandas más cortas en gel., lo que apunta a una terminación prematura dentro del túnel. Un problema de solubilidad da el peso molecular correcto en la fracción insoluble, con poco o nada en el grupo soluble. Ejecute ambas fracciones antes de cambiar la construcción., porque la solución es diferente para cada uno.
¿Puede la optimización de codones rescatar un motivo de estancamiento??
Los cambios de codones sinónimos preservan el motivo peptídico codificado pero pueden alterar la cinética de traducción y el comportamiento del ARNm.. Pueden afectar la expresión o la pausa en algunos contextos sin eliminar necesariamente un mecanismo de detención mediado por péptidos.. Probar experimentalmente el cambio propuesto.
¿Qué especificación de pureza se adapta a una secuencia difícil??
Establecer el objetivo antes de la producción., no después. A 95% La especificación puede adaptarse a muchos flujos de trabajo de investigación y detección., mientras 98% Puede ser seleccionado para análisis exigentes., biológico, o trabajos sensibles a la formulación; Una mayor pureza puede mejorar la interpretabilidad, pero puede aumentar el costo y reducir el rendimiento para una secuencia difícil.. La identidad debe confirmarse mediante pruebas altamente específicas de la molécula., con más de una prueba cuando sea necesario (Yo Q6B, I, 1999).
¿Se puede utilizar hoy en día la estimación del tiempo de residencia de forma predictiva??
No como predictor cuantitativo. Las cifras del tiempo de residencia provienen del trabajo estructural y de una sola molécula en secuencias y condiciones específicas., y no son un modelo general que toma una secuencia arbitraria y devuelve una probabilidad de pérdida. Utilícelos para razonar sobre qué constructos conllevan un mayor riesgo y decidir qué medir., luego confirme con su propia expresión y datos de caracterización.
Conclusión
La respuesta del diseño se deriva de esos anclajes.. Marcar C-terminal Pro adyacente a un codón de parada, carreras de banderas de tres o más prolinas, comprobar posiciones 3 a través de 5 y posición 7, y elija el anfitrión teniendo en cuenta la tasa de alargamiento. Cuando las características marcadas están presentes y la cantidad es pequeña a mediana, La síntesis química elimina la restricción ribosómica.; donde la secuencia es limpia y la cantidad es grande, las palancas de construcción y el paquete analítico conllevan el riesgo.
Dos límites deben viajar con cualquier decisión.. El tiempo de residencia en el túnel es una cantidad derivada, no es una constante medida, y los tiempos de escape basados en simulación no han sido validados experimentalmente. La distancia desde el PTC hasta la constricción no fue confirmada en las fuentes leídas aquí.. Una conversación con proveedores que sea precisa sobre esos límites, y sobre los datos de HPLC y MS a nivel de lote que resolverán una especie truncada del objetivo, es el que se mantendrá cuando se compare la siguiente ejecución con la última.
Acerca del editor. MOL Changes es una organización de investigación y desarrollo de péptidos que ofrece diseño de secuencias personalizado, síntesis y producción, incluyendo rutas de fermentación microbiana y en fase sólida. Por tanto, tiene un interés comercial en cómo se hacen las secuencias difíciles., y los lectores deben sopesar su perspectiva con eso en mente.. La orientación anterior es independiente y no depende de sus servicios..