Qu'est-ce que le tunnel de sortie ribosomale, et pourquoi sa taille impose-t-elle une limite stricte à l'allongement?
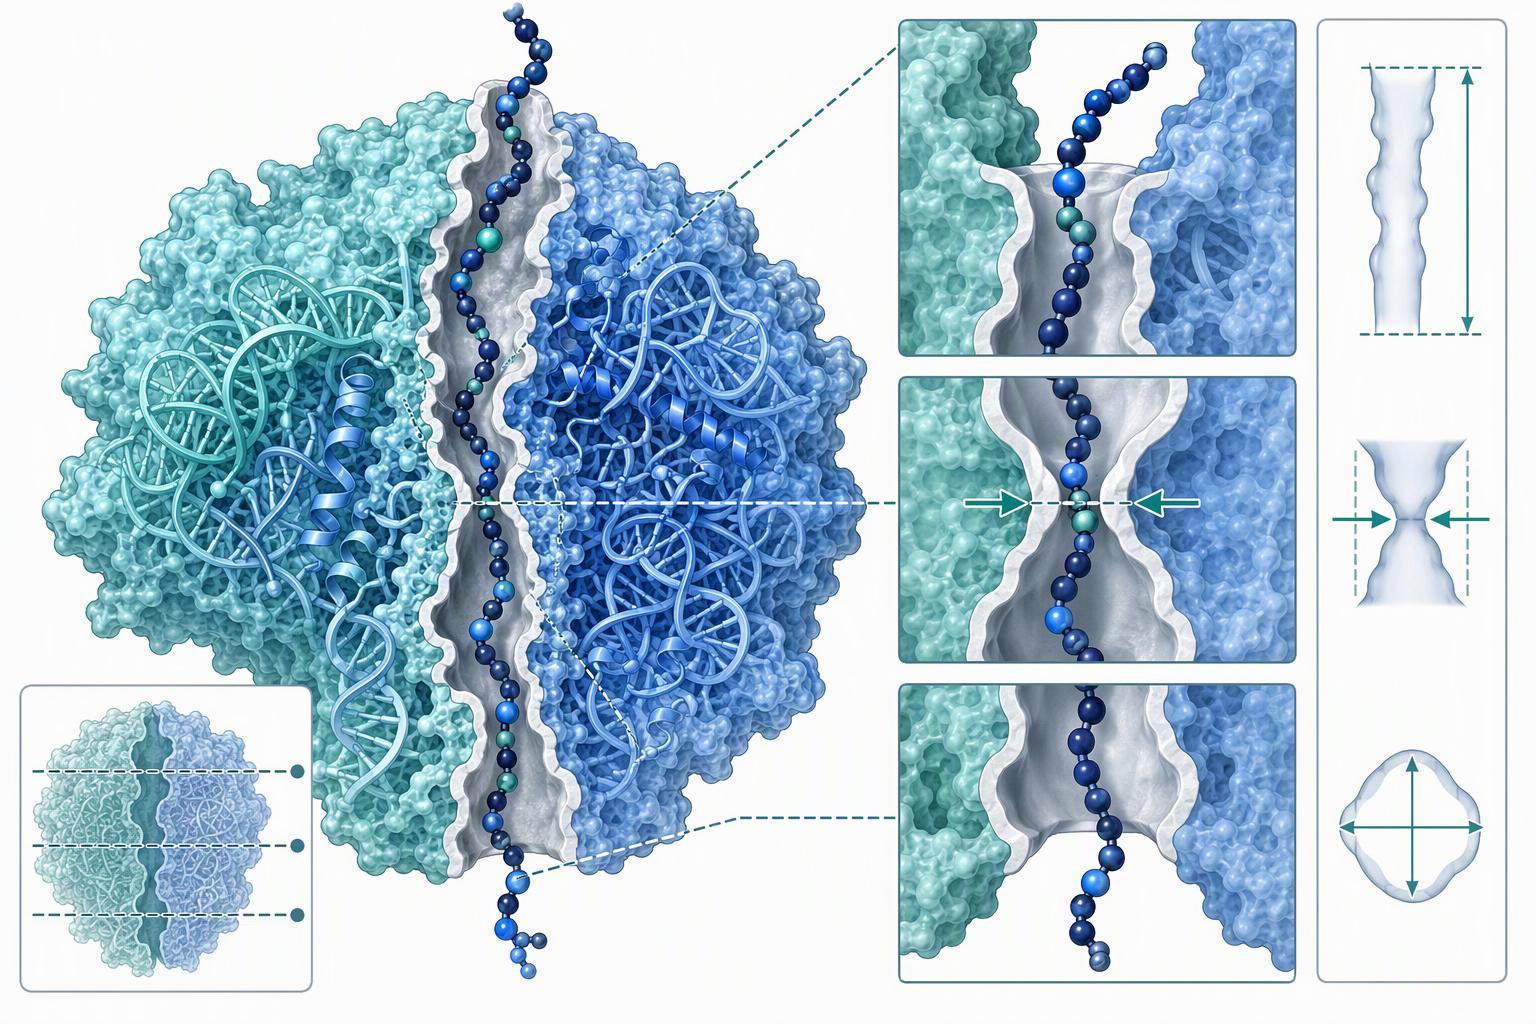
Cette géométrie se transforme en budget résiduel. Un polypeptide entièrement en hélice α enterrerait à peu près 23 résidus s'ils sont complètement étendus et environ 53 si entièrement α-hélicoïdal, à 1.5 Oh canard 3.5 Å par résidu respectivement (Repliement des protéines au tunnel de sortie). La protection mesurée se situe entre ces estimations: 30–40 résidus protégés de la protéolyse, suivre Malkin & Les riches 1967 travaux de poursuite d'impulsions sur la globine naissante dans les polysomes eucaryotes.
Les deux personnages répondent à des questions différentes. La protection contre la protéolyse mesure ce que le tunnel protège des enzymes; l'accommodation mesure ce qui rentre à l'intérieur du ribosome. UN 2024 synthèse préimprimée de la structure, les pinces optiques et les données de simulation rapportent que jusqu'à 50 les résidus peuvent être logés, avec environ 30 Résidus C-terminaux éjectés lors de l'étape finale (Trois époques de translocation naissante de protéines à travers le tunnel de sortie du ribosome, préimpression arXiv). Le goulot d'étranglement physique est la constriction uL4/uL22, formé par des boucles étendues de ces protéines à grandes sous-unités (Repliement des protéines au tunnel de sortie). L'examen indique l'identité de la constriction mais pas sa distance par rapport au PTC., pour que la distance reste ici qualitative plutôt qu'estimée.
Combien de temps un peptide naissant reste-t-il dans le tunnel avant qu'un facteur de libération puisse mettre fin à la traduction?
Il n’existe pas de valeur mesurée à l’échelle des secondes pour le temps de séjour du tunnel de sortie du peptide naissant.. Quelles mesures cryo-EM résolues dans le temps constituent l'étape d'accommodation qui précède la libération: à 24 temps de réaction en ms, 25% du RF1 lié au ribosome est sous la forme compacte de pré-accommodation, et à l'intérieur 60 pratiquement tous les facteurs de libération liés aux ribosomes se sont transformés en leurs formes étendues (La base structurelle de l'activation du facteur de libération lors de la fin de la traduction révélée par le cryo-EM résolu dans le temps, Communications naturelles, 2019).
La même étude fixe la position du peptide en chaque point. À 60 ms l'ensemble des ribosomes liés à RF1 est dominé par la forme étendue, avec le complexe hébergé et le tripeptide toujours dans le tunnel de sortie; par 45 s la densité tripeptidique n'est plus présente dans le tunnel. La séquestration du facteur de libération pendant la fin de la traduction n'est donc pas instantanée, et la fenêtre entre l'entrée du codon stop et l'hydrolyse est l'endroit où l'interférence dépendante de la séquence agit.
La résiliation elle-même est une séquence d'étapes définies. Le facteur de libération lie le site A dans une conformation catalytiquement inactive; sur la reconnaissance des codons d'arrêt, la boucle de commutation et le domaine 3 réarranger, le motif GGQ est inséré dans le PTC, et l'hydrolyse de la liaison ester peptidyl-ARNt s'ensuit (Aspects structurels de la terminaison de la traduction sur le ribosome, PMC). Le taux de libération mesuré combine trois étapes élémentaires: changement conformationnel du facteur de libération, hydrolyse du peptide, et dissociation du peptide du ribosome (Base dynamique de fidélité et de rapidité dans la traduction, PMC, 2017).
Cette décomposition explique pourquoi l'identité des codons est si importante. La modification du codon a modifié à la fois le taux de dissociation du facteur de libération et le taux de libération mesuré jusqu'à trois ordres de grandeur., sans changement significatif du taux d’association initial. La traduction globale prend environ 20 acides aminés par seconde in vivo, équivalent à 50 ms par codon, donc une occupation du tunnel de 30 à 40 les résidus correspondent à peu près à 1.5 à 2 secondes de transit à ce rythme. Traitez cela comme une estimation dérivée, pas une constante mesurée.
Quelles séquences changent ce timing, et que montrent les preuves mesurées?
Contre cette courte fenêtre, une poignée de motifs de séquence font pencher la balance de manière fiable, et la plupart d'entre eux fonctionnent en interférant avec la séquestration du facteur de libération pendant la fin de la traduction.. La proline à l'extrémité C-terminale à côté d'un codon d'arrêt est le signal d'arrêt dominant. Un criblage génétique de bibliothèques de peptides aléatoires dans E. coli a constaté que la cause la plus courante de blocage, dans plus 90% de clones, est une terminaison inefficace à la séquence Pro-Stop, avec le codon stop opale UGA surreprésenté à 23 de 29 clones et Glu surreprésentés à 16 de 29 en position −2 (Identification génétique des peptides naissants qui induisent le blocage des ribosomes, PMC, 2009). La version est particulièrement inefficace lorsque Pro-Stop est précédé d'Asp, Glu, ou Pro. Ceci est un seul écran, et les fréquences sont des comptes de clones provenant d'un système de sélection, pas les taux de population.
Les motifs de phase d'élongation sont également spécifiques. Trois prolines consécutives sont nécessaires et suffisantes pour un décrochage robuste, et décrochage robuste par PP(X) se produit lorsque X est Asn, Aspic, Glu, Gly, Pro, ou Trp (Peptides naissants qui bloquent la synthèse des protéines chez les bactéries, PMC). Le même travail définit le consensus d'allongement comme RxPP et HGPP, et un motif de terminaison comme arrêt DTS.
Le motif d'arrestation SecM FxxxxWIxxxxGIRAGP montre jusqu'où un motif peut atteindre l'amont.. Une chaîne latérale Trp 11 les résidus en amont du site de décrochage se lient près de l'étranglement, les trois résidus Arg en amont se trouvent à proximité du PTC, et le Pro-ARNt n'ayant pas réagi est lié au site A (Peptides naissants qui bloquent la synthèse des protéines chez les bactéries, PMC). Le Pro166 critique n'est pas intégré à la chaîne bloquée, et le Pro-ARNt n'ayant pas réagi reste dans le site A (Moduler l'activité du centre peptidyl transférase du ribosome, PMC, 2008).
UN 2025 La structure cryo-EM ajoute un deuxième mécanisme à la même étape. La mini-épingle à cheveux PepNL bloque RF2 au codon stop: PepNL est un ORF de 14 acides aminés qui arrête la traduction au niveau de l'UGA15 en inhibant RF2, et son avant-dernière Ile13 occupe la poche formée par A2451, C2452, et U2506 de l'ARNr 23S, en conflit stérique avec le motif GGQ de RF2 (Un peptide naissant en forme de mini-épingle à cheveux bloque la terminaison de la traduction, Communications naturelles, 2025). Après la lecture du codon stop, le ribosome a migré à environ un acide aminé par minute contre 4.8 à 26.4 par minute dans le système PURE.
Clé à retenir: Les résidus qui comptent sont positionnels, pas de composition. Déplacer un motif de quelques résidus change le résultat, et c'est le risque de troncature de l'expression peptidique qu'un fichier de séquence peut signaler avant le début de tout travail sur banc..
La conséquence pratique est que les mécanismes riches en proline et en avant-dernier résidu se reproduisent dans les systèmes de sélection indépendants., donc un C-terminal Pro suivi d'un codon stop, ou une série de prolines à mi-séquence, c'est un drapeau sur le fichier de séquence plutôt qu'une surprise au niveau du gel.
Pourquoi les séquences difficiles ou non conventionnelles sont-elles tronquées, Décrochage, ou exprimer mal?
Synthèse peptidique commerciale Un faible rendement sur une séquence difficile est généralement interprété comme un problème. Il est au moins trois, et ils ont besoin de correctifs différents. Calage côté traduction, dépôt indépendant du codon stop, et l'instabilité post-traductionnelle réduisent toutes la quantité finale du produit complet, C'est pourquoi le risque de troncature de l'expression peptidique est si souvent attribué à une mauvaise étape..
Le mécanisme côté traduction démarre à l’intérieur du tunnel. Le PTC catalyse la formation de liaisons peptidiques et, avec facteur de libération, libération de peptide, et son activité est modulée par la signalisation du tunnel de sortie du peptide (Moduler l'activité du centre peptidyl transférase du ribosome, Société ARN, 2008). Deux peptides nommés montrent la direction de cette signalisation: SecM cale en inhibant la formation de liaisons peptidiques, et TnaC supprime l'activité hydrolytique du PTC induite par le facteur de libération depuis l'intérieur du tunnel. L'allongement précoce est l'endroit où il est le plus fragile. La plupart des peptides de cinq résidus atteindraient une région critique de la cavité PTC, et de petits résidus aux positions 3 à 5 empêcher la canalisation vers le tunnel, car la liberté conformationnelle qu'ils confèrent empêche la chaîne de s'orienter vers l'entrée (Jia, Wang & Lehmann, Rapports scientifiques 11:24061, 2021). Le septième résidu se situe au niveau de U2609.
Lorsque le blocage n’est pas résolu, le contrôle qualité prend le relais. Les ribosomes entrés en collision sont la signature universelle du décrochage, et les ribosomes bloqués sont définis par un canal d'ARNm vide dans le site A (Détection et sauvetage des ribosomes bloqués, PMC, 2021). À ces ribosomes, Pelota/Dom34 délivré par Hbs1 n'a pas le motif GGQ et laisse du peptidyl-ARNt sur la grande sous-unité, tandis que ZNF598/Hel2 ubiquityle les protéines 40S et recrute ASC-1/RQT; la division 60S retient le peptidyl-ARNt, que la voie de contrôle de la qualité des ribosomes dégrade (Contrôle de qualité et voies de signalisation au niveau des ribosomes bloqués, Expérimental & Médecine Moléculaire, 2026).
Aucune source lue ici ne donne une fréquence de troncature en soi, alors traitez tout pourcentage que vous voyez cité pour une séquence spécifique comme non vérifié. Ce qui est mesuré, c'est la fréquence de l'événement de chute indépendant du codon stop lui-même., et c'est le nombre à partir duquel raisonner.
⚠️ Attention: Trois modes de défaillance, trois observables distinctifs. Le blocage côté traduction montre des ribosomes entrés en collision et un pool de peptidyl-ARNt que le contrôle qualité élimine activement. Le drop-off indépendant du codon stop libère un produit tronqué tandis que le ribosome continue de se traduire, donc l'espèce tronquée apparaît sans signature de ribosome bloqué. L'instabilité post-traductionnelle donne un produit complet à la sortie qui se dégrade par la suite, donc la perte évolue avec le temps et la manipulation plutôt qu'avec l'expression. Attribuez votre faible rendement au mauvais et le changement de construction que vous apportez ne le déplacera pas.
Que peut-on changer dans une construction pour réduire ce risque?
Peptide 1 Usine Si le mécanisme est au niveau de la séquence, l'atténuation aussi. Le premier levier est le C-terminus. Parce que Pro-Stop est la classe d'arrestation dominante et que la libération est particulièrement inefficace lorsque Pro-Stop est précédé par Asp, Glu, ou Pro (Génétique Synthèse peptidique longue Identification des peptides naissants qui induisent le blocage des ribosomes), un terminal Pro adjacent au codon d'arrêt est un défaut au niveau de la séquence qui peut être supprimé avant toute exécution d'expression.
Le deuxième levier est la course proline. Trois codons Pro consécutifs sont nécessaires et suffisants pour un décrochage robuste, et PP(X) cale lorsque X est Asn, Aspic, Glu, Gly, Pro, ou Trp (Peptides naissants qui bloquent la synthèse des protéines chez les bactéries). La même source rapporte que l'EF-P supprime le blocage au niveau des séquences de polyproline mais a peu ou pas d'effet sur les autres peptides de blocage., y compris RxPP, Arrêt DTS, et Glu-Pro-stop. Cette distinction est exploitable: le blocage de la polyproline est une question de facteur hôte, alors que les autres motifs ne sont pas du tout sauvés par EF-P.
Le troisième levier est la première chaîne. La plupart des peptides de cinq résidus atteindraient une région critique de la cavité PTC, ce qui peut entraîner un blocage du peptide si le résidu N-terminal n'est pas orienté vers l'entrée du tunnel, et petits acides aminés dans les positions 3 à 5 confère une liberté conformationnelle élevée qui peut empêcher le peptide d'être canalisé vers le tunnel. Le 7ème acide aminé se situe au niveau de U2609, qui pourrait être un résidu clé assurant l’intégration du peptide naissant à l’intérieur du tunnel de sortie. Ancrer la méthionine initiatrice dans le tunnel permettrait de redresser le peptide dès le départ.
Le quatrième levier est l'hôte. Taux d'élongation des bactéries en moyenne 10 à 20 résidus par seconde et 4 à 5 chez les eucaryotes, et étape I, le terminus N traversant le tunnel, est estimé à 2 à 12 secondes (Trois époques de translocation naissante de protéines à travers le tunnel de sortie du ribosome, préimpression arXiv). Un ribosome plus lent modifie la durée pendant laquelle un motif marginal reste en position d'interférer, c'est l'une des raisons pour lesquelles la même construction peut se comporter différemment selon les hôtes.
Quelles preuves analytiques sont nécessaires avant qu'un résultat de séquence difficile soit traité comme reproductible?
Une fois la construction corrigée, la question restante est de savoir quelles preuves rendent le résultat digne de confiance. L'identité et la pureté sont des revendications distinctes et nécessitent des preuves distinctes. L'ICH Q6B exige des tests d'identité très spécifiques à la molécule et précise que plusieurs tests peuvent être nécessaires. (Je Q6B: Caractéristiques: Procédures d'essai et critères d'acceptation pour les produits biotechnologiques/biologiques, je, 1999). Une seule bande sur un gel n'est pas un test d'identité.
La pureté doit être définie par rapport à une méthode. La pureté du peptide décrit la proportion du peptide cible par rapport aux sous-produits de synthèse associés., séquences tronquées, produits de suppression, ou d'autres impuretés visibles sous la méthode d'analyse sélectionnée, et une spécification utile indique la cible Peptide 1 De gros pureté, l'approche analytique, documentation demandée, et toute attente particulière du projet avant le début de la production. UN 95% la spécification peut convenir à de nombreux flux de travail de recherche et de sélection, alors que 98% peut être sélectionné pour des analyses plus exigeantes, biologique, ou applications sensibles à la formulation.
Pour une séquence difficile, les modes de défaillance sont connus et doivent être nommés dans la spécification. Certaines séquences sont intrinsèquement difficiles en raison de leur hydrophobie, longueur, charge, ou propension à agréger, et la difficulté dépend du comportement de la séquence, y compris l'agrégation, structure secondaire, effets stériques, ou motifs labiles, plutôt que la longueur seule. Une pureté plus élevée peut améliorer l’interprétabilité, mais cela peut augmenter les coûts et réduire le rendement, surtout pour les séquences difficiles.
La question de la reproductibilité trouve une réponse à l'aide de données au niveau du lot, pas par un seul certificat d'analyse. Parce que la troncature provient d'un ribosome bloqué dont le peptidyl-ARNt est dégradé par la voie RQC (Contrôle de qualité et voies de signalisation au niveau des ribosomes bloqués), une espèce tronquée est un produit distinct avec sa propre masse, et il apparaîtra dans la même fenêtre chromatographique d'une série à l'autre si la construction reste inchangée.. Données HPLC et MS spécifiques au lot qui résolvent les espèces tronquées de la cible, opposé à la méthode utilisée pour définir la pureté, sont ce qui rend défendable un résultat de séquence difficile.
Quand une séquence difficile doit-elle être réalisée par synthèse chimique au lieu de l'expression ribosomale?
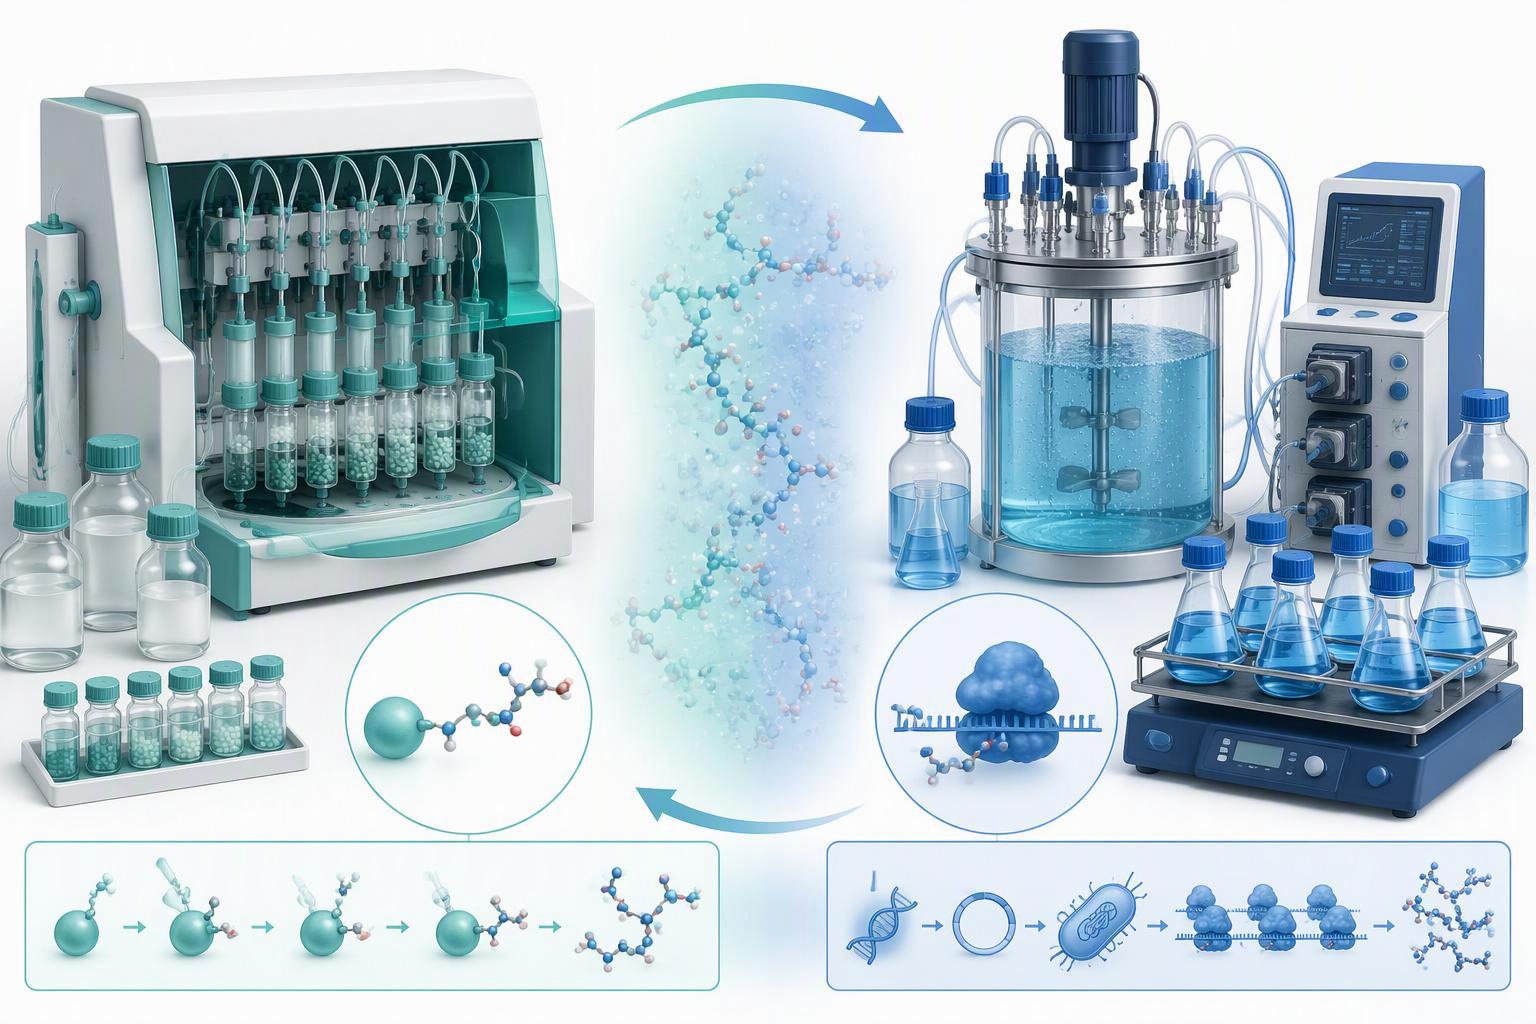
Pour certaines séquences, aucune rigueur analytique ne fixe un itinéraire que le ribosome ne parviendra pas à accomplir. La structure du marché est claire même là où les données comparatives ne le sont pas.: 31 de 38 Les petits médicaments peptidiques récemment approuvés sont synthétisés chimiquement, et la longueur des acides aminés, poids moléculaire, et la complexité structurelle permet de déterminer si un médicament est fabriqué de manière recombinante ou chimique. (Chimique vs. Recombinant: Les décisions de fabrication derrière les médicaments peptidiques à succès, Décibio, 2026). La synthèse chimique convient aux petites et moyennes quantités avec un contrôle strict de la pureté; le recombinant devient plus rentable et évolutif avec des quantités plus importantes et des séquences plus longues. Dans 2021 la FDA a publié des directives s'attendant à ce que les médicaments peptidiques génériques soient produits chimiquement.
Le seuil de longueur est directionnel, non mesuré. Séquences terminées 30 à 50 les résidus sont souvent signalés comme difficiles, et la difficulté dépend du comportement de la séquence plutôt que de la seule longueur (Difficile & Peptides difficiles, Bio-synthèse). Que 30 à 50 le seuil de résidu est un cadrage du fournisseur plutôt qu'un résultat mesuré. Aucune comparaison contrôlée de rendement ou de pureté entre les deux voies n'existe dans la littérature publiée., donc la frontière est une bande de compromis, pas une coupure.
Le mécanisme avance la même conclusion de l’autre côté. Une séquence qui bloque le ribosome sera mal gérée par la voie ribosomale, quelle que soit son échelle., et les motifs de l'arrestation sont suffisamment précis pour être vérifiés avant de commettre: une proline C-terminale à côté d'un codon stop, une série de trois prolines ou plus, ou un avant-dernier résidu qui peut se déformer dans la poche GGQ. Lorsque ces caractéristiques sont présentes et que la quantité requise est faible à moyenne, la synthèse chimique supprime entièrement la contrainte ribosomale.
Où la séquence est propre et la quantité est grande, les avantages de la voie recombinante en termes de coût et d’échelle s’appliquent. La caractérisation difficile des séquences peptidiques commence donc par une décision de route prise avant le premier essai d'expression., pas de tentative de sauvetage après l'apparition d'une échelle de troncature. Synthèse des Peptides Biotinylés
Qu'est-ce que les gens se trompent à propos du tunnel de sortie?
La deuxième erreur est de supposer que le tunnel induit une hélicité universelle.. L'effet dépend de la séquence: Les travaux de FRET ont montré qu'une séquence protéique sécrétoire est moins hélicoïdale qu'une séquence protéique membranaire à l'intérieur du tunnel eucaryote, et les séquences de protéines solubles ont une hélicité négligeable à l'intérieur ou à l'extérieur d'elles, tandis que le cryo-EM a détecté une structure hélicoïdale uniquement pour les séquences à forte propension hélicoïdale (Repliement des protéines au tunnel de sortie). Si des hélices α peuvent se former sur de courts peptides naissants au cours du stade I, avant que le terminus N quitte le tunnel, n'est explicitement pas clair dans la source.
La troisième erreur consiste à lire le chiffre de 30 à 40 résidus comme une seule constante mesurée.. C'est une gamme allant de la protection contre la protéolyse, et il mesure quelque chose de différent du chiffre d'hébergement pouvant aller jusqu'à 50 résidus (Trois époques de translocation naissante de protéines à travers le tunnel de sortie du ribosome, préimpression arXiv). La confusion des deux produit une estimation de capacité erronée dans les deux sens.
La quatrième erreur consiste à traiter la forme compacte du facteur de libération comme simplement inactive.. Le cadrage précédent l'appelle catalytiquement inactif et la forme ouverte catalytiquement compétente. (Aspects structurels de la terminaison de la traduction sur le ribosome), tandis que l'étude résolue dans le temps l'appelle pré-accommodation et note que les facteurs de libération compacts lient le site A quelle que soit la conformation du centre de décodage., l'avantage sélectif étant une liaison et une dissociation rapides dans un état maximisant la précision (La base structurelle de l'activation du facteur de libération lors de la fin de la traduction révélée par le cryo-EM résolu dans le temps). Pré-accommodé est le terme le plus récent et structurellement ancré. Peptide 2 Fournisseur
La cinquième erreur est de s'attendre à ce qu'EF-P résolve tous les problèmes de proline. EF-P supprime le décrochage sur les tronçons de polyproline mais a peu ou pas d'effet sur RxPP, Arrêt DTS, ou Glu-Pro-stop décrochage (Peptides naissants qui bloquent la synthèse des protéines chez les bactéries).
Prochaines étapes pour une séquence que vous soupçonnez déjà
Commencez par le fichier de séquence, pas l'expression courir. Marquez chaque C-terminal Pro dans les deux résidus d'un codon d'arrêt, chaque série de trois prolines consécutives ou plus, et les identités des postes 3 à travers 5 et position 7. Ce sont les caractéristiques que les preuves ci-dessus associent au blocage, et ils sont visibles avant qu'un réactif ne soit engagé.
Ensuite, décidez de l'itinéraire. Si les fonctionnalités signalées sont présentes et que la quantité est faible à moyenne, la synthèse chimique supprime la contrainte ribosomale, conforme au modèle qui 31 de 38 Les petits médicaments peptidiques récemment approuvés sont synthétisés chimiquement (Chimique vs. Recombinant: Les décisions de fabrication derrière les médicaments peptidiques à succès, Décibio, 2026). Si la séquence est propre et la quantité est importante, les leviers de construction, choix de l'hôte, et le package analytique ci-dessus sont ceux à spécifier.
Rédiger le cahier des charges avant la production. Indiquer la pureté cible, l'approche analytique, les documents demandés, et toute attente particulière en matière de projet, et nécessitent des données HPLC et MS spécifiques au lot qui résolvent les espèces tronquées de la cible par rapport à la méthode indiquée. Exigence de l’ICH Q6B selon laquelle les tests d’identité doivent être hautement spécifiques à la molécule, avec plus d'un test si nécessaire, est-ce le sol plutôt que le plafond (Je Q6B, je, 1999).
Une limite devrait voyager avec le plan. Aucune source lue ici ne rapporte un temps de séjour mesuré à l'échelle des secondes pour un peptide naissant dans le tunnel, et les temps d'échappement de la simulation, microsecondes en millisecondes, n'ont pas été validés expérimentalement (Trois époques de translocation naissante de protéines à travers le tunnel de sortie du ribosome, préimpression arXiv). Le temps de séjour est une quantité dérivée, et toute conversation avec un fournisseur qui la traite comme une constante mesurée est en avance sur les preuves.
Foire aux questions
La largeur du tunnel de sortie limite-t-elle les peptides pouvant être exprimés?
Non. Le tunnel est suffisamment large pour une chaîne entièrement étendue et même une hélice α, donc la taille seule bloque rarement l'expression. La limite est cinétique: une séquence qui maintient trop longtemps la chaîne naissante dans le tunnel, ou dans le mauvais registre, peut bloquer l’allongement ou interférer avec la libération. La largeur définit la géométrie; le timing détermine le résultat.
Le décrochage et la troncature sont-ils le même échec?
Non, et les traiter comme si on envoyait le dépannage dans la mauvaise direction. Le décrochage est une pause dans l'allongement, et le ribosome peut souvent reprendre une fois l'obstacle franchi. La troncature est le résultat permanent: le ribosome se termine tôt, ou le produit complet est dégradé, et la chaîne la plus courte est ce que vous récupérez. Un décrochage qui se résout ne laisse aucune espèce tronquée; un décrochage qui ne se résout pas le fait généralement.
Comment distinguer un problème de traduction d'un problème de solubilité?
Regardez où va le produit, pas seulement combien tu reçois. Un problème côté traduction donne une échelle de bandes plus courtes sur le gel, ce qui indique une terminaison prématurée à l'intérieur du tunnel. Un problème de solubilité donne le bon poids moléculaire dans la fraction insoluble, avec peu ou pas de solution dans le pool soluble. Exécutez les deux fractions avant de changer la construction, parce que le correctif est différent pour chacun.
L'optimisation des codons peut-elle sauver un motif de blocage?
Les changements de codons synonymes préservent le motif peptidique codé mais peuvent modifier la cinétique de traduction et le comportement de l'ARNm. Ils peuvent affecter l'expression ou la pause dans certains contextes sans nécessairement supprimer un mécanisme d'arrêt médié par les peptides.. Tester expérimentalement le changement proposé.
Quelle spécification de pureté convient à une séquence difficile?
Fixer l’objectif avant la production, pas après. UN 95% la spécification peut convenir à de nombreux flux de travail de recherche et de sélection, alors que 98% peuvent être sélectionnés pour des analyses exigeantes, biologique, ou travaux sensibles à la formulation; une pureté plus élevée peut améliorer l'interprétabilité mais peut augmenter les coûts et réduire le rendement pour une séquence difficile. L'identité doit être confirmée par des tests hautement spécifiques à la molécule, avec plus d'un test si nécessaire (Je Q6B, je, 1999).
L’estimation du temps de séjour peut-elle être utilisée de manière prédictive aujourd’hui?
Pas comme prédicteur quantitatif. Les chiffres du temps de séjour proviennent de travaux structurels et monomolécules sur des séquences et des conditions spécifiques, et il ne s'agit pas d'un modèle général qui prend une séquence arbitraire et renvoie une probabilité de décrochage. Utilisez-les pour déterminer quels construits présentent un risque plus élevé et décider quoi mesurer., puis validez avec vos propres données d'expression et de caractérisation.
Conclusion
La réponse de conception découle de ces ancrages. Marquer le C-terminal Pro adjacent à un codon stop, courses de drapeaux de trois prolines ou plus, vérifier les positions 3 à travers 5 et position 7, et choisissez l'hôte en tenant compte du taux d'allongement. Lorsque les caractéristiques signalées sont présentes et que leur quantité est faible à moyenne, la synthèse chimique supprime la contrainte ribosomale; où la séquence est propre et la quantité est grande, les leviers de construction et le package analytique comportent le risque.
Deux limites devraient accompagner toute décision. Le temps de séjour dans le tunnel est une quantité dérivée, pas une constante mesurée, et les temps d'échappement basés sur la simulation n'ont pas été validés expérimentalement. La distance entre le PTC et le rétrécissement n'a pas été confirmée dans les sources lues ici. Une conversation fournisseur précise sur ces limites, et sur les données HPLC et MS au niveau du lot qui permettront de résoudre une espèce tronquée de la cible, est celui qui tiendra le coup lorsque la prochaine exécution sera comparée à la dernière.
À propos de l'éditeur. MOL Changes est une organisation de recherche et développement de peptides qui propose une conception de séquences personnalisées, synthèse et production, y compris les voies de fermentation en phase solide et microbienne. Il a donc un intérêt commercial dans la manière dont les séquences difficiles sont réalisées., et les lecteurs devraient peser son point de vue en gardant cela à l'esprit. Les conseils ci-dessus sont autonomes et ne dépendent pas de ses services.