快速解答
AdipoR2 环肽研究如何重构定制肽设计: 终点站, 修改, 纯度规格和正交分析确认.
149-166 的屏幕实际上证明了什么, 以及它留下的内容
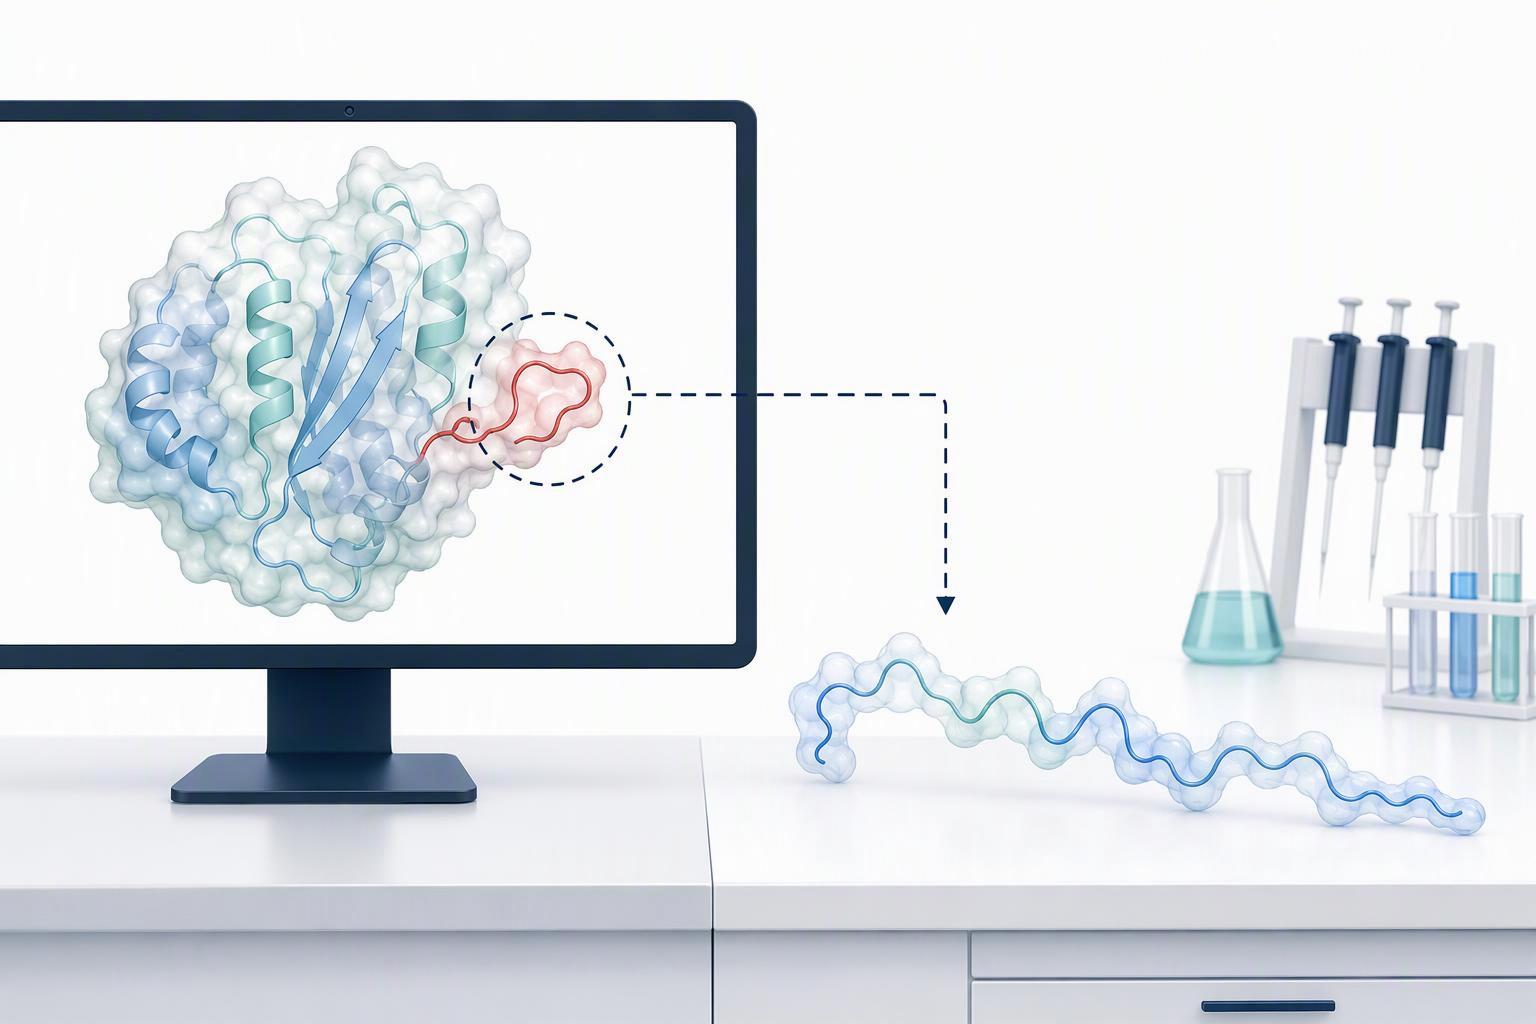
AdipoR2 环肽研究确定了一个区域, 不是化合物. 奥特沃斯和同事进行筛选 66 重叠的 10 聚体肽, 每个移动两个残基, 人脂联素球状结构域的平铺残基 105–254. 肽 23-27 抑制 MCF-7 增殖 19-26% 50 的/mL, 而该组中的所有其他肽都给出了 3% 或更少 (奥特沃斯等人。, BMC生物科技, 2011). 活性片段映射到残基 149–166, 提议将 Ile-Pro-Gly-Leu-Tyr-Tyr-Phe-Ala 作为最小活性位点,并在 Gly155 和 Tyr158 处耐受保守取代.
对于膜结合阵列屏幕来说这是一个强有力的结果, 这也是确定性结束的地方. 屏幕报告哪个序列窗口以该格式绑定和抑制. 它没有报告相同序列作为游离肽合成后的作用, 因为两者在同一环境下不是同一个分子. 在天然蛋白质中, 残基 149-166 作为表面环,通过其周围的折叠球状结构域保持固定构象. 分离的 149-166 肽没有这样的支架. 它是移动的, 它对许多构象进行采样, 并且只有其中一些类似于屏幕实际选择的循环.
对于小费: 将数组数据读取为映射, 不是测量. 积极的表现告诉您该地区值得追求; 它没有告诉你游离肽会重现效果.
约束环和移动线性肽之间的差距是本文其余部分要解决的设计问题. 这也是像这样的序列的定制肽设计从末端和修饰开始而不是从序列本身开始的原因.
为什么 ADP355 序列会这样读取
ADP355 序列正是为了弥补这一差距. ADP355 是 H-DAsn-Ile-Pro-Nva-Leu-Tyr-DSer-Phe-Ala-DSer-NH2: 四种非天然残基, 其中三个 D-氨基酸, 由 C 端酰胺封端, 两个末端均放置有非天然残基,专门用于抵抗外肽酶切割 (奥特沃斯等人。, 化学前沿, 2014). 该字符串中没有任何内容是装饰性的. 每个替换都回答一个指定的责任, 这就是设计肽与修饰肽的区别.
设计师自己的理由异常明确. 位置 Nva 3 恢复受体激活, 因为那里的天然残留物是Leu; DSer5 提高稳定性并促进结合,但本身不支持激动剂功能; DSer8 保留绑定. 报道的血清稳定性归因于四个非天然部分, 其中三个D-残基 (奥特沃斯等人。, 2014). 注意该逻辑中的不对称性: DSer5 购买了结合力和稳定性, 未激活, 因此,扫描“D 残基越多越好”的读者会误读设计.
酰胺化是程序的默认设置,而不是一次性的. ADP355 在设计表中以 -NH2 结尾, 拮抗剂 ADP400 和分支二聚体 ADP399 也是如此 (奥特沃斯等人。, 2014). 下表将每个选择映射到其打算购买的房产及其背后的证据, 因此肽末端和修饰可以被视为一个决策集而不是菜单.
|
修改 |
职位或范围 |
预期财产 |
证据 |
|---|---|---|---|
|
N端畅通 |
JT系列 |
保留天然 N 端相互作用 |
奥特沃斯等人。, 2014 |
|
C端酰胺 |
ADP355, ADP400, ADP399 |
外肽酶抗性; 程序默认值 |
奥特沃斯等人。, 2014 |
|
位置 3 |
恢复天然残基为 Leu 的受体激活 |
奥特沃斯等人。, 2014 |
|
|
DSer |
职位 5 和 8 |
DSer5: 稳定性和结合力, 未激活. 固相蛋白质合成 DSer8: 保留绑定 |
奥特沃斯等人。, 2014 |
|
酪氨酸159丝氨酸 |
序列变体 |
改变受体相互作用概况 |
奥特沃斯等人。, 2014 Gmp多肽合成 |
|
区域1 固相多肽合成仪 61天冬氨酸 |
序列变体 |
引入收费 |
奥特沃斯等人。, 2014 |
对于小费: 读取任何肽序列字符串 N 到 C, 从左到右, 并将每个小写“D”前缀视为具有其自身合理性的单独设计决策. 如果您无法说出特定残留物会给您带来什么, 它可能没有在综合队列中占据一席之地.
JT系列的改变买了什么, 在数字上
第二代 JT 系列用原生模仿换取了可测量的持久性, 并且贸易是可量化的. 徐等. 自然通讯报道 (2020) 重新设计引入了 Tyr159Ser 以提高溶解度,并引入 Ala161Asp 以赋予肽负电荷, 而正缬氨酸 (尼瓦) 纳入以提高稳定性并延长血清半衰期. Nva出现在JT003中, JT004, JT005和JT006, 在整个系列中以不同方式组合.
血清持久性比较是最明确的结果. JT003大致保留 22% 后的肽 12 小鼠血清中的小时数, 静脉给药后 ADP355 仅可测量 45 分钟,而 JT003 持续时间更长.
警告: JT003 还结合 AdipoR1 和 AdipoR2,其 Kd 显着低于 JT006 和 ADP355, 但确切的 Kd 值仅出现在图中. 8我无法从文本中读取. 将这种比较视为有方向性的, 不是数字. 固相肽合成
纯度和分析确认决定结果的含义
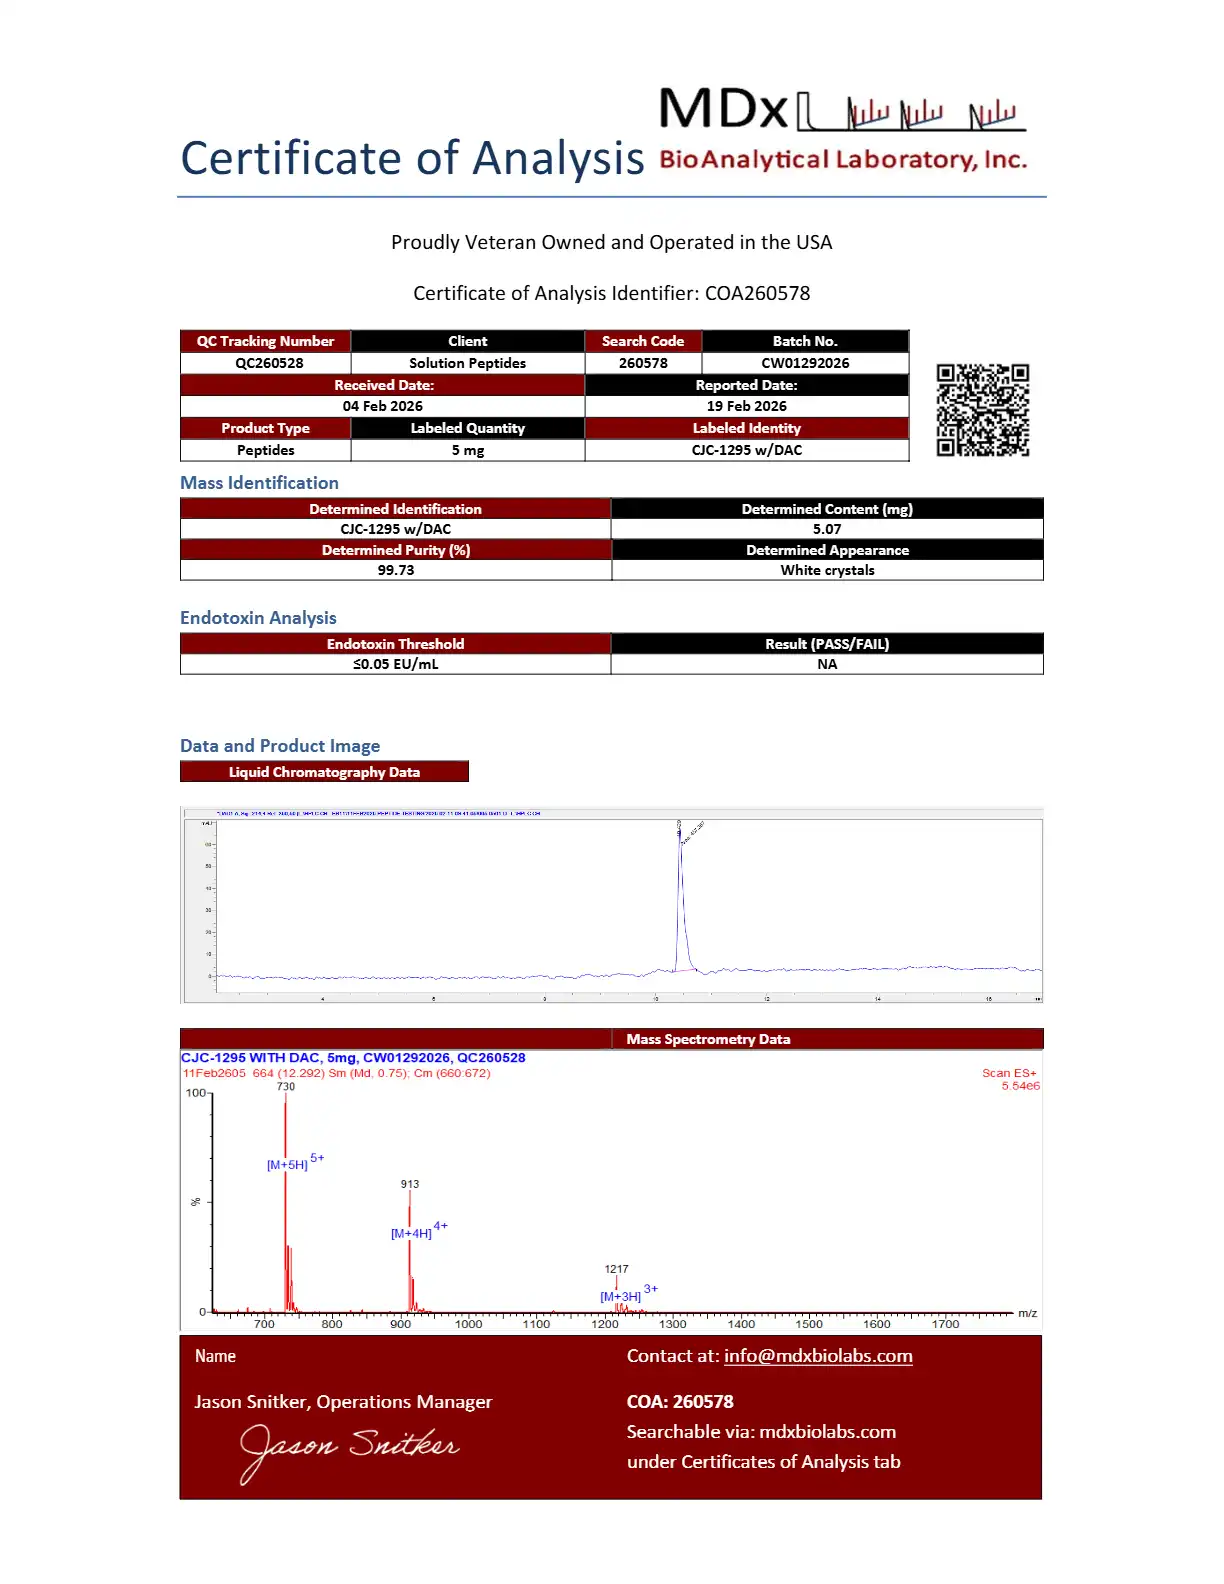
只有当批次本身如标签所述时,持久性才可以解释. 正确的质量可确认身份. 它没有提到纯度, 每当返回的结合结果弱于预期时,两者就会混为一谈. 方法部分必须修复的规范机制是由 N 到 C 编写的序列,并且两个术语都明确说明, 规定的任何上限 (乙酰胆碱- 在N端, -C 端的 NH2, 或预期的游离酸), 修改位置指定, 抗衡离子和盐形式, 总肽含量或净肽含量的数量, 纯度为最小 RP-HPLC 面积百分比,方法为, MS 确认加上 MS/MS 序列, 和批次特定的 CoA (肽合成简介, PMC).
这就是为什么纯度百分比不是身份声明的原因. FDA CDER 和 EMA 框架均将单一 RP-HPLC 检测视为不足以证明合成肽的身份和纯度; IND 提交材料必须显示至少两个独立的结构确认, 物理化学正交法, 正交纯度 (RP-HPLC 加 CE) 指定面积百分比≥95.0–98.0%, 批次间差异≤1.0%, 以及下面个别未知杂质 0.10% 具有删除和截断物种的结构分配 (MOL Changes, “为 FDA 快速审查准备肽 IND: CMC 检查表”, 2026-08-19).
要点: 同一性和纯度是不同的主张. 质量确认数字回答“这是正确的分子吗”, 从来不“这个分子占这批货的多少”.
混淆生物学的杂质类别是缺失, 截断, 氧化, 脱酰胺化, 不完全脱保护, 和错误的末端化学. 每个人都可以坐在路过的纯洁人物里面, 每个都可以改变弱或负读数的含义.
困难环肽的规格清单
定制肽设计在订单中比在工作台上更容易失败. 下面的每一行之所以存在,是因为设计选择改变了结果的含义.
工作规格块
-
顺序, N 至 C, 这两个术语都明确: 例如. 阿克-[循环序列]-氨气
-
上限规定: N-末端乙酰基, 游离胺, 或其他
-
修改位置指定: 位置 Nva 3, 该位置的 D-残基 7
-
抗衡离子命名为: 醋酸盐, 三氟乙酸, 或氯化物
-
总肽或净肽的数量
-
净化地板的方法名为: RP-HPLC 测定≥95%
-
正交确认: LC-MS 加氨基酸分析
-
批次特定 CoA
端子盖可产生不同的化合物, 不是变体. 在一个 2020 Abeta39-42 衍生的四肽的研究, 游离酸VVIA-OH给出 66.2, 60.6 和 33.9% ThT 抑制 10, 4 和 2 微米, 而酰胺化的 VVIA-NH2 给出 52.1, 52.7 和 58.8% (Abeta39-42 片段衍生肽 C 端酰胺化的影响, 2020). 同一来源清楚地说明了该规则: 酰胺化增强了某些肽的抑制潜力并降低了其他肽的抑制潜力. 没有默认值.
肽末端和修饰也决定亲和力值是否具有可比性. 当相同的肽在 Biacore 芯片上运行时, ADP355 估计为 >100 在所应用的SPR系统下针对AdipoR1的μM, 因为平衡响应未接近 Rmax 并且无法计算 Kd (发现一种新型强效脂联素受体肽激动剂 1, 2018). 同一张表报告了 BHD44 4.3 微米, BHD43 在 10 μM 和 BHD1028 在 16 微米. 小分子比较器, 脂肪龙, 坐在附近 1.8 AdipoR1 处的 μM 和 3.1 通过放射性结合和 Scatchard 分析得出 AdipoR2 的 μM (AdipoRon 和其他脂联素受体激动剂作为癌症治疗的候选药物, 2021). 这些不是一个清晰的比较.
肽纯度规格和肽分析确认是问题的另一半. 没有命名方法的纯度地板不是规范, 并且一种技术无法将正确的序列与几乎相同的删除区分开. 求方法, 不仅仅是数字.
对于困难的序列, MOL Changes 支持超过的修改菜单 300 团体, 纯度等级从粗到 99%, 和 QC 涵盖 HPLC, 质谱, 肽含量, 抗衡离子含量和每批 CoA. 这是执行上述规范的一种有记录的方法, 不是唯一的一个. 知识库未公布内毒素限量值, 洁净室等级或每层杂质上限, 因此这些属于 CMC 检查清单而不是供应商索赔.
后续步骤
当您指定困难的环肽时,三个决定具有大部分解释权重: 明确地说明终止符而不是将其保留为默认值, 设置纯度下限并命名建立它的方法, 并再次确认产品, 正交技术而不是单一测定. 每一个都会改变弱或阴性结合结果的含义, 这就是为什么它们在合成开始之前属于规范, 不在事后分析中.
诚实的限制是,封锁终点站是一种交易, 不是安全的默认值. C 末端酰胺或乙酰化 N 末端可以稳定肽并简化操作, 但它也可以消除本机序列所依赖的相互作用. 如果您的检测正在探测末端敏感接触点, 堵塞的一端可能会抑制您要测量的信号. 慎重选择, 并记录原因.
如果您希望在提交规范之前再次关注该规范, 与 MOL Changes 的专家讨论规格审查事宜: 终点站, 修改清单, 纯度等级及其分析方法, 以及您计划运行的正交确认. MOL Changes 提供具有规定纯度等级的定制肽合成和包括 HPLC 在内的 QC 测试, 质谱和肽含量测定, 因此审查的范围可以针对实际应报告的内容.
披露: MOL Changes 提供定制肽合成和分析服务; 本文具有教育意义,规范审查作为服务提供.
常见问题解答
这种规范方法是否适用于较短或疏水性较低的肽?
大部分是的, 但风险较小. 设计逻辑, 在合成之前修复末端和修改,以便弱读数保持可解释性, 适用于任何序列. 变化就是风险: 短亲水肽聚集较少, 净化更可预测, 并容忍更宽的纯度带, 所以规格可以宽松一些. 149-166 程序需要紧密版本,因为 10 聚体具有游离 N 末端和 C 末端酰胺, 坐在疏水环环境中, 正是草率的规范将真实结果变成模糊结果的地方.
分析菜单需要花费多少时间和材料, 筛选级批次是否需要正交确认?
正交确认, 意味着第二种方法可以测量第一种方法无法测量的东西, 是筛选批次与应报告批次的区别. RP-HPLC 告诉您纯度; LC-MS 告诉您身份; 两者都不能单独捕获抗衡离子或序列错误. 用于早期筛查, 一次 HPLC 加上质量检查通常足以决定一个设计是否值得追求. 对于您打算发布或归档的任何内容, 预算氨基酸分析和抗衡离子测定的额外材料和周转时间, 因为未经身份确认的纯度数字不是证据.
程序在开始时会指定什么不同的内容?
循环上下文问题, 天然受体环受到完整蛋白质的限制,而分离的合成肽是可移动的, 只有在第一次读数弱于设计预测后才被理解. 预先知道这一点, 该程序将在一阶线性序列旁边指定一个受约束的模拟, 而不是将环化视为第二轮修复. 它还会在合成前修复纯度等级和正交 QC 面板, 因此第一批产生的是可解释的数据,而不是纯度数字,这提出的问题多于它回答的问题.
结论
AdipoR2 环肽研究是设计决策的一个案例, 不是生物学, 确定分析结果的解读意义. 149-166屏幕缩小了活动区域; ADP355 序列和 JT 系列更改显示了每个修改购买的内容及其成本; 纯度和分析记录决定弱结果或阴性结果是否反映了肽或样品. 这些是规格选择, 他们在任何检测运行之前设定解释上限.
这就是可转移的教训, 规格清单是值得保留的神器. 它适用于任何困难的环肽, 无论您是否下过订单: 修复终点站, 命名修改, 设置纯度等级, 并在您信任读数之前正交确认身份和内容.