変換は再設計です, アドオンではありません
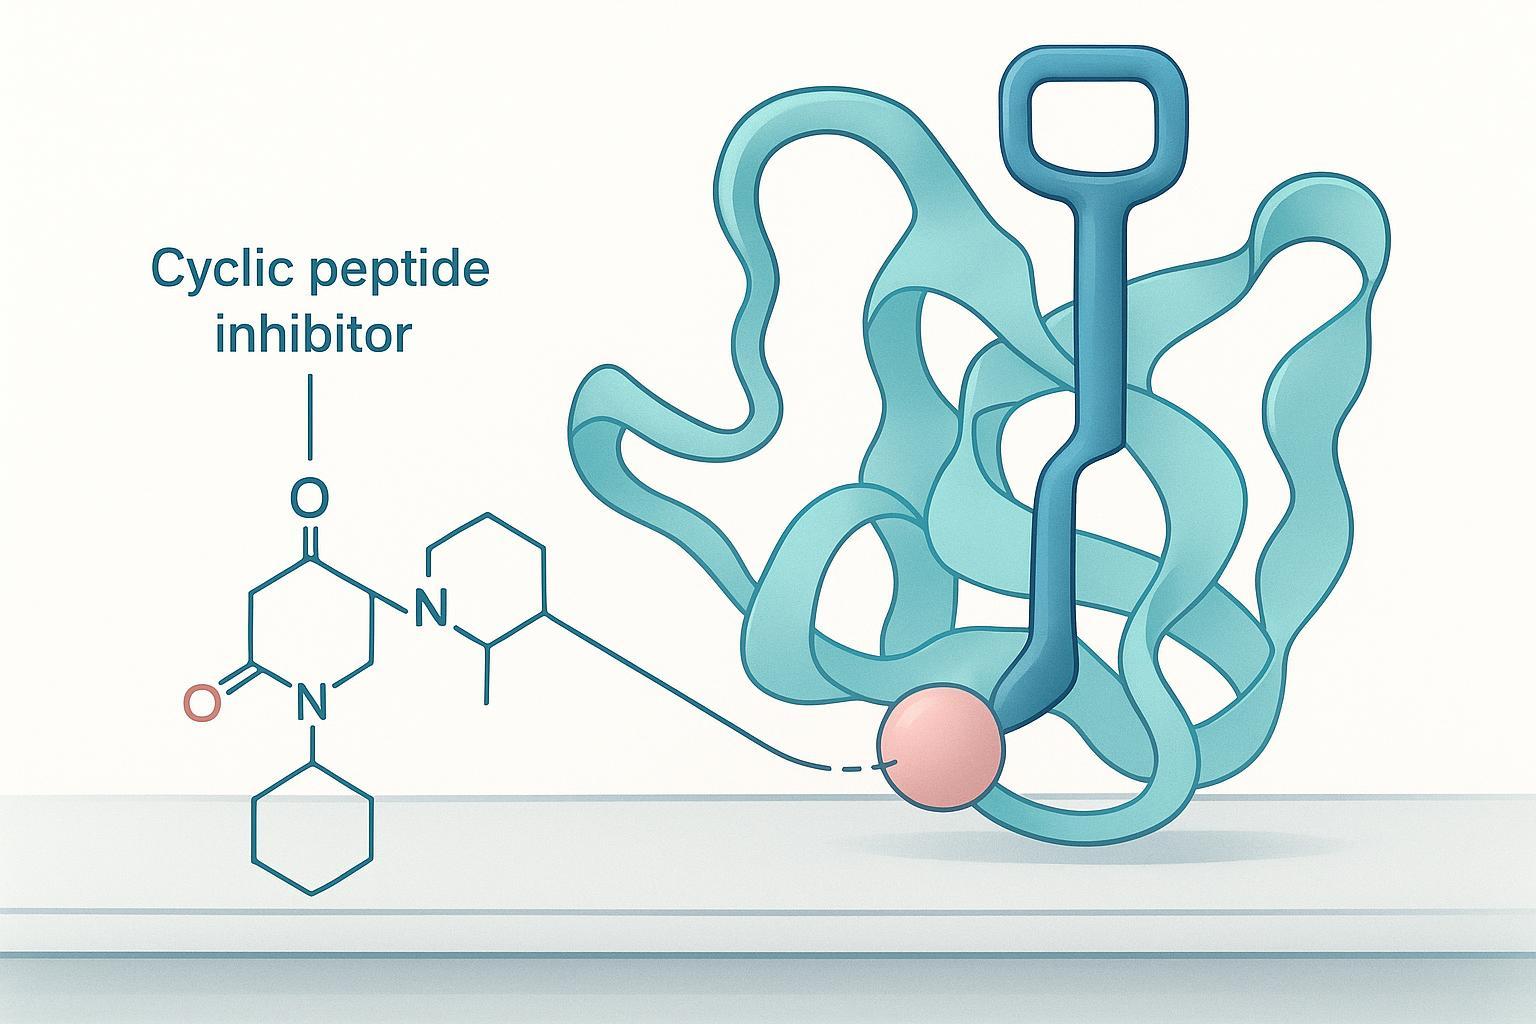
PAS-B ポケットを占有することで HIF-1α を阻害する環状ペプチドは、1 つのロックに適合するキーカットです. デグレーダーに変えるということは、そのキーにハンドルを溶接することを意味します: リンカーと VHL 採用要素, 新しいアームがリガーゼをリクルートするために手を伸ばしている間、リングがポケットに収まったままになるように配置されます。. 歯は変えられない. それ以外はすべてできる.
その違いがプロジェクト全体を推進します. アンカーケース内, リンカーと VHL リガンドはカスタムの二官能性アミノ酸として組み込まれ、固相ペプチド合成中に直接組み込まれます。, 環化後に結合するのではなく (ジャックス, 環状ペプチド PROTAC は低酸素状態における VHL 媒介 HIF-1α 分解を回復します, 2026). 実際的な結果として、取り付けポイントはチェーンの組み立て時に固定される設計上の選択になります。, 後でベンチで調整する変数ではありません.
下流でのあらゆる意思決定はそのコミットメントに基づいて行われます: どの勾配が共役を解決するか, どの立体構造チェックによりリングが生き残ったことが確認されるか, そして、どの分析が劣化と単なる占有を区別できるのか.
どの出口ベクターがリンカーを運ぶべきか?
結合部位の選択は、その後のすべての決定を制約する最初の決定です。, そしてそのルールを述べるのは簡単です: 結合を乱す可能性が最も低く、溶媒にさらされる可能性が最も高い位置を選択します。 (PROTAC リンカーの設計に関する現在の戦略, 2020). ターゲットに結合した環状ペプチドの共結晶構造が利用可能な場合, そのルールは検査によって答えられる. そうでないときは, 検査では問題を判断できない, そうでないふりをすることでプログラムは数か月を失うことになります.
サービス また、結合点は、ペプチドを最適化した後に後から追加する誘導体化ステップでもありません。. チェーンアセンブリの設計選択です, 合成が始まる前に修正される, アンカーケースのときと同じように. 後で気が変わるということは、ペプチドを再合成することを意味します, サイドチェーンを編集しない.
経験的なランキングルール: それぞれが保持するものによって候補ベクトルをランク付けする, この順序で: ターゲットアフィニティ, 次に三元複素数の動作, その後劣化. 溶剤にさらされているように見える位置の狭い SAR は警告です, 騒音ではありません. その位置は構造的に負荷がかかります, そしてランキングはやり直さなければならない.
リンカーと E3 エレメントのインストール
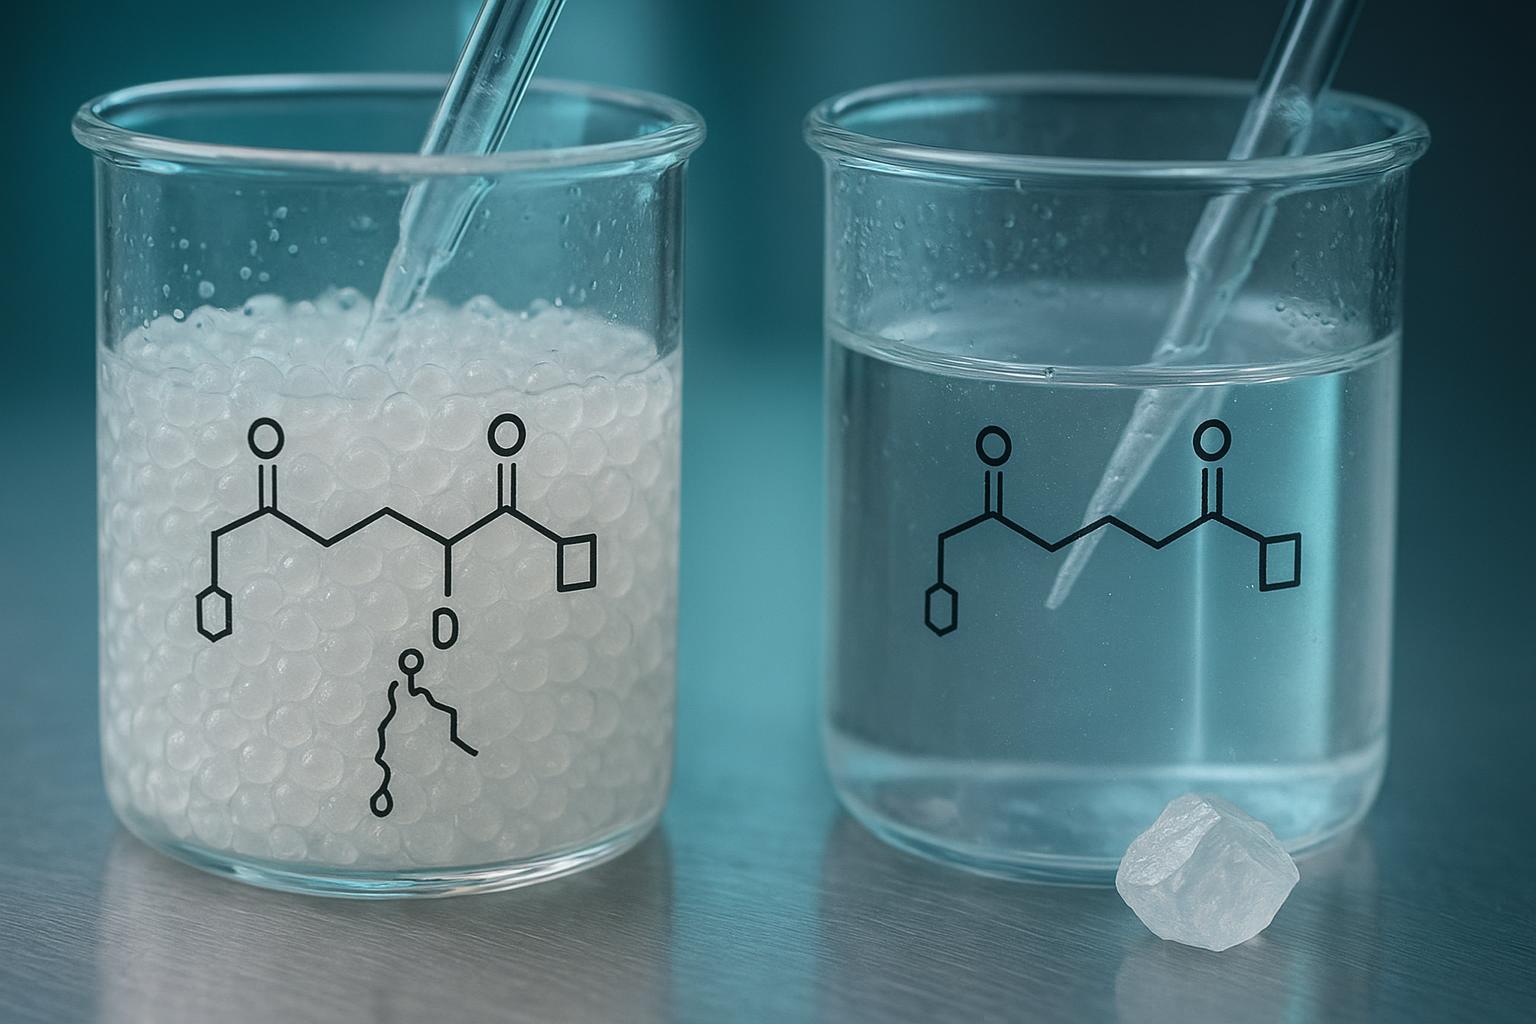
ルート決定が最優先, 樹脂上と溶液の結合が異なる場所で失敗するため. 二官能性アミノ酸を樹脂上に取り付けることで、リンカーが鎖自体に組み込まれます。, したがって、保護基スキームはリンカーの直交ハンドルをそのまま維持する必要があります。 店 その後のすべてのカップリングと環化ステップ. 環化後の溶液結合は反復がより速くなります, ただし、遊離ペプチドを活性化化学反応に 2 回曝露し、反応性残基が固有でない場合は位置異性体の混合物を精製する必要があります。.
サウサンプトンの研究は、その反復が何をもたらすかを示している. cyclo-CLLFVYから始まったシリーズは第2世代弾頭へ移行, シクロ-CLLF(CF3)もし(Br), 後から付加されるのではなく、配列に組み込まれたより長い非天然アミノ酸リンカーを運ぶ (マクダーモットら。, 2025). リンカーを鎖に組み込むことにより、リンカーの長さが精製の問題ではなく設計変数になります。.
このルートにおけるペプチドの純度とフォールディングに対する主な脅威はエピマー化であるため、これは重要です。, そしてそれは機械的に回避可能です. アミノ酸を活性化すると、α-炭素で一時的にアキラルになる平面状オキサゾロンが形成されます。, したがって、再プロトンは L を返すことができます。- またはD構成. アクティベーションの延長によりリスクが上昇, 高反応性カップリング試薬, 蓄積された活性化中間体, およびフェニルグリシンなどの残基, システインとヒスチジンは特に起こりやすい (バッヘム; ペプチド合成におけるエピマー化, 2023).
規模はルートによって異なります, あるベンダーの実現可能性に関する取り組みは、ベンチマークを設定するのではなく、その広がりを示しています: 大まかに生成されたフラグメントとルートの結合 13% エピマー形成のため中止された, 一方、代替ルートでは 2 ~ 3% のエピマー化が約 5% 浄化後, 線状 SPPS はエピマー化が検出されずに最高の収率を示しました (バッヘム). これを、どのルート クラスがリスクを伴うかについてのシグナルとして読み取ってください。, 独自のシーケンスで期待できる速度ではありません. について
RP-HPLC 純度データから何が分かるか、何が分からないか
単一のメインピークのパーセンテージ 214 nm は正しい共役も正しい折り畳みも確認しません. サンプル中の UV 吸収種が 1 つのグラジエント上の 1 つのバンドとして溶出することがわかります。. それは有益な事実です, そしてそれは、ほとんどのプログラムがそれを次のように扱うよりも小さな事実です。.
より大きなものについては、, より疎水性の高い複合体, このメソッドの分解能は、親環状ペプチドの場合よりも低くなります。. リンカーと E3 エレメントにより疎水性の表面積が追加されます, 保持時間が変化する, 親勾配でベースライン分離された種は共溶出し始めます. 公開されたジスルフィド環化ペプチド分解プログラムでは、その調製実践がわかりやすく報告されています。: 1 つの RP-HPLC ステップ 0.1% TFA 水/アセトニトリル グラジエントは 26 ~ 43% 以上実行 40 分 10 mL/分, での検出 220 nm, 酸化はHPLCと並行して質量分析計によって監視されます, 凍結乾燥前の最終 HPLC 品質チェック (免疫学のフロンティア, 2023). その論文に記載されていないことに注意してください: 任意の純度閾値. 数値はプロセス出力です, 仕様ではありません.
サプライヤーは通常、生物学的評価の下限として RP-HPLC 純度 95% 以上を指定します。, 定量的結合および用量反応研究では ≥98%, 参照標準作業の場合は ≥99%, 純度は 214 ~ 220 nm の UV 検出による総ピーク面積に対するメインピーク面積として定義されます。 (ジェンスクリプト; 創造的なプロテオミクス, 2025). これらのバンドは、分子に関する測定結果ではなく、購入慣例として扱います。. ベンダーが何を認証するかを説明します, 共役が必要とするものではありません.
ペプチドの純度とフォールディングは別の問題であるため、ギャップは重要です, RP-HPLC は最初の応答のみに応答します. 共溶出するエピマー, ミスフォールドされたジスルフィド異性体, または、たまたま同じ保持時間で実行された未反応の親がすべてきれいな単一ピークとして存在します。. 大衆のアイデンティティ, 立体化学, と溶液の立体構造にはそれぞれ直交法が必要です.
カバレッジチェックとしてマトリックスを読む, ランキングではありません. RP-HPLC は疎水性と純度をカバーします. LC-MS および HRMS は質量の同一性をカバーします, これはリンカが実際にインストールされていることを確認する方法です. キラル LC は立体化学をカバーします, これが共役部位でエピマー化を捉える方法です. NMRおよびCDカバー溶液の立体構造, これが折り畳まれた共役と折り畳まれていない共役を区別する方法です. 単一の行が複数の列をカバーすることはありません, 最初の行のみを報告するプログラムには、4 つの質問のうち 1 つについて正確に証拠があります。.
結合部位選択の実際的な結果: 分析パッケージが 1 つの RP-HPLC トレースの場合, 選択した出口ベクトルが設計した結合体を生成したかどうかはまだわかりません. ルートをコミットする前に直交メソッドを追加します, 結合アッセイがフラットに戻った後ではない.
折り曲げと立体構造の検証
ペプチド合成 環化はバックボーンを拘束する, ただし、生理活性構造がリンカーの付加後に存続することを保証するものではありません。. この区別が、構造的証拠が純粋な証拠と直交しなければならない理由です: 各メソッド クラスが他のメソッド クラスでは答えられない質問に答えます.
キラル LC は立体化学を解決します, したがって、結合体が関心のある残基でラセミ化したかどうかがわかります. CD は溶液の二次構造をレポートします。, NMR は結合した折り目を定義する特定の接触について報告します。. これらはどれも他のものに代わるものではありません, そしてそれらはどれも機能的な読み出しの代わりにはなりません. 同じ原則がアッセイ段階にも適用されます: 3 進複素信号だけでは不十分です, 細胞の DC50/Dmax 値のみは、機構的なものではなく表現型的なものです。 (分子機構を研究し、分解剤の設計を推進する方法, 取得した 2026-05-14).
重要なポイント: 高い HPLC 純度は正しいコンジュゲートではありません. クリーンで質量が確認されたピークであっても、アッセイ段階に間違ったフォールドが持ち込まれる可能性があります。.
データパッケージの場合, そのギャップを埋めるにはリスクがある. 純度と質量の同一性は合格するが、立体構造のチェックが行われていない複合体には、定量化されていないリスクが伴います。, そしてアッセイチームはそれを継承します. ペプチドの純度とフォールディングを 2 つの別個の証拠ラインとして扱う, それぞれに独自の方法と独自の許容基準があります, 物質が生物学に放出される前に.
機能アッセイの証拠チェーン
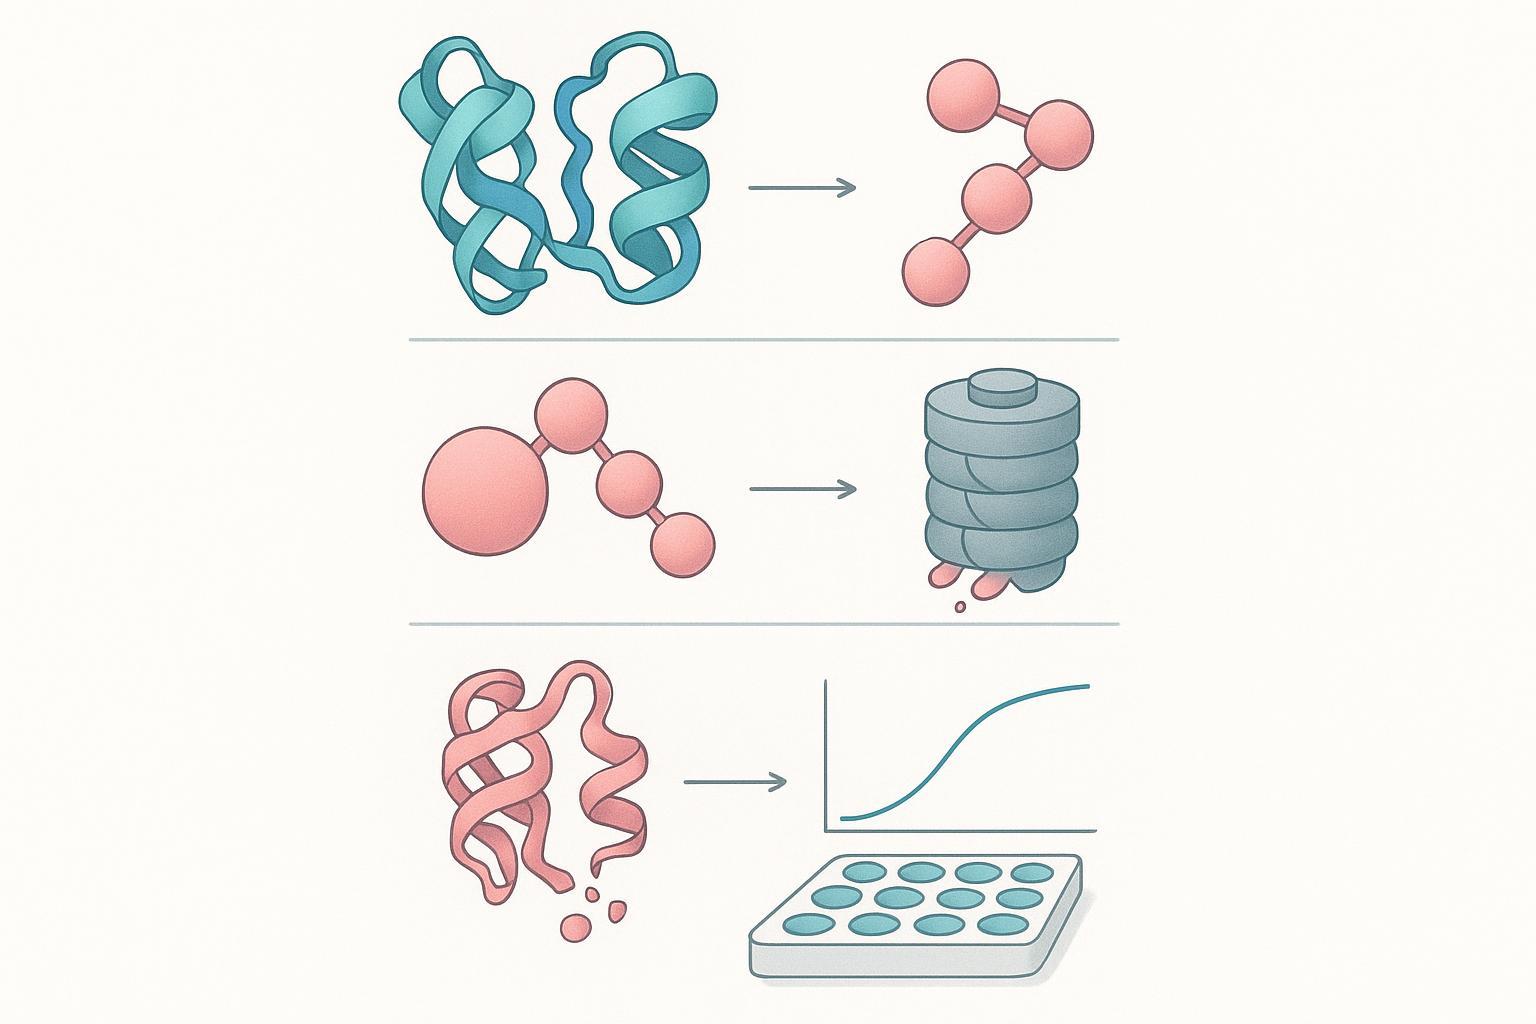
劣化クレームはメカニズムクレームです, そして単一のアッセイではそれを実現できない. 証拠チェーンには 4 つのリンクがあります, レビュー担当者は 4 つすべてを探します: 三元錯体形成, 標的ユビキチン化, プロテアソーム依存性, 定量的な効力と上限値の読み出し. 最初のリンクの後でパッケージが停止した場合, あなたは拘束力を示しました, 劣化ではない.
自分のデータに対してチェーンを下流に向かって作業する. 三元複合体: 標的を示す共結晶または生物物理学的アッセイ, PROTAC と E3 リガーゼを 1 つのアセンブリに統合. ユビキチン化: 標的自体がユビキチンを獲得するという直接的または間接的な読み取り. プロテアソーム依存性: プロテアソーム阻害剤による救済. 威力と上限: 同じ用量反応系列からの DC50 と Dmax.
3 番目のリンクは最も頻繁にスキップされるリンクです, そして閉店価格も安い. 環状ペプチドの研究において, PD-L1 損失 2.5 μM後 4 時間はMG132によってブロックされました, これが分解と下流の転写効果を分けるものです (免疫学のフロンティア, 2023). ターゲットのエンゲージメントも同じ方法で示すことができます: 細胞サーマルシフトアッセイにより DHHC3 が移動 49 未処理細胞では °C ~ 55 ペプチド処理細胞の℃, 分解が測定される前に化合物がタンパク質に到達するという証拠 (免疫学のフロンティア, 2023).
このグラフは、E3 要素を後付けではなく設計変数として扱うための、この記事の中で定量化された最も強力な議論です。. CRBN を VHL に交換, 同じ弾頭の化学的性質を持つ, DC50をから移動しました 0.103 μMから 1.92 μM, そしてIAPアームは 7.530 μM (細胞死 & 病気, 2024). 同じ細胞アッセイにおいて最良のアームと最悪のアームはほぼ 2 桁違います.
今、ギャップ. 同じシリーズは DC50 値を報告しますが、Dmax は報告しません, したがって、効力は腕全体で同等ですが、分解の上限はありません (細胞死 & 病気, 2024). 化合物は強力でありながら、ターゲットのほとんどを放置することができます. 化学から生物学に荷物を渡すとき, 完全な用量反応曲線を求める, 単一の数字ではありません: 機能アッセイのサポートは曲線を意味します, レスキューコントロール, エンゲージメントアッセイを一緒に行う, それは、査読者が HIF-1α 分解やその他のターゲットについて求めることだからです。.
アンカーケースの酸素状態の限界
アンカー環状ペプチド PROTAC は、VHL 媒介 HIF-1α 分解を強力に回復します。 3% O₂, そして、次の時点では正味の劣化は見られません。 1% O₂. それは効力の失敗ではありません. 報告された条件下では、デグレーダーは関与を継続します- そして分解能力がある 1% O₂, しかし、ターゲットの再合成はクリアランスを上回ります, したがって、定常状態のプールは決して低下しません (ジャックス, 環状ペプチド PROTAC は低酸素状態における VHL 媒介 HIF-1α 分解を回復します, 2026).
脚注ではなく設計ルールとして読んでください。: 分解の読み取り値は、同じ細胞コンテキスト内のターゲットの再合成速度に対してのみ解釈可能です。. ある酸素分圧で測定された DC50 は、別の酸素分圧には反映されません。, あなたが測定した数値はネット残高だから, クリアランス定数ではない.
公開されている DC50 と複合体を比較する前に, 酸素分圧を確認する, 細胞株, および同じ条件下でのターゲットの再合成挙動.
プログラムに時間を費やすよくある誤解
環状ペプチド PROTAC 設計プログラムにおける損失時間のほとんどは 4 つの決定エラーによるものです. それぞれは、プログラムが実際に回答する必要がある質問をより安価な測定値で置き換えます。.
HPLC 純度が高いと正しいコンジュゲートではない. 単一の鋭いピーク 95% 1 つの検出方法で材料が均一であることがわかります. リンカーが意図した残基上にあることはわかりません, 立体化学が共役しても生き残ったこと, または E3 リガンドが無傷であること. 修正は直交特性評価です: 質量確認用LC-MS, そして、結合体をその位置異性体から分離する第二のクロマトグラフィーまたは分光学的方法.
保持されたターゲット結合は分解されません. 結合アッセイにより占有率が報告される. 分解にはユビキチン化が必要です, プロテアソームの関与と標的の喪失, バインディングの読み出しではどれも検出されない. 修正はバインディングをゲートとして扱うことです, エンドポイントではない, 分解を主張する前に標的タンパク質の定量化を要求すること.
生物物理学的アッセイにおける三元複合体は細胞分解ではありません. 三元複合体の形成は必要ですが十分ではありません; 安定した複合体でもユビキチン化に失敗する可能性がある. 解決策は、このクレームを細胞に導入し、標的タンパク質のレベルを直接測定することです。.
Dmax のない DC50 は部分的な効力の全体像です. 効力と範囲は別のプロパティです, そして分解する化合物 40% 飽和時のターゲットの目標を達成する命題とは別の命題です。 90%. 解決策は両方を報告することです, いつも, 同じ用量反応系列から.
変換のための意思決定の枠組み
独自のプログラムに対してこれら 5 つのチェックを順番に実行します。. それぞれに障害モードが付加されています, そして、それぞれを次の前に修正する方が安価です.
-
経験的に出口ベクトル候補をランク付けする, 検査によるものではない. 2 つまたは 3 つの異なる位置でリンカーを使用して同じ環状阻害剤を発現します, ターゲット結合アッセイを通じて複合体シリーズを実行する, そして順位に従って勝者を決めましょう. 故障モード: モデル上で最もアクセスしやすいと思われるベクトルを選択し、スケールアップ後にバインディングがなくなっていることを発見する.
-
リンカーをコミットする前にルートを決定する. 樹脂上と溶液の結合により、エピマー化のリスクがどの程度あるかが決まります, したがって、遅延最適化ではなくルート決定として扱います。. 故障モード: きれいに精製するが、結合データが依存していた立体化学を失った結合体.
-
浄化する, 次に直交的に特徴付けます. RP-HPLC の純度と質量の確認でさまざまな質問に答えます, そして誰も構造について報告していない. 故障モード: 単一メソッドのリリース基準で、ミスフォールドされたバッチを合格する.
-
アッセイ予算を費やす前にフォールディングを検証する. 円二色性, NMR, または、構造感受性結合の読み出しにより、複合体が依然として意図した立体構造を占めていることが確認されます。.
-
分解を主張する前にアッセイチェーンを構築する. 三元複合体形成, ターゲットエンゲージメント, 合成ペプチド と劣化の読み出しは 3 つの別個のクレームです, バイナリ バインディングの結果は最初のバインディングのみをサポートします。.
重要なポイント: 立体配座検証はプログラムが最も頻繁に省略する項目です. 純度データや質量確認では、複合体が正しく折りたたまれたかどうかを判断することはできません, そのため、バッチはすべての分析ゲートを通過しても機能的に失敗する可能性があります。.
単一のステップよりも順序が重要です: ベクターを最初にランク付けし、アッセイ作業前に立体構造を検証するプログラムにより、すでに特徴付けられた結合体の再合成が回避されます。.
次のステップ
環状ペプチド PROTAC 設計プログラムがロードマップにある場合, 有益な次の行動は、購入の決定ではなく、スコープに関する会話です. 3つのものを持っていきましょう: アンカー配列と構造データ, あなたが選択した出口ベクトル、またはあなたが比較検討している候補, チームが劣化の証拠として受け入れるアッセイ結果. これら 3 つの入力により、変換が単純なリンカーのインストールであるか、新しい化学反応を必要とする再設計であるかが決まります。.
合成および特性評価パートナーを必要とするチーム向け, MOL は固相および微生物発酵合成全体にわたる能力を変更します, 制御された環境の浄化, HPLC/MS および無菌 QC, mgからkgへのスケール. コンジュゲートプログラムが分析スケールの材料から機能アッセイシリーズに必要な量に移行する場合、その範囲が最も重要になります。. ペプチドの生産
重要なポイント: ここで説明するコンストラクトは研究用試薬です. 臨床翻訳には独立した検証が必要です, このガイドのいかなる内容も、あなた自身の分析的および生物学的確認に代わるものではありません。.
開示: 著者の組織は、この記事で説明した種類のペプチド合成および特性評価サービスを提供しています.
カスタム複合プログラムについて話し合う. アンカー シーケンスを共有する, ターゲット出口ベクターと必要なアッセイエンドポイント, 分析文書パッケージをリクエストしてください (純度法, 勾配, MS確認と折り畳みデータ) スコーピングコールと並行して. プログラムのディスカッションを開始する.
よくある質問
ターゲットに結合した環状ペプチドの共結晶構造が存在しない場合はどうすればよいですか?
構造を待つのではなく、候補となる取り付け位置を経験的にランク付けします. 各候補残基にリンカーを付けてペプチドを発現させる, その後、順番に測定します: 保存されたターゲットの親和性, E3リガーゼによる三元複合体形成, そして細胞の分解. 置換を許容する位置は親和性を維持します; そうでない人は失格です. 候補位置における狭い構造活性関係を停止信号として扱う, 出口ベクトルはおそらくバインディング インターフェイスに埋め込まれているためです。.
環状ペプチドには常にリンカーが長い方が優れています PROTAC?
いいえ. リンカーの長さと組成により三元錯体の幾何学構造が変化する, そしてその幾何学形状が両方向の効力を促進します. よく引用されるのは 5-15 アトム ウィンドウは、この実行でプライマリ ページを読み取れなかったセカンダリ リキャップから取得されます。, したがって、特定の範囲を小さなシリーズ全体でテストするための開始仮説として扱います。, 設計に基づいた仕様ではない.
分析データ上でエピマー化と折り畳み問題を区別するにはどうすればよいですか??
直交手法を使用する, 単一の RP-HPLC メイン ピークでは 2 つの故障モードを分離できないためです。. キラル LC または NMR は影響を受けた残基の立体化学を解析します; 溶液の立体構造に関する円二色性と NMR レポート. エピマー化はベンダーの話題というよりも共役化学の既知の危険性です, したがって、ペプチドの純度とフォールディングの両方が許容範囲に見える場合でも、活性は依然として低下します。, リンカーを再設計する前に立体化学チェックを実行します。.
阻害ではなく分解を主張するために設定された最小アッセイは何ですか?
4つの測定: 三元錯体形成, 標的ユビキチン化, MG132型レスキューによりプロテアソーム依存性が確認, および用量反応曲線からの定量的な DC50 および Dmax. 三元錯体だけでは不十分, ユビキチン化転移を伴わない結合は分解について何も証明しないため. DC50 と Dmax のみが表現型です: 彼らは、プロテアソームがそれを引き起こしたことを示さずに、ターゲットが消滅したことを示しています. セットをまとめてレポートする, それぞれの細胞株と時点を記載します.