Konverteringen er et redesign, ikke en tilføjelse
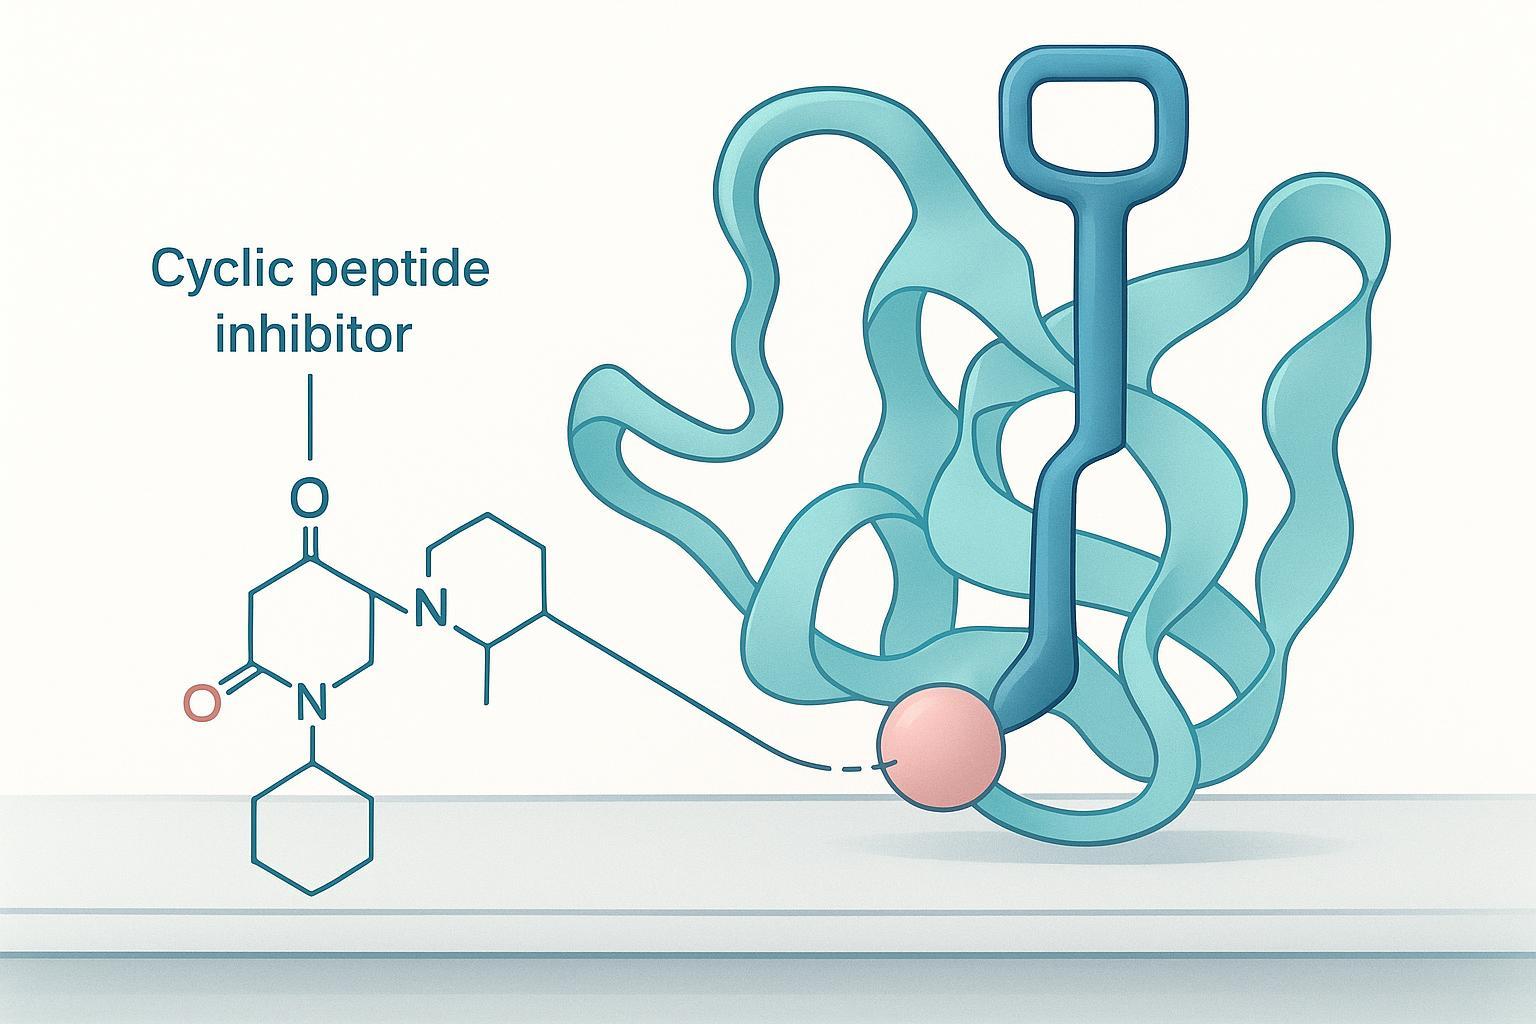
Et cyklisk peptid, der hæmmer HIF-1α ved at optage PAS-B-lommen, er et nøglesnit, der passer til én lås. At gøre det til en nedbryder betyder at svejse et håndtag på den nøgle: en linker plus et VHL-rekrutterende element, placeret, så ringen stadig sidder i lommen, mens den nye arm rækker ud for at rekruttere ligasen. Tænderne kan ikke ændre sig. Alt andet kan.
Den skelnen driver hele projektet. I ankerkassen, linkeren og VHL-liganden blev indbygget som en tilpasset bifunktionel aminosyre og inkorporeret direkte under fastfase peptidsyntese, snarere end at blive knyttet efter cyklisering (JACKS, Cykliske peptid-PROTAC'er genopretter VHL-medieret HIF-1α-nedbrydning ved hypoxi, 2026). Den praktiske konsekvens er, at fastgørelsespunktet bliver et designvalg, der er fastlagt på kædemonteringstidspunktet, ikke en variabel, du tuner senere ved bænken.
Enhver downstream-beslutning følger af denne forpligtelse: hvilken gradient løser konjugatet, hvilket konformationstjek bekræfter, at ringen overlevede, og hvilken analyse der kan skelne nedbrydning fra ren belægning.
Hvilken udgangsvektor skal bære linkeren?
Valg af konjugeringssted er den første beslutning, der begrænser hver senere, og reglen er enkel at angive: vælg den position, der er mindst tilbøjelig til at forstyrre binding og mest sandsynligt at blive eksponeret for opløsningsmiddel (Nuværende strategier til design af PROTAC-linkere, 2020). Når en co-krystalstruktur af dit cykliske peptid bundet til målet er tilgængelig, denne regel er ansvarlig ved inspektion. Når det ikke er det, inspektion kan ikke afgøre spørgsmålet, og at lade som om andet er, hvordan programmer taber måneder.
Tjenester Vedhæftningspunktet er heller ikke et derivatiseringstrin, du bolter på efter peptidet er optimeret. Det er et designvalg for kædesamling, fast, før syntesen begynder, som det var i ankerkassen. At ændre mening senere betyder at resyntetisere peptidet, ikke redigere en sidekæde.
Den empiriske rangordningsregel: rangordne kandidatvektorer efter, hvad hver enkelt bevarer, i denne rækkefølge: målaffinitet, derefter ternær-kompleks adfærd, derefter nedbrydning. En smal SAR ved en position, der så ud til at være opløsningsmiddeleksponeret, er en advarsel, ikke støj. Den position er konformationsmæssigt bærende, og ranglisten skal laves om.
Installation af linkeren og E3-elementet
Rutebeslutningen kommer først, fordi on-resin og opløsningskonjugering mislykkes forskellige steder. On-resin installation af en bifunktionel aminosyre bygger linkeren ind i selve kæden, så beskyttelsesgruppeskemaet skal holde linkerens ortogonale håndtag intakt igennem Butik hver efterfølgende kobling og ringslutningstrinnet. Opløsningskonjugering efter ringslutning er hurtigere at iterere, men det udsætter det frie peptid for aktiveringskemi to gange og efterlader dig oprensende en blanding af positionelle isomerer, hvis den reaktive rest ikke er unik.
Southampton-værket viser, hvad den iteration køber. Serien, der begyndte med cyclo-CLLFVY, flyttede til et andengenerations sprænghoved, cyclo-CLLF(CF3)HVIS(Br), bærer længere unaturlige aminosyrelinkere indbygget i sekvensen i stedet for at blive tilføjet bagefter (McDermott et al., 2025). At bygge linkeren ind i kæden er det, der gør linkerlængden til en designvariabel i stedet for et oprensningsproblem.
Det betyder noget, fordi den største trussel mod peptidets renhed og foldning på denne rute er epimerisering, og det er mekanisk undgået. Aktivering af en aminosyre danner en plan oxazolon, der midlertidigt er akiral ved α-carbonet, så reprotonering kan returnere enten L- eller D-konfigurationen. Risikostigninger med udvidet aktivering, højreaktive koblingsreagenser, og akkumuleret aktiveret mellemprodukt, og rester såsom phenylglycin, cystein og histidin er særligt udsatte (Bachem; Epimerisering i peptidsyntese, 2023).
Størrelsen er ruteafhængig, og en leverandørs gennemførlighedsarbejde illustrerer spredningen i stedet for at sætte et benchmark: fragment-rute konjugation produceret groft 13% epimer dannelse og blev afbrudt, mens den alternative rute viste 2-3% epimerisering, der steg til ca 5% efter oprensning, og lineær SPPS gav det højeste udbytte uden påvist epimerisering (Bachem). Læs det som et signal om, hvilke ruteklasser der bærer risikoen, ikke som en sats, du kan forvente på din egen sekvens. Om
Hvad RP-HPLC-renhedsdata kan og ikke kan fortælle dig
En enkelt hovedpeak-procent kl 214 nm bekræfter hverken korrekt konjugation eller korrekt foldning. Det fortæller dig, at de UV-absorberende arter i din prøve eluerer som ét bånd på én gradient. Det er et nyttigt faktum, og det er et mindre faktum, end de fleste programmer behandler det som.
Til en større, mere hydrofobt konjugat, metoden løser mindre end den gjorde for det cykliske moderpeptid. Linkeren og E3-elementet tilføjer hydrofobt overfladeareal, retentionstiden skifter, og arter, der var baseline-separeret på modergradienten, begynder at co-eluere. Et offentliggjort disulfid-cykliseret peptidnedbryderprogram rapporterer dets forberedende praksis tydeligt: et RP-HPLC-trin på en 0.1% TFA vand/acetonitril gradient løber 26–43 % over 40 minutter kl 10 ml/min, opdagelse kl 220 nm, oxidation overvåget ved massespektrometri sammen med HPLC, og en sidste HPLC-kvalitetskontrol før lyofilisering (Grænser i immunologi, 2023). Bemærk, hvad der ikke står i papiret: enhver renhedsgrænse. Nummeret er et procesoutput, ikke en specifikation.
Leverandører angiver almindeligvis ≥95 % RP-HPLC-renhed som gulv for biologisk evaluering, ≥98 % for kvantitativ binding og dosis-respons arbejde, og ≥99 % for referencestandardarbejde, med renhed defineret som hovedspidsareal over total spidsareal ved UV-detektion ved 214–220 nm (GenScript; Kreativ proteomik, 2025). Behandl disse bånd som købskonvention snarere end et målt fund om dit molekyle. De beskriver, hvad en leverandør vil attestere, ikke hvad dit konjugat har brug for.
Gabet betyder noget, fordi peptidrenhed og foldning er forskellige spørgsmål, og RP-HPLC besvarer kun det første. En co-eluerende epimer, en fejlfoldet disulfidisomer, eller en ikke-reageret forælder, der tilfældigvis kører på samme opholdstid, alle til stede som en ren enkelt top. Masse identitet, stereokemi, og løsningskonformation kræver hver en ortogonal metode.
Læs matricen som et dækningstjek, ikke en placering. RP-HPLC dækker over hydrofobicitet og renhed. LC-MS og HRMS dækker over masseidentitet, hvilket er, hvordan du bekræfter, at linkeren faktisk er installeret. Chiral LC dækker over stereokemi, det er sådan, du fanger epimerisering på konjugationsstedet. NMR- og CD-dækselopløsningskonformation, hvilket er, hvordan du skelner et foldet konjugat fra et udfoldet. Ingen enkelt række dækker mere end én kolonne, og et program, der kun rapporterer den første række, har bevis for præcis et af fire spørgsmål.
Den praktiske konsekvens for valg af konjugationssted: hvis din analytiske pakke er ét RP-HPLC-spor, du kan endnu ikke se, om den exitvektor, du valgte, producerede det konjugat, du designede. Tilføj de ortogonale metoder, før du forpligter ruten, ikke efter en bindingsanalyse kommer fladt tilbage.
Foldning og konformationsverifikation
Peptidsyntese Cyclisering begrænser rygraden, men det garanterer ikke, at den bioaktive konformation overlever linkertilsætning. Denne sondring er grunden til, at konformationelle beviser skal være ortogonale i forhold til renhedsbeviser: hver metodeklasse besvarer et spørgsmål, de andre ikke kan.
Chiral LC løser stereokemi, så det fortæller dig, om konjugatet racemiserede ved de rester, du holder af. CD rapporter om løsningens sekundære struktur, og NMR rapporterer om de specifikke kontakter, der definerer den bundne fold. Ingen af disse erstatter en anden, og ingen af dem erstatter en funktionel udlæsning. Det samme princip styrer analysestadiet: et ternært-kompleks signal alene er utilstrækkeligt, og cellulære DC50/Dmax-værdier alene er fænotypiske snarere end mekanistiske (Metoder til at studere den molekylære mekanisme og drive design af nedbrydere, hentet 2026-05-14).
Nøgle takeaway: Høj HPLC-renhed er ikke korrekt konjugat. En top, der er ren og massebekræftet, kan stadig bære den forkerte fold ind i analysestadiet.
Til din datapakke, det hul er risikoen for at lukke. Et konjugat, der passerer renhed og masseidentitet, men som aldrig blev konformationelt kontrolleret, bærer en ukvantificeret risiko fremad, og analyseteamet arver det. Behandl peptidets renhed og foldning som to separate bevislinjer, hver med sin egen metode og sit eget acceptkriterium, før materialet frigives til biologi.
Den funktionelle assay-beviskæde
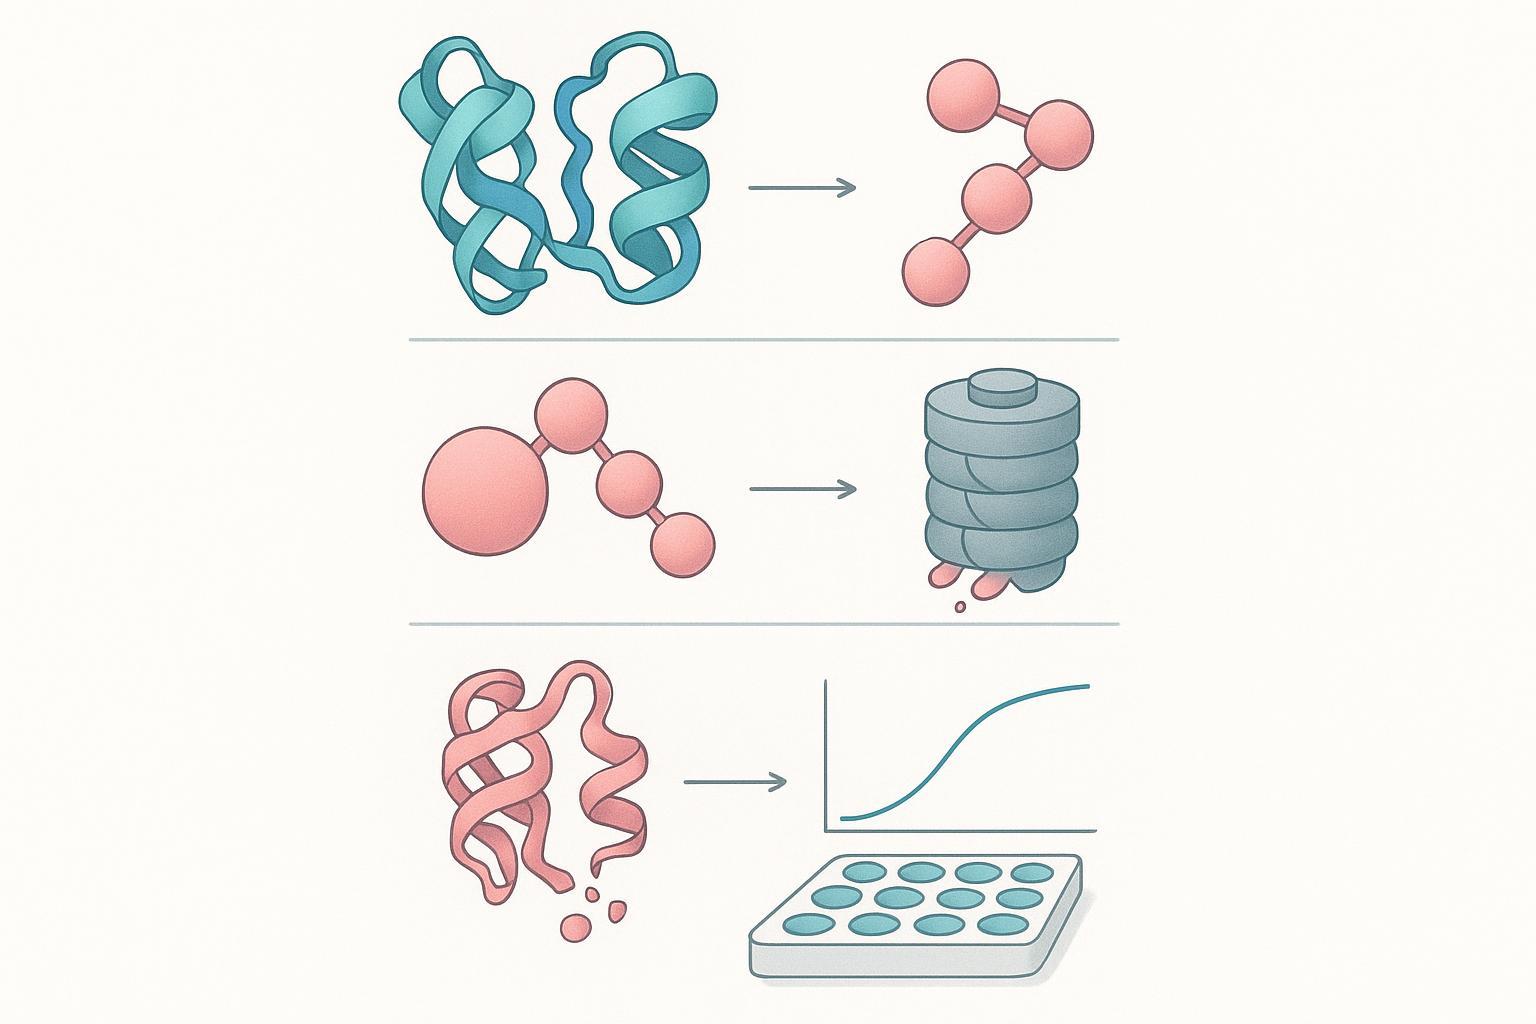
En forringelsespåstand er en mekanismepåstand, og ingen enkelt assay bærer det. Beviskæden har fire led, og en anmelder vil lede efter alle fire: ternær kompleksdannelse, mål ubiquitination, proteasomal afhængighed, og en kvantitativ styrke- og loftudlæsning. Hvis din pakke stopper efter det første link, du har vist binding, ikke nedbrydning.
Arbejd ned i kæden mod dine egne data. Ternær kompleks: en co-krystal eller et biofysisk assay, der viser mål, PROTAC og E3 ligase i én samling. Ubiquitination: en direkte eller indirekte udlæsning af, at målet selv erhverver ubiquitin. Proteasomal afhængighed: redning af en proteasomhæmmer. Potens og loft: DC50 og Dmax fra samme dosis-respons serie.
Det tredje link er det der oftest springes over, og det er billigt at lukke. I det cykliske peptid arbejde, PD-L1 tab kl 2.5 µM efter 4 timer blev blokeret af MG132, hvilket er det, der adskiller nedbrydning fra en nedstrøms transkriptionel effekt (Grænser i immunologi, 2023). Målengagement kan vises på samme måde: cellulære termiske skift-assays flyttede DHHC3 fra 49 °C i ubehandlede celler til 55 °C i peptidbehandlede celler, bevis for, at forbindelsen når proteinet, før nogen nedbrydning måles (Grænser i immunologi, 2023).
Dette diagram er det stærkeste kvantificerede argument i denne artikel for at behandle E3-elementet som en designvariabel snarere end en eftertanke. Bytte CRBN til VHL, med samme sprænghovedkemi, flyttet DC50 fra 0.103 µM til 1.92 µM, og IAP-armen til 7.530 µM (Celledød & Sygdom, 2024). Næsten to størrelsesordener adskiller den bedste og den værste arm i det samme cellulære assay.
Nu gabet. Samme serie rapporterer DC50-værdier, men ingen Dmax, så styrken er sammenlignelig på tværs af arme, mens nedbrydningsloftet ikke er det (Celledød & Sygdom, 2024). En forbindelse kan være potent og stadig lade det meste af målet stå. Når du afleverer en pakke fra kemi til biologi, bede om den fulde dosis-respons-kurve, ikke det enkelte tal: funktionel assay støtte betyder kurven, redningskontrollen, og engagementsanalysen sammen, fordi det er, hvad en anmelder vil bede om ved HIF-1α-nedbrydning eller ethvert andet mål, du tager videre.
Ilttilstandsgrænsen på ankerhuset
Det ankercykliske peptid PROTAC genopretter VHL-medieret HIF-1α-nedbrydning robust ved 3% O2, og viser ingen nettonedbrydning kl 1% O2. Det er ikke en styrkesvigt. Under de rapporterede forhold forbliver nedbryderen engagement- og nedbrydningskompetent ved 1% O2, men målets resyntese overgår clearance, så steady-state-puljen falder aldrig (JACKS, Cykliske peptid-PROTAC'er genopretter VHL-medieret HIF-1α-nedbrydning ved hypoxi, 2026).
Læs det som en designregel i stedet for en fodnote: en nedbrydningsaflæsning kan kun fortolkes i forhold til målets resyntesehastighed i den samme cellulære kontekst. En DC50 målt ved en iltspænding overføres ikke til en anden, fordi det tal du målte er en nettosaldo, ikke en frigangskonstant.
Før du sammenligner dit konjugat med en offentliggjort DC50, bekræfte iltspændingen, cellelinjen, og målets resynteseadfærd under den samme betingelse.
Almindelige misforståelser, der koster programmer tid
Fire beslutningsfejl tegner sig for det meste af den tabte tid i et cyklisk peptid PROTAC designprogram. Hver enkelt erstatter en billigere måling med det spørgsmål, programmet faktisk skal besvare.
Høj HPLC-renhed er ikke et korrekt konjugat. En enkelt skarp top kl 95% fortæller dig, at materialet er homogent ved én detektionsmetode. Det fortæller dig ikke, at linkeren sidder på den tilsigtede rest, at stereokemien overlevede konjugering, eller at E3-liganden er intakt. Rettelsen er ortogonal karakterisering: LC-MS til massebekræftelse, og en anden kromatografisk eller spektroskopisk metode, der adskiller konjugatet fra dets positionelle isomerer.
Opretholdt målbinding opnås ikke nedbrydning. En bindende analyse rapporterer belægning. Nedbrydning kræver ubiquitination, proteasomalt engagement og måltab, ingen af dem registrerer en bindingsudlæsning. Retten er at behandle binding som en låge, ikke et slutpunkt, og at kræve målprotein-kvantificering før påstand om nedbrydning.
Et ternært kompleks i et biofysisk assay er ikke cellulær nedbrydning. Ternær kompleksdannelse er nødvendig, men ikke tilstrækkelig; et stabilt kompleks kan stadig undlade at blive allestedsnærværende. Rettelsen er at føre påstanden ind i celler og måle målproteinniveauer direkte.
En DC50 uden Dmax er et delvist styrkebillede. Styrke og omfang er separate egenskaber, og en forbindelse, der nedbrydes 40% af målet ved mætning er et andet forslag end et, der rydder 90%. Rettelsen er at rapportere begge dele, altid, fra den samme dosis-respons-serie.
En beslutningsramme for konverteringen
Kør disse fem kontroller i rækkefølge mod dit eget program. Hver enkelt har en fejltilstand tilknyttet, og hver enkelt er billigere at reparere før den næste.
-
Ranger kandidatudgangsvektorer empirisk, ikke ved inspektion. Udtryk den samme cykliske inhibitor med linkeren i to eller tre forskellige positioner, køre konjugatserien gennem målbindingsassayet, og lad rækkefølgen vælge vinderen. Fejltilstand: at vælge den vektor, der ser mest tilgængelig ud på modellen og opdage efter opskalering, at bindingen er væk.
-
Bestem ruten, før du begår linkeren. Konjugering på resin versus opløsning bestemmer, hvor meget epimeriseringsrisiko du bærer, så behandle det som en rutebeslutning snarere end en sen optimering. Fejltilstand: et konjugat, der renser rent, men som har mistet den stereokemi, bindingsdataene afhang af.
-
Rens, derefter karakterisere ortogonalt. RP-HPLC renhed og massebekræftelse besvarer forskellige spørgsmål, og ingen af dem rapporterer om kropsbygning. Fejltilstand: et enkelt-metode frigivelseskriterium, der passerer en forkert foldet batch.
-
Bekræft foldningen, før du bruger analysebudgettet. Cirkulær dikroisme, NMR, eller en strukturfølsom bindingsudlæsning bekræfter, at konjugatet stadig optager den tilsigtede konformation.
-
Byg assaykæden, før du hævder nedbrydning. Ternær kompleks dannelse, mål engagement, Syntetiske peptider og en degraderingsudlæsning er tre separate krav, og et binært bindingsresultat understøtter kun det første.
Nøgle takeaway: Konformationsbekræftelse er det emne, programmer springer oftest over. Renhedsdata og massebekræftelse kan ikke fortælle dig, om konjugatet er foldet korrekt, så en batch kan passere enhver analytisk gate og stadig fejle funktionelt.
Rækkefølgen betyder mere end noget enkelt trin: et program, der rangerer vektorer først og verificerer konformation før analysearbejde undgår at gensyntetisere et konjugat, det allerede har karakteriseret.
Næste trin
Hvis et cyklisk peptid PROTAC-designprogram er på din køreplan, det nyttige næste træk er en scoping-samtale snarere end en købsbeslutning. Medbring tre ting: din ankersekvens og eventuelle strukturelle data, den exitvektor du har valgt eller de kandidater du vejer, og de analyseudlæsninger, dit team vil acceptere som bevis på nedbrydning. Disse tre input afgør, om konverteringen er en ligetil linkerinstallation eller et redesign, der kræver ny kemi.
Til teams, der har brug for en syntese- og karakteriseringspartner, MOL Ændrer tilstande på tværs af fastfase- og mikrobiel fermenteringssyntese, kontrolleret miljørensning, HPLC/MS og sterilitet QC, og mg-til-kg skala. Det interval er vigtigst, når et konjugatprogram bevæger sig fra materiale i analytisk skala til de mængder, en funktionel analyseserie kræver. Peptid produktion
Nøgle takeaway: Konstruktionerne beskrevet her er forskningsreagenser. Enhver klinisk oversættelse kræver uafhængig validering, og intet i denne guide erstatter din egen analytiske og biologiske bekræftelse.
Afsløring: forfatterens organisation leverer peptidsyntese og karakteriseringstjenester af den art, der er diskuteret i denne artikel.
Diskuter et tilpasset konjugeret program. Del din ankersekvens, måludgangsvektor og nødvendige assay-endepunkter, og anmode om den analytiske dokumentationspakke (renhedsmetode, gradient, MS bekræftelse og foldningsdata) sammen med et scoping-opkald. Start en programdiskussion.
Ofte stillede spørgsmål
Hvad gør jeg, hvis der ikke er nogen co-krystalstruktur af mit cykliske peptid bundet til målet?
Ranger kandidatstillinger empirisk i stedet for at vente på en struktur. Udtryk peptidet med linkeren ved hver kandidatrest, mål derefter i rækkefølge: bevaret målaffinitet, ternær-kompleks dannelse med E3-ligasen, og cellulær nedbrydning. En position, der tolererer substitution, bevarer sin affinitet; en der ikke gør det diskvalificeres. Behandl smalle struktur-aktivitetsforhold ved en kandidatposition som et stopsignal, fordi udgangsvektoren sandsynligvis er begravet i bindingsgrænsefladen.
Er en længere linker altid bedre for et cyklisk peptid PROTAC?
Ingen. Linkerlængde og sammensætning ændrer ternær-kompleks geometri, og at geometri driver styrke i begge retninger. Den ofte citerede 5-15 atom-vinduet kommer fra sekundære resuméer, hvis primære sider ikke kunne læses i denne kørsel, så behandl ethvert specifikt interval som en starthypotese til at teste på tværs af en lille serie, ikke en specifikation at designe efter.
Hvordan skelner jeg epimerisering fra et foldeproblem på mine analytiske data?
Brug ortogonale metoder, fordi en enkelt RP-HPLC hovedspids ikke kan adskille de to fejltilstande. Chiral LC eller NMR løser stereokemi ved den berørte rest; cirkulær dikroisme og NMR-rapport om opløsningskonformation. Epimerisering er en kendt fare ved konjugationskemien snarere end en sælgers talepunkt, så når både peptidrenhed og foldning ser acceptable ud, og aktiviteten stadig falder, køre det stereokemiske tjek, før linkeren redesignes.
Hvad er minimumsanalysen sat til at hævde nedbrydning snarere end hæmning?
Fire målinger: ternær-kompleks dannelse, mål ubiquitination, proteasomal afhængighed bekræftet af MG132-type redning, og kvantitativ DC50 og Dmax fra dosis-respons-kurver. Ternært kompleks alene er utilstrækkeligt, da binding uden ubiquitinationsoverførsel intet beviser om nedbrydning. DC50 og Dmax alene er fænotypiske: de viser, at målet forsvandt uden at vise, at proteasomet forårsagede det. Rapportér sættet sammen, og angiv cellelinjen og tidspunktet for hver.