ステップ 1: GLP-1R 結合計算で実際に予測される内容を定義する
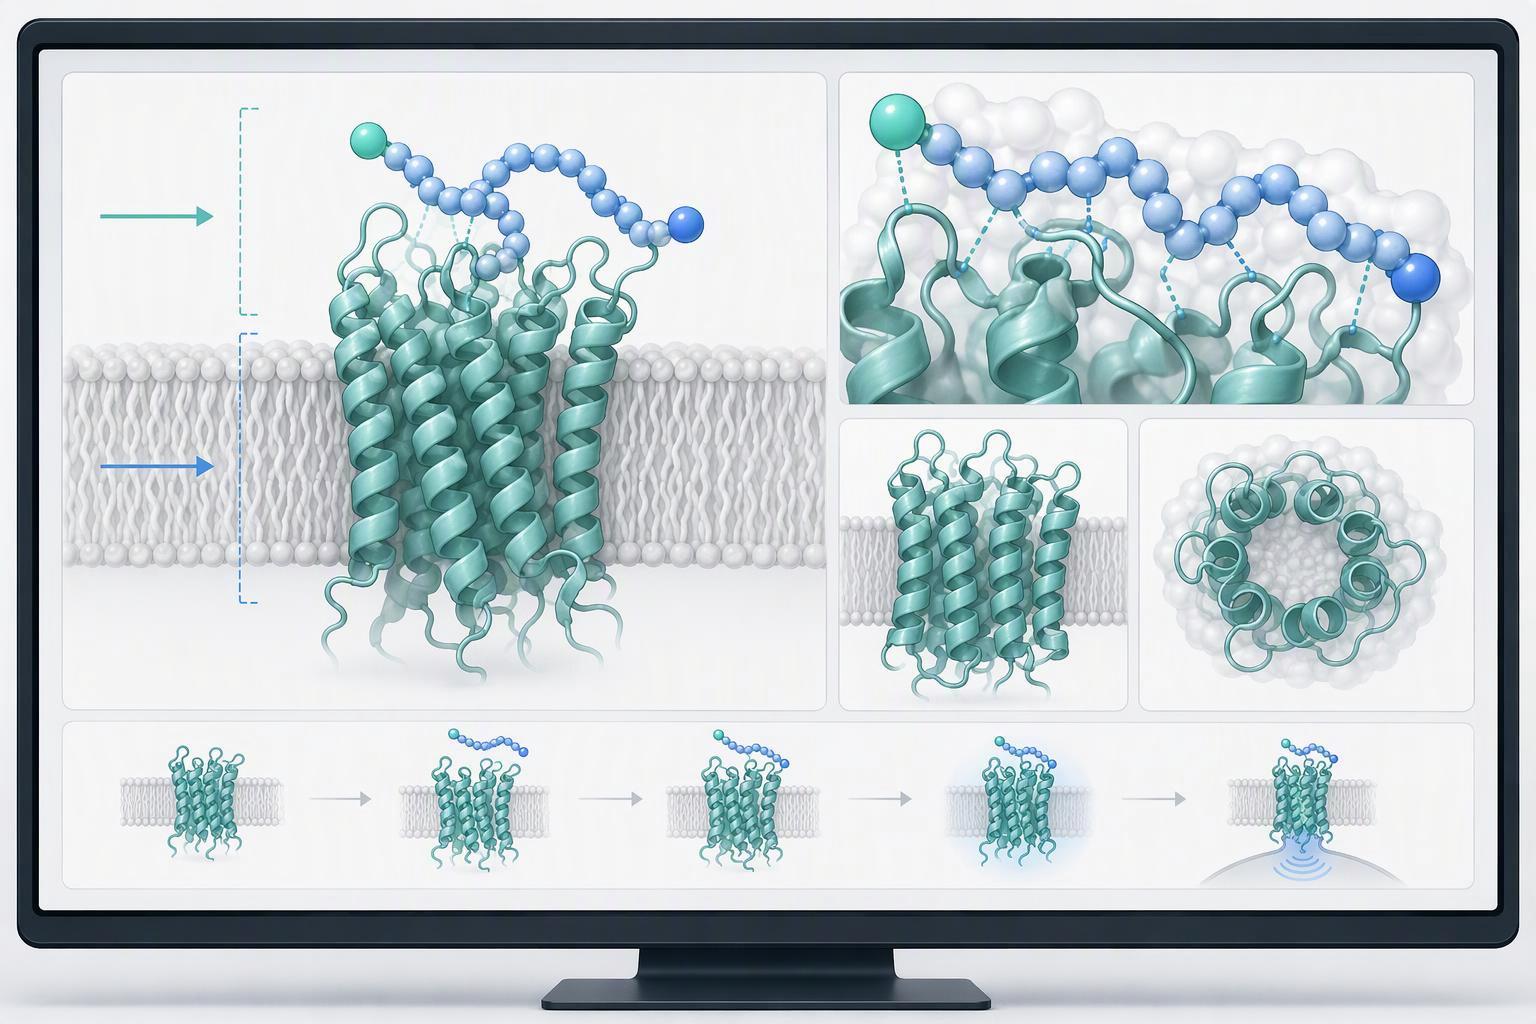
通常のモデリング実行から 3 つの異なる数値が得られます。, そしてそれらは同じ意味ではありません. あ ドッキングスコア 1 つの受容体構造におけるペプチドの 1 つのポーズのスコア関数値です。; ポーズをランク付けします, 親和性を測定するものではありません. あ 予測Kd そのスコアは、訓練された回帰によって解離定数のように見えるようにプッシュされました. あ フリーエネルギー推定 (MM-PBSA, MM-GBSA, 錬金術FEP) フレームのアンサンブルに対する物理ベースの計算です, それには標準偏差が含まれており、数値の一部として読み取る必要があります。.
これらはいずれも測定された結合定数ではありません.
GLP-1Rのスプレッドがこれほど広い理由は構造的なものです. クラス B1 GPCR ペプチド認識は 2 つの領域の問題です: ペプチドの C 末端は細胞外ドメインと結合しますが、N 末端は活性化のために 7TM コアに到達する必要があります。, そのため、単一の剛体受容体ポーズでは束縛状態を表現できません。, そしてドッキングはどの受容体の状態をモデル化したかに影響されます (ネイチャーコミュニケーションズ, 2022).
その感性は学術的ではない. で 2026 薬理学研究のフロンティア, 同じ18残基アゴニストが得点した 55 1 つの受容体配座異性体に対して nM、および 360 別の nM に対する (SR18; PRODIGY対 0 ns 配座異性体と MD 中央配座異性体). MM-PBSA 終了 1 MD の μs は -98.79 ± 8.77 SR18 の kcal/mol 対 -167.22 ± 16.20 GLP-1のkcal/mol. 細胞ベースのアッセイは実行されませんでした.
重要なポイント: スコアは信頼区間のある仮説です, 結果ではない. 何かをランク付けする前に, どの受容体の状態を書き留める, どの方法で, どのエラーバーが各数値を生成したか.
ステップ 2: ランキングを信頼する前にモデルの仮定を監査する
ランキングはその下にある仮定によって決まります, これらの仮定は通常、出力テーブルでは見えません。. 予測された注文に基づいて行動する前に, 3つの質問をする: どの力場とサンプリング方式がポーズを生成したか, シミュレーションの実行時間, モデルが実際にベンチマークされたもの.
サンプリングが1位ランキングブレイク. クラス B GPCR MD の実行は通常、200 ~ 500 ns 後にのみ安定します。, さらに 1.5 ~ 2.5 μs 間緩和を継続, そして多くの活性化プロセスは従来の MD のタイムスケールを完全に超えて持続します (クラス B GPCR の立体構造状態遷移の評価, 2019). あ 100 収束しているように見える ns 実行は、単に関連する状態をサンプリングしていない可能性があります.
ポーズの精度にも限界がある. で 2025 GPCR – ペプチドベンチマーク, AlphaFold2 は正しいバインディング モードを再現しました。 94% カットオフ後の複合体の (63/67), 相互作用分類 AUC を使用 0.86 AF2 対 0.76 チャイ-1用, 一方、ESMFold と NeuralPLexer はバインダーを強化できませんでした (GPCR – ペプチド結合分類子ベンチマーク, 2025-04-26). それを読んでください 94% 単一ソースのベンチマーク結果として, ターゲットを保証するものではありません.
|
モデルクラス |
報告されたパフォーマンス |
壊れる可能性が最も高い仮定 |
|---|---|---|
|
医学博士 / フリーエネルギー |
200 ~ 500 ns 後に安定します |
サンプリングは十分長い |
|
AF2 / AF3 |
94% 正しいモード; AUC 0.86 / 0.82 |
ペプチドへのベンチマーク転移 |
|
チャイ-1, ESMフォールド, NeuralPLexer |
AUC 0.76; バインダー濃縮なし |
スコアトラックのアフィニティ |
障害モードが文書化されている: 活性があることが知られているリガンドでは、およそ 5 ~ 5.5 Å の再ドッキング RMSD が報告されています。 (GLP-1R の構造決定因子, 2016-04-08).
ステップ 3: 予測を偽る可能性のある最小限のバリアント パネルを設計する
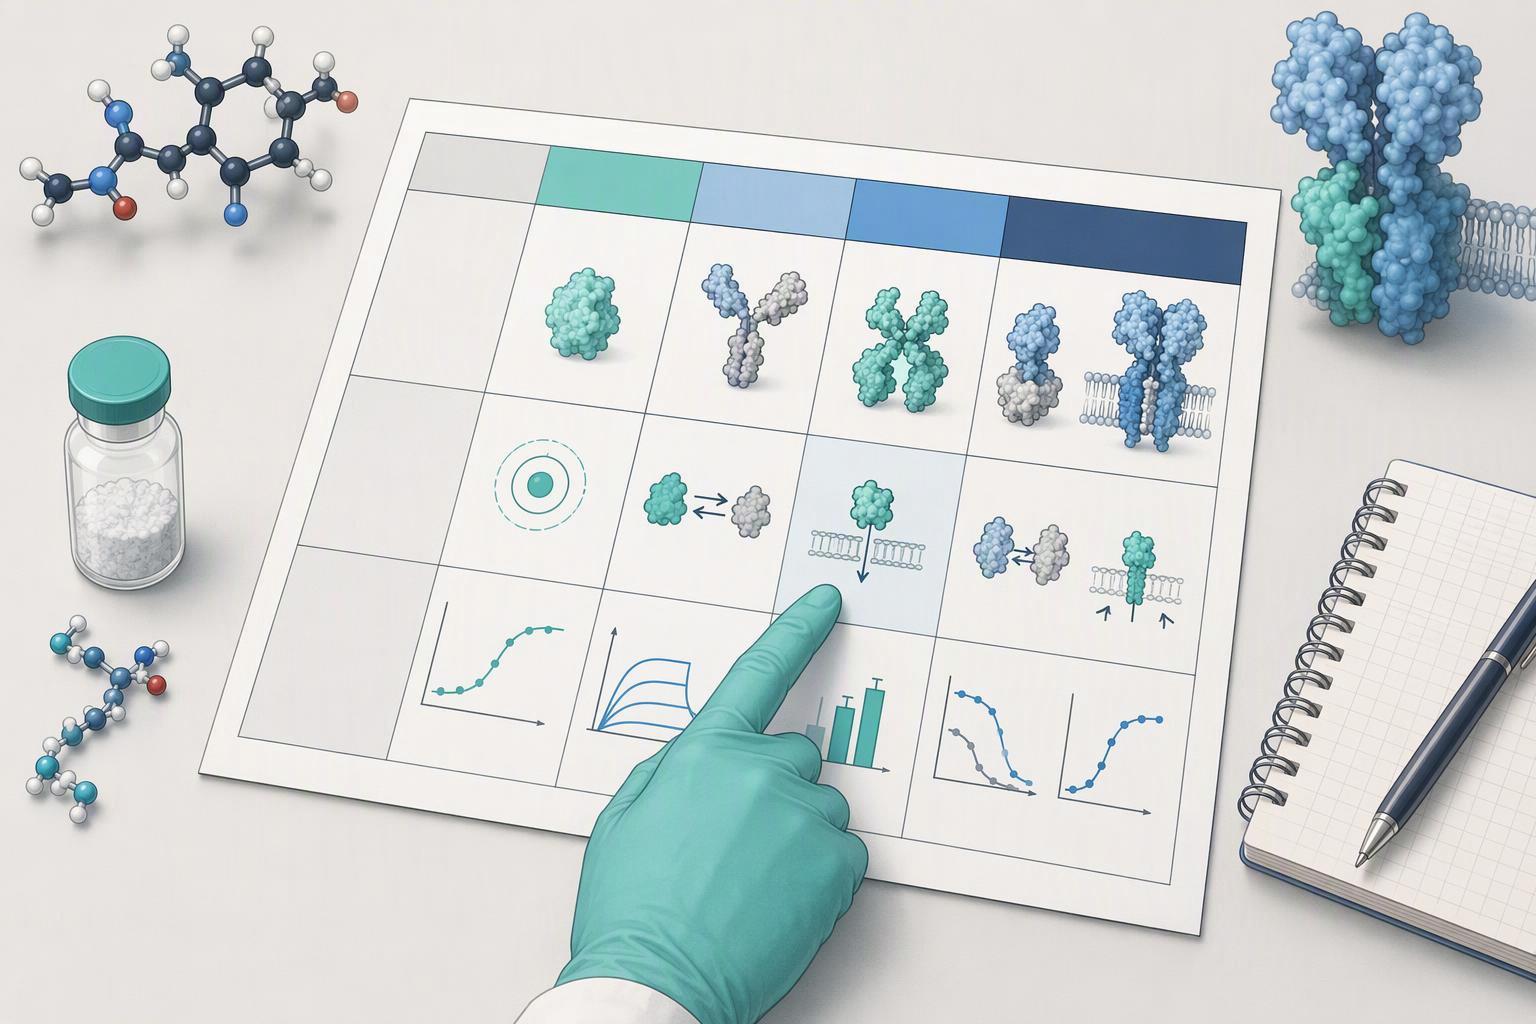
各バリアントがランキングが間違っていることを証明できた場合、パネルはコストを獲得します。. モデルの感度に合わせてサイズを調整する, 合成予算に当てはまらない: 計算により 2 つのバリアントが分離されると主張される場合, パネルの少なくとも 1 人のメンバーがその境界上に座らなければなりません.
3 つのグループがほとんどの作業を行います. モデルが接触点としてフラグを立てた残基での単一位置置換により、それらの接触が予測された重みを運ぶかどうかをテストします. N 末端の切断または置換シリーズは、モデルが決定的なものとして扱う領域をテストします。, そしてそれは最も頻繁に取り残されるグループです: SR18の著者らは、細胞シグナル伝達の研究はまだ行われていないと指摘した, そのため、それらのモデリングが示唆する N 末端の挙動は、確定した入力ではなく、依然として未解決の問題です。. 配列ではなく化学を変更する 1 つの修飾クラス, ホッチキス留め, 脂質化, またはD-アミノ酸スキャン, シーケンスベースのモデルがトレーニングされていない変更後も予測が存続するかどうかをテストします。.
カスタムペプチド合成 結果を識別可能なバリアントとして扱う, 図書館ではありません. すべてのメンバーは、1 つの仮定とそれを偽る 1 つの読み出しにマッピングする必要があります。.
|
バリアントクラス |
仮定のテスト済み |
読み取り値の改ざん |
|---|---|---|
|
接点代替 |
フラグ付き残基が親和性を高める |
測定された結合の変化 |
|
合成ペプチドの合成 N末端シリーズ |
N末端が認識を支配する |
紛失または保持 Spps固相ペプチド合成 バインディングの |
|
化学を変える修飾 |
シーケンスのみで動作を予測 |
予想順位との乖離 |
ステップ 4: すべての結合読み取り値を機能的な読み取り値と組み合わせる
結合定数は、ペプチドが受容体をどれだけしっかりと占有しているかを示します。. その占有がどれほど強力にそれを活性化するかはわかりません. 受容体占有率は、ペプチドが結合した GLP-1R 分子の割合です。; cAMP の蓄積は、活性化を報告する下流のセカンドメッセンジャーの読み取り値です; 偏ったアゴニズムは、あるシグナル伝達経路を別のシグナル伝達経路よりも好むリガンドを表します。, β-アレスチン-2 リクルートを介した cAMP など. これらは別々の測定値であるため、, 親和性のみに基づいて構築されたランキングは、機能を測定すると逆転する可能性があります.
ティルゼパチドはギャップを説明します. 天然の GLP-1 よりもおよそ 5 倍弱い親和性で GLP-1R に結合しますが、cAMP 蓄積の効力は 20 分の 1 です。, ヒト血清アルブミンの存在下では、その効力変化は 81 倍に達しますが、GLP-1(7-36) 効力は変わらない (JCI の洞察, 2020). 効力と親和性は互換性がありません, アッセイ媒体によって数値が変化します.
偏ったアゴニストはギャップをさらに拡大する. ネイティブ GLP-1 の cAMP EC50 は次のとおりです。 3 午後, に対して 29 リラグルチドの場合は pM 、 343 バイアスデュアルアゴニスト CT-859 の pM, 以下で生成する 5% β-アレスチン-2 リクルートと比較 99% GLP-1用 (PMC, 2025). cAMPを平坦のままにする予測されたアフィニティゲインは、cAMPをシフトさせる結果とは異なります。, そしてパネルはこの 2 つを区別する必要があります.
結合親和性, cAMP の効力, 経路バイアスとモデル分類 AUC は異なるエンドポイントです. 受容体システムを報告する, 測定条件と各値のコンパレータ; 一致した実験内で数値的な効力を比較する. 別のペプチドに対する対イオン毒性の観察では、GLP-1R 特異的閾値が確立されない.
チップ用: 比較する予定の同じ培地で機能アッセイを実行します。, 上記のアルブミン依存性効力変化はアッセイ条件の特性であるため, ペプチド単独ではない.
ステップ 5: 参照材料の品質を比較の変数として扱う
コンパレータは測定値です, そしてそれはそれ自身のエラーを伴います. 参照標準が GLP-1R 比較に入る前, それが実際に何であるかを確認する. 対イオン形式は最も一般的な隠れ変数です: 四分岐ペプチド M33 の TFA 塩は、酢酸塩に比べて正常気管支上皮細胞に対して 5 ~ 30% 高い細胞毒性を示しました。, TFA を配合した MOG は、脳脊髄炎の発症をおよそ加速しました。 5 同等の発生率と重症度の日数 (ペプチド構造に対する対イオンの影響, 活動, そして機能性, 生体分子, 2025). メカニズムは日常的な化学です: Fmoc/tBu SPPS に続いて RP-HPLC によりトリフルオロ酢酸塩が得られる, TFA は塩基性残基に結合するか、凍結乾燥物に吸着されます。, USP と EP は、ペプチド医薬品中の酢酸アニオンを不純物として扱い、そのレベルを測定する必要があります。 (ペプチドにおける対イオンの役割, 概要, 医薬品, 2020).
|
品質管理属性 |
何を確認するか |
変化する可能性があると分析する |
|---|---|---|
|
HPLCによる純度 |
報告されている手法と統合閾値 |
効力, 見かけの親和性 |
|
対イオンの正体 |
アセテート vs. TFA, CoAに記載されている |
細胞生存率, 機能的な読み出し 人工的な 合成ポリペプチド ペプチド合成 |
|
残留TFA |
測定レベル, 不在とみなされない ポリペプチドの合成 |
細胞毒性, 増殖アッセイ |
|
ロット番号 |
単一の合成バッチまで追跡可能 |
ロット間の比較可能性 |
ステップ 6: 意見の相違を調整し、次のパネルを設定する
測定された親和性と予測されたランキングが一致しない場合, 最初の質問はどのモデルを改訂するかではありません. アッセイが平衡に達したかどうかです. GnRH受容体が機能した例は、これがどこまで可能であるかを示しています: ある 2 時間のインキュベーションにより、見かけの Kd が得られました。 200 反応速度論分析で得られた pM 29 午後, なぜなら、放射性リガンドの解離の半減期は 4 h と完全な平衡が少なくとも必要です 20 h (平衡状態でのリガンド結合アッセイ: 検証と解釈, Br J ファーマコル, 2010). 非平衡リードは Kd をおよそ 7 倍過大評価しました, そしてモデルは決して問題ではなかった.
この 1 つのケースでは、一般的なショートカットも破棄されます. 広く繰り返されている「2 倍以内」の一致基準は、その情報源によってサポートされていません。, したがって、GLP-1R 結合計算の合格点として使用すべきではありません。.
モデルに触れる前に不一致の箇所を特定する. ギャップがインキュベーション時間に遡る場合, バッファ, または参照ロット, パネルまたはプロトコルを変更する. クリーンな平衡測定に耐え、バリアント間で繰り返される場合, モデルを変更する.
よくある質問
ドッキングスコアは測定された結合定数を置き換えることができますか?
いいえ. ドッキング スコアは、スコアリング関数によって生成される推定値です。, そしてその推定値の誤差は同時に報告されない. 測定された解離定数 (Kd) 信頼区間を持つ近似パラメータです, これにより、比較のベースラインとして使用できるようになります。.
SR18 の事例は、実際に区別がなぜ重要なのかを示しています. その研究では, 同じペプチドが 2 つの受容体配座異性体に対して異なるスコアを獲得, ある 55 1 および 1 に対する nM の結果 360 別の nM に対する, そして、それらの間を判断するための細胞ベースのアッセイは実行されませんでした。. 開始構造とほぼ 1 桁変化するスコアは、結合に関する仮説です。, それの測定ではありません. ドッキングを使用して合成候補をランク付けする, あとはアッセイで判断しましょう.
GLP-1R の比較にはどのアッセイ形式を使用すればよいですか?
フォーマットが実際に何をレポートするかを選択します. HTRF および Tag-lite 競合アッセイは、プレート形式で平衡親和性を提供し、より大きなバリアントパネルに適しています. 放射性リガンドの競合は、異なる検出原理で同じことを行います。, 放射性同位体に伴う処理のオーバーヘッドが発生します. SPR レポートの動態, 結合速度と解離速度, これにより、効力の違いがより速いオフレートから来るのか、より遅いオンレートから来るのかがわかります。.
その動的な詳細が、フルパネルではなく候補リストに基づいて SPR を支払う理由です. 公表された比較可能性に関する 1 つの注意: 競合他社のアプリケーション ノートでは、次の Kd 値が報告されています。 0.816 nMおよび 2.347 エラーバーのない 2 つの機器の nM, 複製または n 個の数値, したがって、独自の条件下で再現するまでは、複数の機器の数値を参考として扱ってください。.
研究中に参照標準のロットが変更された場合はどうなりますか?
比較に入る前に、1 回のアッセイ実行で古いロットに対して新しいロットを再認定します。. 同じプレート上で両方のロットを並べて実行します, 同日, 同じプロトコル, 効力比を記録します.
純度については分析証明書を確認してください, 対イオンと残留 TFA, これらのいずれも、ペプチド配列とは無関係に見かけの効力を変化させる可能性があるため、. 効力の変化がロットの変化を追跡する場合, モデルの誤差としてではなく、比較に対する重大な影響として扱います。. 大きな変化は自分でコントロールできる変数です; スコアリング機能はありません.
結論
ループはメソッドです. GLP-1R 結合計算で実際に予測される内容を定義する, ランキングの背後にある仮定を監査する, 改ざんできるバリアントパネルを設計する, すべてのバインディング読み出しを機能的な読み出しとペアにする, コンパレータの品質を制御する, 次のパネルを注文する前に意見の相違を調整してください. これらの手順はいずれもオプションではありません, なぜなら、シミュレーションは、測定された読み出し値がそれと矛盾する可能性がある瞬間にのみ有用な証拠となるからです。. それまでは、自信に満ちた表が添付された仮説です.
これが、コンパレーターがモデルと同じ精査に値する理由でもあります。. 基準物質がロットごとに異なる場合, あなたが和解しようとしている意見の相違は、予測ではなく標準に属する可能性があります. 文書化された参考資料と QC ワークフローがその制御をサポートします: 分析証明書, 純度および対イオンデータ, 分析結果とともに記録されるロットのトレーサビリティ, したがって、次の比較は既知のベースラインから始まります. ループの測定側を計算側と同様に監査可能に保つために使用できます。.