Vad utökade genetiska koder för anpassad peptiddesign faktiskt förändras
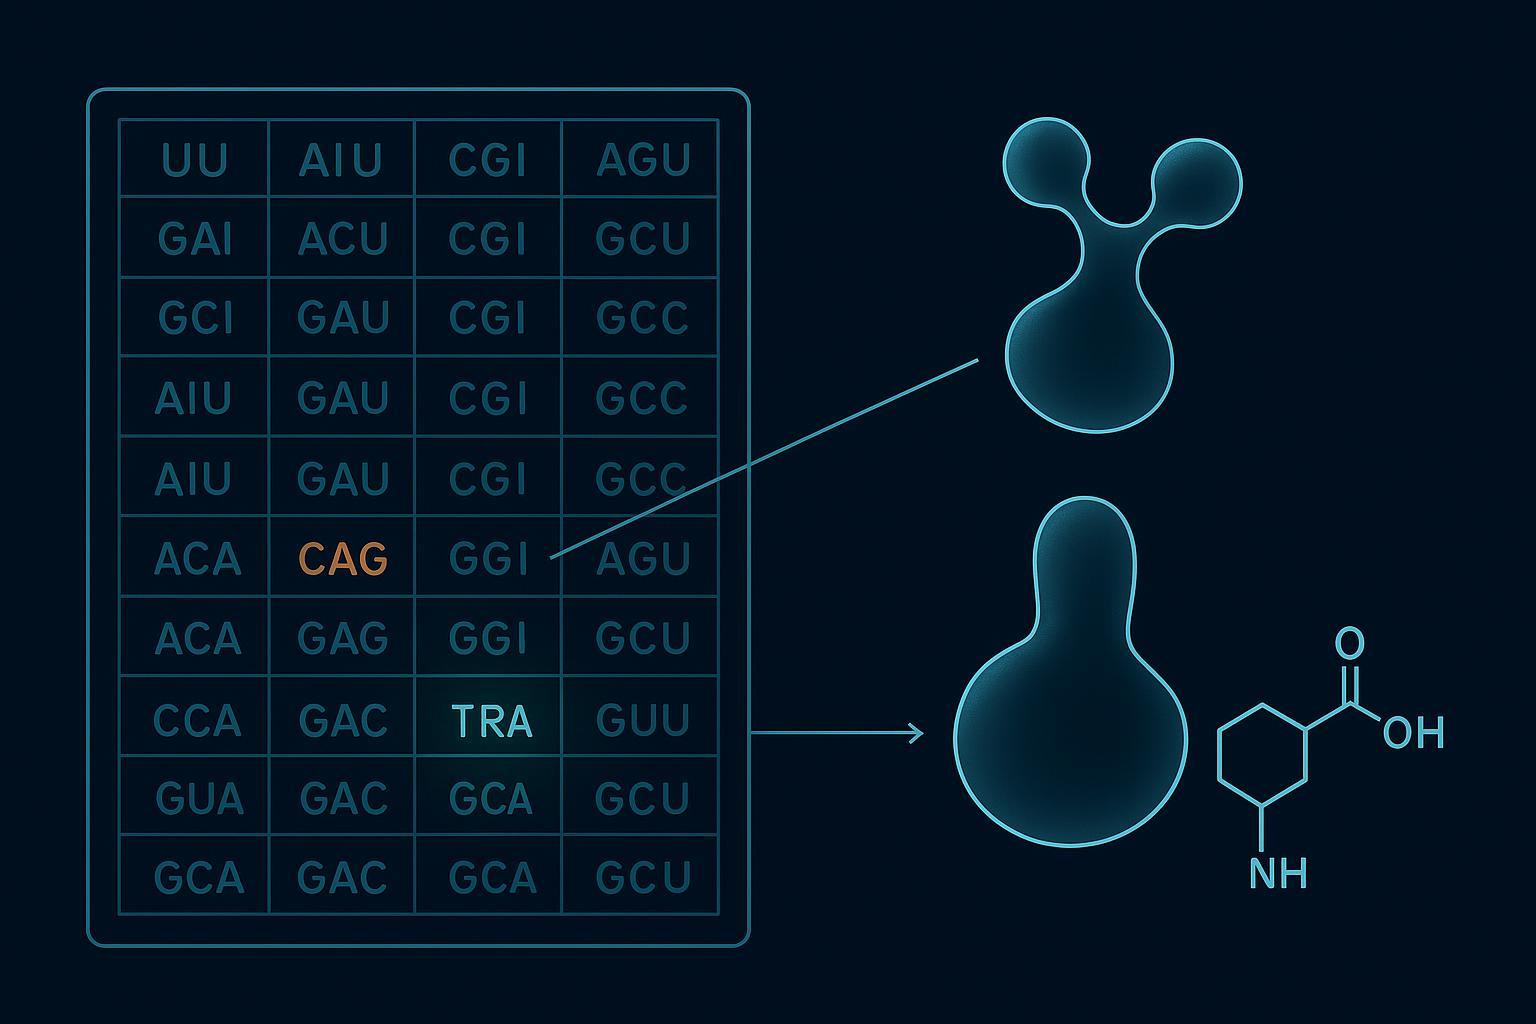
Den genetiska standardkoden tilldelar 64 kodon: 61 avkänna kodoner och 3 stoppa kodon, och varje avkänningskodon specificerar en av 20 kanoniska aminosyror (Addgene Genetic Code Expansion samling, senast granskad 19 november 2025). En utökad genetisk kod skriver om den uppgiften. Ett eller flera kodon omdirigeras till en icke-kanonisk aminosyra genom kodonomtilldelning, installeras platsspecifikt av ett ortogonalt tRNA / aminoacyl-tRNA-syntetaspar som bara laddar sitt eget konstruerade tRNA och inget annat i värden.
Den definitionen spelar mindre roll än felläget den låser in. Bärnsten (UAG) suppression läser genom ett stoppkodon, så den konkurrerar direkt med releasefaktorn 1. När förtrycket förlorar den rasen, resultatet är för tidig uppsägning och trunkerad produkt, en förlust som omkodade eller RF1-knockout-värdar är speciellt utformade för att minska (Naturens bioteknik, 11 september 2024). Sense-codon omtilldelning misslyckas annorlunda: det omtilldelade kodonet konkurrerar fortfarande med sin ursprungliga betydelse, så produkten kommer som en blandning som innehåller kanoniska felinkorporeringsmedel snarare än en kort kedja.
Key Takeaway: Bärnstensundertryckning misslyckas genom trunkering; sense-codon omtilldelning misslyckas genom blandning. Avkastning och renhet rör sig därför oberoende av varandra, och felläget du ärver ställs in av kodonstrategin du väljer, inte av hur skicklig leverantören är.
[DIAGRAM: märkt 64-kodontabell med UAG och ett sens kodon markerat, var och en pilade till sitt ortogonala tRNA/syntetas-par]
Varför verktygslådan rörde sig snabbare än recensionerna
Referensmaterialet de flesta lag når efter släpar efter kemin. A 2025 granskning sätter räkningen över 300 icke-kanoniska aminosyror som framgångsrikt används i genetisk kodexpansion (Naturkommunikation, 29 september 2025), medan den mest citerade recensionen i sökresultaten om detta ämne dateras till 2014. Resurser på plasmidnivå har hållit i tätare takt: Addgenes expanderande GCE-samlingslistor ungefär 150 syntetasplasmider och 26 bakteriestammar, med innehåll senast granskat den 19 november 2025 (Addgene). Om din urvalslista byggdes från en decennium gammal recension, den beskriver en mindre verktygslåda än den som finns.
Hur utökade genetiska koder omformar icke-kanoniskt urval av aminosyror
Samma kodonstrategi anger också villkoren för icke-kanonisk aminosyraselektion, där parval, inte val av rester, är den bindande begränsningen. Fyra faktorer avgör vilket tRNA-syntetas-par du kan använda: substratpassning, kodonstrategi, värdorganism, och om du behöver koda mer än en ncAA på en gång. Arbeta igenom dem i den ordningen och det mesta av den uppenbara friheten i restkatalogen försvinner.
Två plattformar dominerar. De Methanocaldococcus jannaschii TyrRS/tRNA^Tyr-par accepterar tyrosinliknande och aromatiska sidokedjor. Ställningen för pyrrolysyl-tRNA-syntetas och dess utvecklade varianter tar lysinliknande och skrymmande rester, och tolerera mer strukturell variation. Observera att RF1 knockout är en värdstrategi som höjer undertryckningseffektiviteten, inte ett tredje par.
|
Tjänster Särdrag |
M. jannaschii TyrRS/tRNA^Tyr |
PylRS/tRNA^Pyl-varianter |
|---|---|---|
|
Substrat omfattning |
Tyrosinliknande, aromatisk |
Lysinliknande, skrymmande, strukturellt varierande |
|
Codon strategi |
Bärnsten (UAG) undertryckande |
Bärnsten, ockra, eller omplacering av sense-codon |
|
Värdkompatibilitet |
E. coli, jäst, däggdjursceller |
E. coli, däggdjursceller, cellfria system |
|
Lämplighet för multiplexering |
Begränsad; överlappande substrattolerans |
Bättre lämpad för ortogonal parexpansion |
Multiplexing är där fältet rör sig. A 2024 kodonkompressionsstrategi identifierad 12 ömsesidigt ortogonala tRNA-syntetaspar som är kompatibla med den kända GCE-resursuppsättningen, vilket spelar roll om din design behöver två eller flera distinkta ncAAs i en kedja.
Sedan finns det gränsen mellan vad en ribosom kan installera och vad bara SPPS kan. Sidokedjemodifieringar på en a-aminosyraryggrad är GCE-kompatibla. β-aminosyror, a,a-disubstituerade rester, i depsipeptider, och många N-metylerade rester är det inte; de är endast för SPPS eller endast in vitro. Om din målrester finns på den listan, inget parval kommer att rädda det.
Läsundertryckande effektivitet ärligt
Undertryckningseffektivitet är ett intervall, och räckvidden betyder bara något med påfrestningen och reportern kopplad. Tidigare system levererade ungefär 10–20 % för ett enda bärnstenskodon. Optimerade och utvecklade system når 50–117 % beroende på sammanhang, och 76–104 % i den RF1-deleterade C321-stammen. Dessa figurer beskriver olika konstruktioner, så de är inte en stege du kan klättra på genom att välja det högsta numret.
Inkorporeringseffektivitet är inte heller samma mått som nästan besläktad genomläsning. Readthrough går omkring 1% i topp 10, om 3% i BL21, och upp till 17% i MG1655, når så högt som 47.5% vid en given bärnstensfärgad plats i en RF1-raderad bakgrund. Man mäter hur mycket ncAA du installerar; den andra mäter hur mycket fel aminosyra du installerar bredvid den.
Den praktiska konsekvensen: en specifikation som bara nämner en procentandel, utan att namnge stammen och reportern, är inte en specifikation. Be om båda innan du accepterar en effektivitetssiffra.
Designa peptidbibliotek med icke-kanoniska aminosyror
När paret är fixat, visningsplattformen du väljer sätter taket på vilka icke-kanoniska aminosyror ditt bibliotek överhuvudtaget kan innehålla. mRNA-display och RaPID sitter högst på ncAA-tolerans eftersom hela cykeln körs in vitro: flexizyme laddar tRNA direkt, så ribosomen behöver aldrig konkurrera med ett värdsyntetas, och ryggradsmodifierade rester förblir i spel. Ribosomskärm rankas högt men systemberoende, eftersom toleransen skiftar med lysatet och frisättningsfaktorinställningen. Fagdisplay förblir fungerande, eftersom fagdisplay kan bära icke-kanoniska rester via bärnstenskodande hjälpfag, även om värdmaskineriet begränsar vilka rester som överlever. Jästvisning är den mest begränsade av de fyra.
Position är lika viktig som plattform. Positionsmässigt kontra global ncAA-diversifiering delar upp designutrymmet: enstaka eller få definierade platser passar en mekanistisk sond eller ett konjugationshandtag och förblir lätta att karakterisera, medan genomgripande substitution passar stabilitets- eller proteasresistensskärmar och är mycket svårare att verifiera rester för rester.
Där biblioteksdesign möter vägval
Ett bibliotek byggt kring en ryggradsmodifierad rest kan inte alls produceras genom genetisk kodexpansion, så visningsbeslutet och produktionsbeslutet måste fattas tillsammans snarare än i följd. Stabilitetsutbytet är det som gör den begränsningen värd att acceptera. I en inhibitorserie, cykliska β2,3-rester försköt serumhalveringstiden 168 timmar kl 37 °C i humant serum, mot 4.6 timmar för motsvarande alaninvariant; en andra ställning i samma verk nås 48 timmar kontra Handla 4.2 timmar. N-metylering utökade proteinas-K stabilitet från 6 minuter till ungefär 110 minuter i sin egen analys, och D-aminosyrasubstitutioner flyttade halveringstiden från minuter till timmar i deras. Ingen av dessa siffror generaliserar till peptider som en klass: var och en tillhör sin egen ställning och analys. Den praktiska konsekvensen är snäv och fast. Om ditt stabilitetsmål kräver en ryggradsmodifiering, rutten är vald för dig, och biblioteket måste designas inom den gränsen från början.
Platsspecifika konjugationsstrategier aktiverade av utökade koder
Det vägbeslutet går rakt in i konjugationen, där ett ncAA-handtag köper positionskontroll som ingen kanonisk rest kan matcha, och det ändrar felläget snarare än att eliminera fel. Ett bioortogonalt handtag installerat i en definierad position ger den högsta positionskontrollen och den lägsta bördan utanför målet för varje platsspecifik peptidkonjugationsstrategi, men det misslyckande du sedan hanterar är ofullständig inkorporering eller oreagerat utgångsmaterial, inte felaktig inriktning. Cystein är kemoselektivt och billigt, ändå överalkylering, oxidation och disulfidförvrängning är rutin. Lysinkoppling ger regioisomerblandningar. N-terminal kemi förbättras på lysin men förblir sekvens- och kontextberoende.
|
Kemi |
Selektivitet |
Kinetik |
Koppar |
Felläge den producerar |
|---|---|---|---|---|
|
SPAAC (azid + cyklooktyn) |
Hög |
Måttlig |
Krävs inte |
Oreagerat azidhandtag |
|
CuAAC (azid + alkyn) |
Hög |
Snabb |
Nödvändig |
Kopparmedierade sidoreaktioner |
|
Tetrazin-TCO |
Peptidsyntes Hög |
Snabbast |
Krävs inte |
Hydrolyserat tetrazin |
|
Elektrofil ncAA-cyklisering |
Hög när geometrin är förorganiserad |
Intramolekylär |
Krävs inte |
Konkurrerande intermolekylär produkt |
Menyn är kort. SPAAC är kopparfritt och enkelt att använda; CuAAC är den mest robusta men kopparkänslighet är ansvaret; tetrazin-TCO-etiketter snabbast; och elektrofil ncAA-cyklisering är intramolekylär och ren när geometrin är förorganiserad, som rapporterats för dubbla bio-ortogonala ncAA-handtag (Naturkommunikation, 2023).
Att välja mellan bioortogonal konjugation och naturlig kemisk ligering
Nativ kemisk ligering och ncAA-konjugering löser olika problem och är inte substitut. NCL är rutten när målet kräver en ryggradsmodifiering, en D-rest, eller ett segment som inget ortogonalt par kommer att ladda; dess förutsättning är en livskraftig ligationsövergång och ett tioestersegment. ncAA-konjugering är vägen när målet är en standard α-ryggradspeptid som behöver en definierad fästpunkt, och dess förutsättning är ett par vars substratomfattning accepterar handtaget plus en värd eller extrakt som undertrycker den konkurrerande kanoniska genomläsningen.
Den praktiska konsekvensen: fatta konjugationsbeslutet samtidigt som ncAA-beslutet. Ett handtag som det valda paret inte kommer att ladda är en omdesign, inte ett substitut.
Analytiska kontroller som bevisar sekvenstrohet
Vilken konjugationsväg du än ställer dig på, kontrollpaketet är det som omvandlar ett syntespåstående till en försvarbar specifikation, och det måste designas innan det första partiet görs, ej monterad efter en avvikelse. För alla peptider som bär en icke-kanonisk rest, sekvenstrohet analytiska kontroller vilar på fem element: exakt massabekräftelse av den intakta peptiden plus sekvenslokaliserande fragmentjoner som spänner över den modifierade resten av LC-MS/MS; kvantifiering av inkorporeringseffektivitet, betyder fraktionen av peptiden som bär ncAA kontra kanoniska felinkorporeringsmedel eller omärkt produkt; en diastereomer/epimerkontroll mot en syntetisk referens eller en ortogonal kiral eller retentionstidsmetod, eftersom standard LC-MS ofta inte kan särskilja epimerer; validering av ortogonalt översättningssystem med negativa kontroller och ingen detekterbar genomläsning utanför målet; och, för elementmärkta ncAA som selen eller borvarianter, aminosyraanalys eller ICP-MS (2026 genomgång av precisionsbiokonjugering och platsspecifik inkorporering, hämtas 2026-02-04).
Ange acceptanskriterier före den första lotten
Varje kontroll blir användbar endast när den har ett nummer. Koppla massanoggrannheten till den rest som bekräftas, koppla inkorporeringseffektivitetströskeln till upplösningsförmågan hos analysen som mäter den, och kräver att epimerkontrollen namnger referensstandarden den jämförs mot. Där peptiden är en parenteral kandidat, farmakopégränsen är doshärledd: USP <85> sätter endotoxingräns = K/M, med K = 5 EU/kg/timme för icke-intratekala vägar och K = 0.2 EU/kg/timme intratekal, uttryckt per mg eller per ml av den maximala humana dosen. I Q2(R2) ställer in valideringsparametrarna, och MHRA ALCOA-principerna ramar in förväntningarna på dataintegritet runt dem.
En kontroll som inte skrivs in i specifikationen före det första partiet är en kontroll som du kommer att förhandla om efter en avvikelse.
Uppskalning: SPSS, CFPS och Lot-to-Lot-trohetsrisk
Dessa kontroller måste sedan överleva uppskalning, eftersom rutten som producerade din forskningsbatch inte automatiskt är den väg som producerar din kliniska batch, och trohetsriskprofilen ändras med den. Peptidsyntes i fast fas arbetar vid milligram till gram per batch, med förberedande och industriella arbetsflöden som når tiotals till hundratals gram, och några sekvenser i kilogram skala. Cellfria system levererar vanligtvis mg per liter: om 96 ± 3 mg/L för ett proteinbärande 40 identiska icke-kanoniska aminosyror, medan ett optimerat RF1-bristextrakt nådde ungefär 1,780 ± 30 mg/L för sfGFP (cellfri ncAA-inkorporeringslitteratur, 2020). Skalklyftan mellan cellfria och fastfasvägar är verklig, och det formar vilka trohetsrisker som dominerar i varje skede.
Två lot-to-lot-risker följer av den splittringen. Under bärnstensdämpning, trunkerings- och genomläsningsprodukter varierar med värdstaten, så att föroreningsprofilen kan skifta mellan fermenteringskörningarna även när målbandet ser oförändrat ut. Under sense-codon omtilldelning, det icke-kanoniska-till-kanoniska förhållandet kan glida medan den totala avkastningen förblir oförändrad, vilket innebär att ett släpptest med endast avkastning inte kommer att fånga det.
Den praktiska konsekvensen: trohetskontrollerna från föregående avsnitt hör hemma i releasespecifikationen för varje lot, inte bara i kvalifikationspartiet.
Vad du ska fråga en partner innan du förbinder dig
Ta med sex frågor till samtalet. Vilken icke-kanonisk aminosyra och ortogonalt par? Vilken kodonstrategi, bärnstensdämpning eller omplacering av sense-codon? Vilken värd eller cellfritt extrakt, och vad är dess dokumenterade undertryckningsprestanda? Vilken konjugationsväg, och bevarar det den inkorporerade återstoden? Vilken av de fem trohetskontrollerna körs på varje lott? Och vilka acceptanskriterier definierar ett passerande parti innan det första görs?
Ett strukturerat design-till-QC-arbetsflöde stödjer detta. MOL-ändringar kan användas för att anpassa ncAA-valet, syntesväg och analytiska frisättningskriterier i en handoff, så kontrollerna som överenskoms vid designstadiet är kontrollerna som körs i skala. Be om kontrollpanelen på lotnivå skriftligen, och jämför det med din egen specifikation innan du bestämmer dig.
Vanliga missuppfattningar om utökade genetiska koder
Fyra fel dyker upp tillräckligt ofta i programrecensioner att de är värda att namnge direkt.
Den första är att en utökad genetisk kod innebär ett omskrivet genom. I praktiken betyder det oftast ett omtilldelat kodon och ett ortogonalt par, läggs till en värd som annars är oförändrad.
Den andra är att högre inkorporeringseffektivitet betyder högre renhet. De två kan röra sig i motsatta riktningar: sense-codon omtilldelning kan hålla utbyte medan renheten faller, eftersom det omtilldelade kodonet nu är tillgängligt för nära besläktade tRNA såväl som för det ortogonala paret.
Den tredje är att vilken icke-kanonisk aminosyra som helst kan läggas in i vilken produktionsväg som helst. Uppdelningen av ryggraden-modifiering är en hård gräns, inte en preferens: rester som förändrar ryggraden kan inte installeras genom ribosominkorporering, och rester som kräver ribosomen kan inte tillverkas av SPPS.
Den fjärde gäller releasetestning.
⚠️ Varning: En enda intakt massa bekräftar inte sekvensen. Utan fragmentjoner som spänner över den modifierade resten, en epimer eller en felaktig inkorporering på en närliggande position kan klara samma specifikation.
Vart är verktygslådan på väg
Med dessa missuppfattningar rensade, färdriktningen är mot att använda mer av koden på en gång. Där tidigt arbete förlitade sig på ett enda ortogonalt par, nyare system har visat att ömsesidigt ortogonala par som används tillsammans kan fungera i samma cell, vilket är det som gör inkorporering av olika icke-kanoniska aminosyror till ett designalternativ snarare än ett tankeexperiment.
Ett andra skifte är arkitektoniskt. Intresset har rört sig mot cellfria och extraktbaserade system som undviker permanent modifiering av värdgenomet, vilket förkortar cykeln mellan att designa en konstruktion och testa den. Vid sidan av det, kodonarbete med fyra nukleotider utökar det tillgängliga kodonutrymmet bortom standarden 64, utvidga det rum som är tillgängligt för omplacering.
Den ärliga varningen är oförändrad: undertryckningseffektiviteten förblir ncAA- och sekvenskontextberoende, och inte varje icke-kanonisk aminosyra är kompatibel med varje väg. Det är därför utvärderingsramen i Syntetiska peptider denna guide, snarare än något speciellt par eller plattform, är den del som är värd att behålla: utökade genetiska koder för anpassad peptiddesign kommer att förändras hela tiden, men kontrollerna som bevisar vad du byggde kommer inte.
Nästa steg
Ta med en specifik sekvens och ett specifikt trohetskrav till det första tekniska samtalet om utökade genetiska koder för anpassad peptiddesign, inte en allmän utredning. Utvärderingschecklistan nedan förvandlar det fyrdelade ramverket i denna guide till frågor som en partner bör kunna svara på utan att säkra:
-
Vilket ortogonalt par, och vilken undertryckningseffektivitet som har observerats för det i din uttrycksvärd?
-
Vilken kodonstrategi: bärnstensdämpning, omplacering av sense-codon, eller ett fyrlingskodon?
-
Vilken väg för denna sekvens: SPSS, cellfri syntes, eller jäsning, och varför den?
-
Vilken konjugationskemi, och förblir den ortogonal mot resterna som redan finns i kedjan?
-
Vilken av de fem analytiska kontrollerna för sekvenstrohet körs per parti, och vilka är acceptanskriterierna?
En partner som kan svara på alla fem, och säg tydligt var en given ncAA eller rutt inte kommer att fungera, är värt mer än en lägre offert. MOL Changes stöder den här typen av design-till-QC-konversation över 300+ funktionella grupper, SPPS och mikrobiell fermentering, mg-till-kg skala, och HPLC/MS och sterilitet QC under klass 100 renrumsförhållanden.
Avslöjande: MOL Changes är sponsor för denna guide. Ram- och utvärderingskriterierna ovan presenteras i forsknings- och jämförelsesyfte. Om
Vanliga frågor
Vad är en utökad genetisk kod?
En utökad genetisk kod är ett översättningssystem där ett eller flera kodon har omtilldelats för att specificera en icke-kanonisk aminosyra istället för standarden.. Omplaceringen är riktad snarare än global: ett ortogonalt tRNA och dess aminoacyl-tRNA-syntetaspar introduceras så att syntetaset endast laddar dess besläktade konstruerade tRNA, lämnar värdens egna översättningsmaskineri orörda. I standardramen med 64 kodon, som lämnar utrymme för att installera en ny kemisk funktion på en vald position utan att skriva om resten av proteomet.
Hur många icke-kanoniska aminosyror kan kodas genetiskt?
A 2025 granskningsuppskattning gör att antalet genetiskt kodningsbara icke-kanoniska aminosyror är över 300, även om den figuren beskriver fältets kumulativa verktygslåda snarare än vad ett enskilt system kan leverera. Det praktiska antalet är mycket mindre, eftersom varje ncAA behöver ett kompatibelt ortogonalt par och en värd som tolererar omtilldelningen. Behandla rubriknumret som en övre gräns för vad som har visats någonstans, inte som en meny du kan beställa från.
Vad är skillnaden mellan bärnstensdämpning och omplacering av sense-codon?
Bärnstensdämpning läser igenom UAG-stoppkodonet och konkurrerar direkt med frisättningsfaktorn 1, så dess karakteristiska felläge är trunkerad produkt. Sense-codon omtilldelning byter ut ett kodon som normalt kodar för en standardrest, så dess felläge är en blandad befolkning: avkastningen kan förbli hög medan renheten faller, eftersom vildtypsresten fortfarande är inkorporerad tillsammans med ncAA. Den skillnaden avgör vilka kontroller du behöver, eftersom trunkering dyker upp i intakt massa medan felöversättning inte gör det.
Vilka icke-kanoniska aminosyror som kan göras av SPPS snarare än genom genetisk kodexpansion?
β-aminosyror, a,a-disubstituerade rester, depsipeptidbindningar och många N-metylerade rester är vanligtvis endast tillgängliga genom fastfassyntes eller in vitro kemi, eftersom ribosomen inte kommer att acceptera dem som substrat. Den genetiskt kodbara klassen är smalare: sidokedjemodifieringar byggda på en a-aminosyraryggrad. Selenocystein är det naturliga undantaget, kodad genom sitt eget dedikerade maskineri snarare än genom ett konstruerat par. Peptidproduktion
Hur bekräftar du att en icke-kanonisk aminosyra införlivades på det avsedda stället?
Bekräftelse kräver exakt massa plus sekvenslokaliserande fragmentjoner som spänner över den modifierade resten, typiskt av LC-MS/MS, tillsammans med en kvantifiering av inkorporeringseffektivitet och en epimerkontroll mot en syntetisk referens. Enbart intakt massa är otillräcklig eftersom den inte kan skilja det avsedda stället från en positionsisomer eller en deletionsvariant av liknande massa. Fragmentjonerna är det som lokaliserar resten; massan säger bara att något förändrats.
Kan icke-kanoniska aminosyror inkorporeras på mer än ett ställe?
Ja, men inkorporering på flera platser multiplicerar den analytiska bördan snarare än att bara upprepa ett arbetsflöde på en plats. Varje ytterligare position lägger till sin egen undertryckande eller omtilldelningshändelse, och fraktionen av produkten som bär ncAA på varje avsedd plats faller när positioner ackumuleras, så populationen blir en fördelning av delvis modifierade arter. Du måste i förväg bestämma om analysen löser den fördelningen, eftersom en metod som validerats för en webbplats inte automatiskt rapporterar om fyra.
Är genetisk kodexpansion skalbar för peptidproduktion i kliniskt skede?
Skalbarhet beror på vilken rutt du väljer, och de två vägarna misslyckas olika. Cellfri proteinsyntes har visat utbyten i de intervall som rapporterats tidigare i denna artikel, men dessa siffror kommer från definierade experimentella system och överförs inte automatiskt till en GMP-process. Fastfassyntes skalar mer förutsägbart för kortare sekvenser men kan inte nå resterna som endast är SPPS. För arbete i kliniskt skede, den praktiska frågan är inte om kemin skalar utan om ditt analytiska paket kan bevisa lot-till-lot-sekvenstrohet på den skalan.
Slutsats
Kodonstrategin du väljer bestämmer felläget du ärver, så kontrollpaketet som bevisar sekvenstrohet måste specificeras före det första partiet, inte efter det. Det är tråden som går genom denna guide: utökade genetiska koder för anpassad peptiddesign är ett utvärderingsproblem innan de är ett syntesproblem.
De fyra beslut som en partner måste kunna försvara skriftligt är den icke-kanoniska aminosyran och dess undertryckande beteende i ditt sekvenssammanhang, bibliotekets design och hur den begränsar rutten, konjugationskemin och vad den lämnar intakt, och de analytiska acceptanskriterierna med deras metoder och gränser. Var och en avgränsar nästa.
Färdriktningen är mot ömsesidigt ortogonala par som används tillsammans, cellfria och extraktbaserade system som lämnar värdgenomet orört, och fyra-nukleotidkodon som förlänger det tillgängliga kodonutrymmet förbi standarden 64. Den ärliga varningen är att undertryckningseffektiviteten förblir beroende av ncAA och den omgivande sekvensen, och inte alla ncAA är kompatibla med varje rutt.
Använd checklistan i Nästa steg som grund för ditt första tekniska samtal.
Om författaren: [Författarens namn], [referenser], skriver om peptiddesign och analytisk kontrollstrategi för MOL Changes.
Avslöjande: MOL Changes tillhandahåller peptiddesign, syntes- och analystjänster, inklusive funktionerna som diskuteras i den här guiden.