De conversie is een herontwerp, geen toevoeging
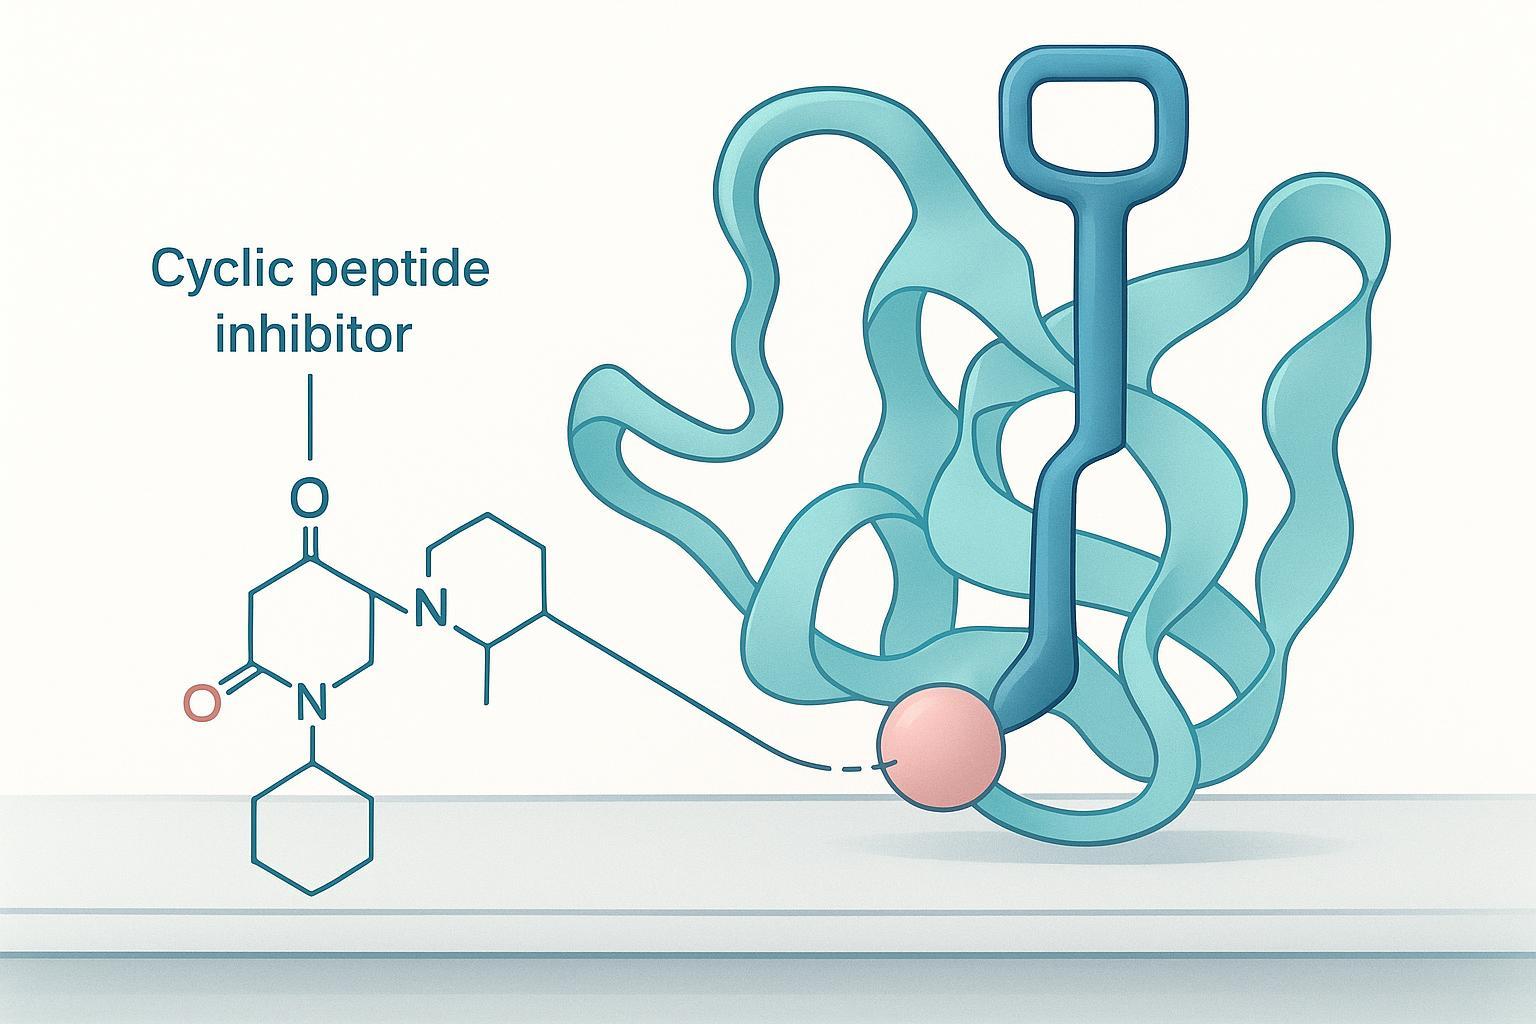
Een cyclisch peptide dat HIF-1α remt door de PAS-B-pocket te bezetten, is een sleutel die in één slot past. Als je er een afbreker van maakt, moet je een handvat aan die sleutel lassen: een linker plus een VHL-recruteringselement, zo gepositioneerd dat de ring nog steeds in de zak zit terwijl de nieuwe arm zich uitstrekt om de ligase te recruteren. De tanden kunnen niet veranderen. Al het andere kan.
Dat onderscheid drijft het hele project. In de ankerkast, de linker en het VHL-ligand werden ingebouwd als een op maat gemaakt bifunctioneel aminozuur en direct opgenomen tijdens de peptidesynthese in de vaste fase, in plaats van gehecht te zijn na cyclisatie (JACKS, Cyclische peptide-PROTAC's herstellen door VHL gemedieerde HIF-1α-afbraak bij hypoxie, 2026). Het praktische gevolg is dat het bevestigingspunt een ontwerpkeuze wordt die vaststaat tijdens de kettingmontage, geen variabele die je later op de bank afstemt.
Elke stroomafwaartse beslissing vloeit voort uit die toewijding: welke gradiënt het conjugaat oplost, welke conformationele controle bevestigt dat de ring het overleefd heeft, en welke test degradatie kan onderscheiden van louter bezetting.
Welke exitvector moet de linker dragen??
De selectie van de conjugatieplaats is de eerste beslissing die elke volgende beslissing beperkt, en de regel is eenvoudig uit te leggen: kies de positie die het minst waarschijnlijk de binding verstoort en waar de kans het grootst is dat deze wordt blootgesteld aan oplosmiddelen (Huidige strategieën voor het ontwerp van PROTAC-linkers, 2020). Wanneer een co-kristalstructuur van uw cyclische peptide gebonden aan het doelwit beschikbaar is, deze regel kan door inspectie worden beantwoord. Wanneer dit niet het geval is, inspectie kan de vraag niet beantwoorden, en door het tegendeel te doen, verliezen programma's maanden.
Diensten Het bevestigingspunt is ook geen derivatiseringsstap die u vastlegt nadat het peptide is geoptimaliseerd. Het is een ontwerpkeuze voor de kettingmontage, opgelost voordat de synthese begint, zoals het was in de ankerkast. Als u later van gedachten verandert, betekent dit dat u het peptide opnieuw moet synthetiseren, een zijketen niet bewerken.
De empirische rangschikkingsregel: rangschik kandidaat-vectoren op basis van wat ze allemaal behouden, in deze volgorde: doelaffiniteit, dan ternair-complex gedrag, dan degradatie. Een smalle SAR op een positie die aan oplosmiddelen leek te zijn blootgesteld, is een waarschuwing, geen lawaai. Deze positie is conformationeel belastend, en de ranglijst moet opnieuw worden gemaakt.
Het installeren van de linker en het E3-element
De routebeslissing staat voorop, omdat de conjugatie van on-hars en oplossing op verschillende plaatsen mislukt. Installatie op hars van een bifunctioneel aminozuur bouwt de linker in de keten zelf, dus het beschermende groepenschema moet de orthogonale handgreep van de linker intact houden Winkel elke volgende koppeling en de cyclisatiestap. Oplossingsconjugatie na cyclisatie is sneller te herhalen, maar het stelt het vrije peptide tweemaal bloot aan activeringschemie en laat je een mengsel van positionele isomeren zuiveren als het reactieve residu niet uniek is.
Het werk van Southampton laat zien wat die iteratie oplevert. De serie die begon met cyclo-CLLFVY verhuisde naar een kernkop van de tweede generatie, cyclo-CLLF(CF3)ALS(Br), met langere onnatuurlijke aminozuurlinkers die in de sequentie zijn ingebouwd in plaats van achteraf te worden toegevoegd (McDermott et al., 2025). Het inbouwen van de linker in de keten maakt de lengte van de linker tot een ontwerpvariabele in plaats van een zuiveringsprobleem.
Dat is van belang omdat de belangrijkste bedreiging voor de zuiverheid en vouwing van peptiden op deze route epimerisatie is, en het is mechanisch vermijdbaar. Door een aminozuur te activeren ontstaat een vlak oxazolon dat tijdelijk achiraal is op het α-koolstofatoom, dus reprotonatie kan de L- of de D-configuratie. Het risico neemt toe bij uitgebreide activering, zeer reactieve koppelingsreagentia, en geaccumuleerd geactiveerd tussenproduct, en residuen zoals fenylglycine, vooral cysteïne en histidine zijn gevoelig (Bachem; Epimerisatie bij peptidesynthese, 2023).
De omvang is routeafhankelijk, en het haalbaarheidswerk van één leverancier illustreert de spreiding in plaats van een benchmark te stellen: fragment-route conjugatie ruwweg geproduceerd 13% vorming van epimeer en werd stopgezet, terwijl de alternatieve route een epimerisatie van 2 à 3% liet zien, oplopend tot ongeveer 5% na zuivering, en lineaire SPPS gaven de hoogste opbrengst zonder dat er epimerisatie werd gedetecteerd (Bachem). Lees dat als een signaal over welke routeklassen het risico met zich meebrengen, niet als een tarief dat u op uw eigen reeks kunt verwachten. Over
Welke RP-HPLC-zuiverheidsgegevens u wel en niet kunnen vertellen
Eén hoofdpiekpercentage op 214 nm bevestigt noch correcte conjugatie, noch correcte vouwing. Het vertelt u dat de UV-absorberende soorten in uw monster elueren als één band op één gradiënt. Dat is een nuttig feit, en het is een kleiner feit dan de meeste programma's ermee behandelen.
Voor een grotere, meer hydrofoob conjugaat, de methode lost minder op dan voor het cyclische ouderpeptide. De linker en het E3-element voegen een hydrofoob oppervlak toe, de bewaartijd verschuift, en soorten die op de oudergradiënt van elkaar gescheiden waren, beginnen te co-elueren. Een gepubliceerd disulfide-gecycliseerd peptide-afbraakprogramma rapporteert duidelijk de voorbereidende praktijk ervan: één RP-HPLC-stap op a 0.1% TFA water/acetonitrilgradiënt loopt 26-43% over 40 minuten bij 10 ml/min, detectie bij 220 nm, oxidatie gevolgd door massaspectrometrie naast HPLC, en een laatste HPLC-kwaliteitscontrole vóór lyofilisatie (Grenzen in de immunologie, 2023). Merk op wat dat document niet vermeldt: elke zuiverheidsdrempel. Het nummer is een procesuitvoer, geen specificatie.
Leveranciers specificeren doorgaans een RP-HPLC-zuiverheid van ≥95% als basis voor biologische evaluatie, ≥98% voor kwantitatief bindings- en dosis-responswerk, en ≥99% voor referentie-standaardwerk, met zuiverheid gedefinieerd als hoofdpiekoppervlak over het totale piekoppervlak door UV-detectie bij 214-220 nm (GenScript; Creatieve Proteomics, 2025). Behandel deze banden als een aankoopconventie in plaats van als een gemeten bevinding over uw molecuul. Ze beschrijven wat een leverancier zal certificeren, niet wat uw conjugaat nodig heeft.
De kloof is van belang omdat de zuiverheid en vouwing van peptiden verschillende vragen zijn, en RP-HPLC beantwoordt alleen de eerste. Een co-eluerend epimeer, een verkeerd gevouwen disulfide-isomeer, of een niet-gereageerde ouder die toevallig op dezelfde retentietijd loopt, allemaal aanwezig als een schone enkele piek. Massale identiteit, stereochemie, en oplossingsconformatie vereisen elk een orthogonale methode.
Lees de matrix als dekkingscontrole, geen ranglijst. RP-HPLC omvat hydrofobiciteit en zuiverheid. LC-MS en HRMS bestrijken massa-identiteit, zo bevestig je dat de linker daadwerkelijk is geïnstalleerd. Chirale LC omvat stereochemie, dat is hoe je epimerisatie op de conjugatieplaats opvangt. NMR- en CD-coveroplossing-conformatie, zo onderscheid je een gevouwen conjugaat van een ongevouwen conjugaat. Geen enkele rij beslaat meer dan één kolom, en een programma dat alleen de eerste rij rapporteert, heeft bewijs voor precies één van de vier vragen.
De praktische consequentie voor selectie van conjugatieplaatsen: als uw analytische pakket één RP-HPLC-trace is, je kunt nog niet zeggen of de door jou gekozen uitgangsvector het door jou ontworpen conjugaat heeft geproduceerd. Voeg de orthogonale methoden toe voordat u de route vastlegt, niet nadat een bindingstest plat terugkomt.
Vouw- en conformationele verificatie
Peptidesynthese Cyclisatie beperkt de ruggengraat, maar het garandeert niet dat de bioactieve conformatie de toevoeging van de linker overleeft. Dat onderscheid is de reden waarom conformationeel bewijs orthogonaal moet zijn ten opzichte van zuiverheidsbewijs: elke methodeklasse beantwoordt een vraag die de anderen niet kunnen.
Chirale LC lost stereochemie op, dus het vertelt je of het conjugaat racemiseerde met de residuen waar je om geeft. CD-rapporten over de secundaire structuur van oplossingen, en NMR-rapporten over de specifieke contacten die de gebonden vouw definiëren. Geen van deze vervangt een ander, en geen ervan vervangt een functionele uitlezing. Hetzelfde principe geldt voor de testfase: een ternair-complex signaal alleen is onvoldoende, en cellulaire DC50/Dmax-waarden alleen zijn eerder fenotypisch dan mechanistisch (Methoden om het moleculaire mechanisme te bestuderen en het ontwerp van afbraakproducten te stimuleren, opgehaald 2026-05-14).
Sleutel afhaalmaaltijd: Hoge HPLC-zuiverheid is geen correct conjugaat. Een piek die schoon en massa-bevestigd is, kan nog steeds de verkeerde vouw in de testfase hebben.
Voor uw datapakket, die kloof is het risico om te dichten. Een conjugaat dat zuiverheid en massa-identiteit doorstaat maar nooit conformationeel is gecontroleerd, brengt een niet-gekwantificeerd risico met zich mee, en het testteam erft het. Behandel de zuiverheid en vouwing van peptiden als twee afzonderlijke bewijslijnen, elk met een eigen werkwijze en een eigen acceptatiecriterium, voordat het materiaal wordt vrijgegeven aan de biologie.
De functionele testbewijsketen
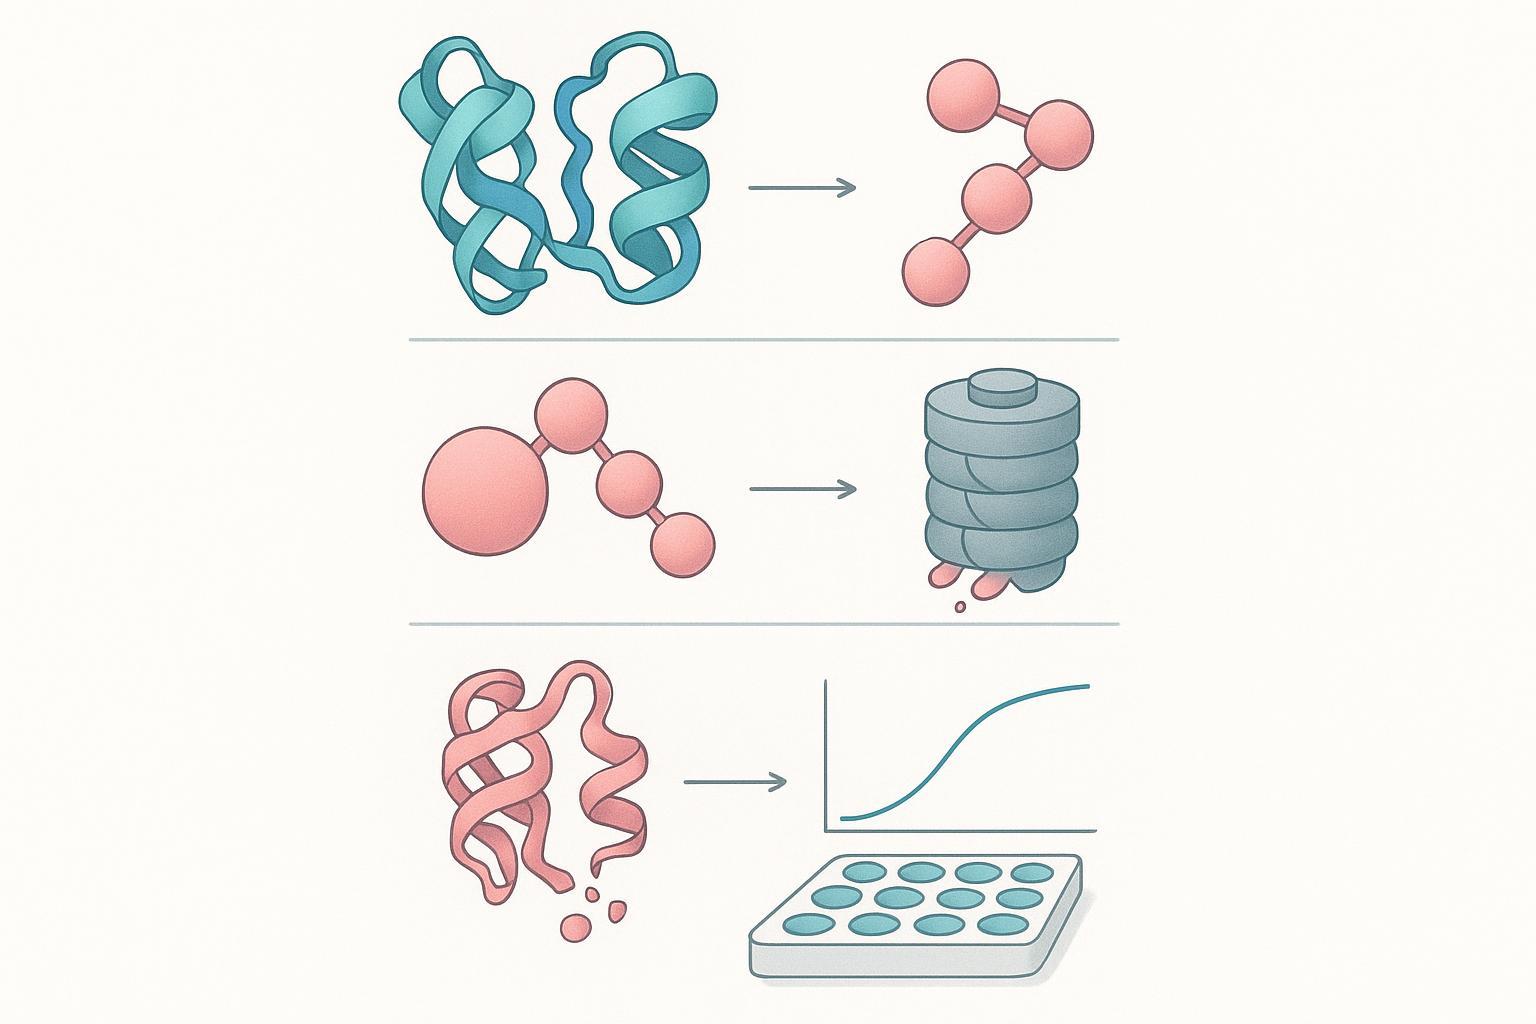
Een degradatieclaim is een mechanismeclaim, en geen enkele test draagt dit uit. De bewijsketen bestaat uit vier schakels, en een recensent zal naar alle vier zoeken: ternaire complexvorming, doel-ubiquitinatie, proteasomale afhankelijkheid, en een kwantitatieve potentie- en plafonduitlezing. Als uw pakket stopt na de eerste link, je hebt blijk gegeven van binding, niet degradatie.
Werk verderop in de keten aan de hand van uw eigen gegevens. Ternair complex: een co-kristal of een biofysische test die het doelwit laat zien, PROTAC en E3-ligase in één assemblage. Ubiquitinatie: een directe of indirecte uitlezing dat het doelwit zelf ubiquitine verwerft. Proteasomale afhankelijkheid: redding door een proteasoomremmer. Potentie en plafond: DC50 en Dmax uit dezelfde dosis-responsserie.
De derde link wordt het vaakst overgeslagen, en het is goedkoop om te sluiten. In het cyclische peptidewerk, PD-L1-verlies bij 2.5 µM na 4 uur werd geblokkeerd door MG132, dat is wat degradatie scheidt van een stroomafwaarts transcriptioneel effect (Grenzen in de immunologie, 2023). Doelbetrokkenheid kan op dezelfde manier worden weergegeven: cellulaire thermische verschuivingstesten verplaatsten DHHC3 van 49 °C in onbehandelde cellen tot 55 °C in met peptide behandelde cellen, bewijs dat de verbinding het eiwit bereikt voordat enige afbraak wordt gemeten (Grenzen in de immunologie, 2023).
Dat diagram is het sterkste gekwantificeerde argument in dit artikel om het E3-element als een ontwerpvariabele te behandelen in plaats van als een bijzaak.. CRBN omruilen voor VHL, met dezelfde kernkopchemie, DC50 verplaatst van 0.103 µM tot 1.92 µM, en de IAP-arm naar 7.530 µM (Celdood & Ziekte, 2024). Bijna twee ordes van grootte scheiden de beste en de slechtste arm in dezelfde cellulaire test.
Nu de kloof. Dezelfde serie rapporteert DC50-waarden maar geen Dmax, dus de potentie is vergelijkbaar voor alle armen, terwijl het plafond van degradatie dat niet is (Celdood & Ziekte, 2024). Een verbinding kan krachtig zijn en toch het grootste deel van het doelwit laten staan. Wanneer je een pakket overhandigt van scheikunde tot biologie, vraag naar de volledige dosis-responscurve, niet het enige nummer: functionele assayondersteuning betekent de curve, de reddingscontrole, en de verlovingstest samen, want dat is waar een recensent om zal vragen als het gaat om degradatie van HIF-1α of welk ander doel dan ook.
De zuurstofstatuslimiet op de ankerbehuizing
Het cyclische ankerpeptide PROTAC herstelt de door VHL gemedieerde afbraak van HIF-1α op robuuste wijze 3% O₂, en vertoont geen netto degradatie bij 1% O₂. Dat is geen potentie-mislukking. Onder de gerapporteerde omstandigheden blijft de degrader betrokken- en degradatie-competent bij 1% O₂, maar de hersynthese van het doelwit overtreft de klaring, zodat de steady-state pool nooit daalt (JACKS, Cyclische peptide-PROTAC's herstellen door VHL gemedieerde HIF-1α-afbraak bij hypoxie, 2026).
Lees dat als een ontwerpregel en niet als een voetnoot: een afbraakuitlezing is alleen interpreteerbaar aan de hand van de hersynthesesnelheid van het doelwit in dezelfde cellulaire context. Een DC50 gemeten bij de ene zuurstofspanning gaat niet over op de andere, omdat het getal dat u hebt gemeten een nettosaldo is, geen klaringsconstante.
Voordat u uw conjugaat vergelijkt met een gepubliceerde DC50, bevestig de zuurstofspanning, de cellijn, en het hersynthesegedrag van het doelwit onder diezelfde omstandigheden.
Veelvoorkomende misvattingen die programma’s tijd kosten
Vier beslissingsfouten zijn verantwoordelijk voor het grootste deel van de verloren tijd in een cyclisch peptide PROTAC-ontwerpprogramma. Elk ervan vervangt een goedkopere meting voor de vraag die het programma eigenlijk moet beantwoorden.
Hoge HPLC-zuiverheid is geen correct conjugaat. Een enkele scherpe piek op 95% vertelt u dat het materiaal homogeen is volgens één detectiemethode. Het vertelt u niet dat de linker op het beoogde residu zit, dat de stereochemie de conjugatie overleefde, of dat de E3-ligand intact is. De oplossing is orthogonale karakterisering: LC-MS voor massabevestiging, en een tweede chromatografische of spectroscopische methode die het conjugaat scheidt van zijn positionele isomeren.
Behouden doelbinding betekent niet dat degradatie wordt bereikt. Een bindende test rapporteert de bezetting. Degradatie vereist alomtegenwoordigheid, proteasomale betrokkenheid en doelverlies, geen daarvan wordt door een bindende uitlezing gedetecteerd. De oplossing is om binding als een poort te beschouwen, geen eindpunt, en om kwantificering van het doeleiwit te vereisen voordat degradatie wordt geclaimd.
Een ternair complex in een biofysische test is geen cellulaire afbraak. Ternaire complexvorming is noodzakelijk maar niet voldoende; een stabiel complex kan nog steeds niet alomtegenwoordig zijn. De oplossing is om de claim naar de cellen te brengen en de doeleiwitniveaus rechtstreeks te meten.
Een DC50 zonder Dmax is een gedeeltelijk potentiebeeld. Potentie en omvang zijn afzonderlijke eigenschappen, en een verbinding die afbreekt 40% van het doel bij verzadiging is een ander voorstel dan een voorstel dat helder wordt 90%. De oplossing is om beide te rapporteren, altijd, uit dezelfde dosis-responsreeks.
Een beslissingskader voor de conversie
Voer deze vijf controles in volgorde uit tegen uw eigen programma. Aan elk is een faalmodus gekoppeld, en ze zijn stuk voor stuk goedkoper te repareren vóór de volgende.
-
Rangschik kandidaat-exitvectoren empirisch, niet door inspectie. Breng dezelfde cyclische remmer tot expressie met de linker op twee of drie verschillende posities, voer de conjugaatreeks door de doelbindingstest, en laat de rangorde de winnaar kiezen. Mislukkingsmodus: het kiezen van de vector die er op het model het meest toegankelijk uitziet en na het opschalen ontdekken dat de binding verdwenen is.
-
Bepaal de route voordat u de linker vastlegt. Conjugatie op hars versus oplossing bepaalt hoeveel risico op epimerisatie u loopt, behandel het dus als een routebeslissing en niet als een late optimalisatie. Mislukkingsmodus: een conjugaat dat zuiver zuivert maar de stereochemie heeft verloren waarvan de bindingsgegevens afhankelijk waren.
-
Zuiveren, karakteriseer vervolgens orthogonaal. RP-HPLC-zuiverheid en massabevestiging beantwoorden verschillende vragen, en geen van beide rapporteert over exterieur. Mislukkingsmodus: een vrijgavecriterium met één methode dat een verkeerd gevouwen batch doorstaat.
-
Controleer het vouwen voordat u het assaybudget uitgeeft. Circulair dichroïsme, NMR, of een structuurgevoelige bindingsuitlezing bevestigt dat het conjugaat nog steeds de beoogde conformatie inneemt.
-
Bouw de testketen op voordat u degradatie claimt. Ternaire complexvorming, doelgerichte betrokkenheid, Synthetische peptiden en een degradatie-uitlezing zijn drie afzonderlijke claims, en een binair bindend resultaat ondersteunt alleen het eerste.
Sleutel afhaalmaaltijd: Conformationele verificatie is het item dat programma's het vaakst overslaan. Zuiverheidsgegevens en massabevestiging kunnen u niet vertellen of het conjugaat correct is gevouwen, dus een batch kan elke analytische poort passeren en toch functioneel mislukken.
De volgorde is belangrijker dan welke stap dan ook: een programma dat vectoren op de eerste plaats rangschikt en de conformatie verifieert vóór testwerkzaamheden, vermijdt het opnieuw synthetiseren van een conjugaat dat het al heeft gekarakteriseerd.
Volgende stappen
Als een PROTAC-ontwerpprogramma voor cyclische peptiden op uw routekaart staat, de nuttige volgende stap is een verkennend gesprek in plaats van een aankoopbeslissing. Neem drie dingen mee: uw ankervolgorde en eventuele structurele gegevens, de exitvector die u hebt gekozen of de kandidaten die u weegt, en de testuitlezingen die uw team zal accepteren als bewijs van degradatie. Deze drie inputs bepalen of de conversie een eenvoudige linkerinstallatie is of een herontwerp dat nieuwe chemie nodig heeft.
Voor teams die een synthese- en karakteriseringspartner nodig hebben, MOL Changes geeft mogelijkheden weer voor de synthese van vaste fase en microbiële fermentatie, zuivering door gecontroleerde omgevingen, HPLC/MS en kwaliteitscontrole van steriliteit, en mg-tot-kg-schaal. Dat bereik is het belangrijkst wanneer een conjugaatprogramma zich verplaatst van materiaal op analytische schaal naar de hoeveelheden die een functionele testreeks vereist. Peptideproductie
Sleutel afhaalmaaltijd: De hier beschreven constructen zijn onderzoeksreagentia. Elke klinische vertaling vereist onafhankelijke validatie, en niets in deze gids kan uw eigen analytische en biologische bevestiging vervangen.
Openbaring: De organisatie van de auteur levert diensten op het gebied van peptidesynthese en karakterisering van het soort dat in dit artikel wordt besproken.
Bespreek een aangepast conjugaatprogramma. Deel uw ankerreeks, doelexitvector en vereiste assay-eindpunten, en vraag het analytische documentatiepakket aan (zuiverheid methode, gradiënt, MS-bevestigings- en vouwgegevens) naast een verkennend gesprek. Start een programmagesprek.
Veelgestelde vragen
Wat moet ik doen als er geen co-kristalstructuur van mijn cyclische peptide aan het doelwit is gebonden?
Rangschik de gehechtheidsposities van kandidaten empirisch in plaats van te wachten op een structuur. Breng het peptide tot expressie met de linker op elk kandidaatresidu, meet dan in volgorde: behouden doelaffiniteit, ternaire complexvorming met de E3-ligase, en cellulaire afbraak. Een positie die vervanging tolereert, behoudt zijn affiniteit; iemand die dat niet doet, wordt gediskwalificeerd. Beschouw nauwe structuur-activiteitrelaties op een kandidaatpositie als een stopsignaal, omdat de exit-vector waarschijnlijk begraven ligt in de bindingsinterface.
Is een langere linker altijd beter voor een cyclisch peptide PROTAC?
Nee. De lengte en samenstelling van de linker veranderen de ternair-complexe geometrie, en die geometrie stimuleert de potentie in beide richtingen. De vaak geciteerde 5-15 Het atom-venster is afkomstig van secundaire samenvattingen waarvan de primaire pagina's tijdens deze run niet konden worden gelezen, Beschouw daarom elk specifiek bereik als een starthypothese om in een kleine reeks te testen, geen specificatie om tegen te ontwerpen.
Hoe kan ik op mijn analytische gegevens onderscheid maken tussen epimerisatie en een vouwprobleem??
Gebruik orthogonale methoden, omdat een enkele RP-HPLC-hoofdpiek de twee faalmodi niet kan scheiden. Chirale LC of NMR lost de stereochemie op bij het aangetaste residu; circulair dichroïsme en NMR rapporteren over oplossingsconformatie. Epimerisatie is eerder een bekend gevaar van de conjugatiechemie dan een gespreksonderwerp van de leverancier, dus wanneer de zuiverheid en vouwing van de peptiden er allebei acceptabel uitzien en de activiteit nog steeds afneemt, voer de stereochemische controle uit voordat u de linker opnieuw ontwerpt.
Wat is de minimale test die is ingesteld om afbraak te claimen in plaats van remming??
Vier metingen: ternair-complexvorming, doel-ubiquitinatie, proteasomale afhankelijkheid bevestigd door redding van het MG132-type, en kwantitatieve DC50 en Dmax uit dosis-responscurves. Ternair complex alleen is onvoldoende, aangezien binding zonder alomtegenwoordige overdracht niets bewijst over degradatie. Alleen DC50 en Dmax zijn fenotypisch: ze laten zien dat het doelwit verdween zonder aan te tonen dat het proteasoom dit veroorzaakte. Verslag samen de set, en vermeld voor elk de cellijn en het tijdstip.