Wat uitgebreide genetische codes voor aangepast peptideontwerp feitelijk veranderen
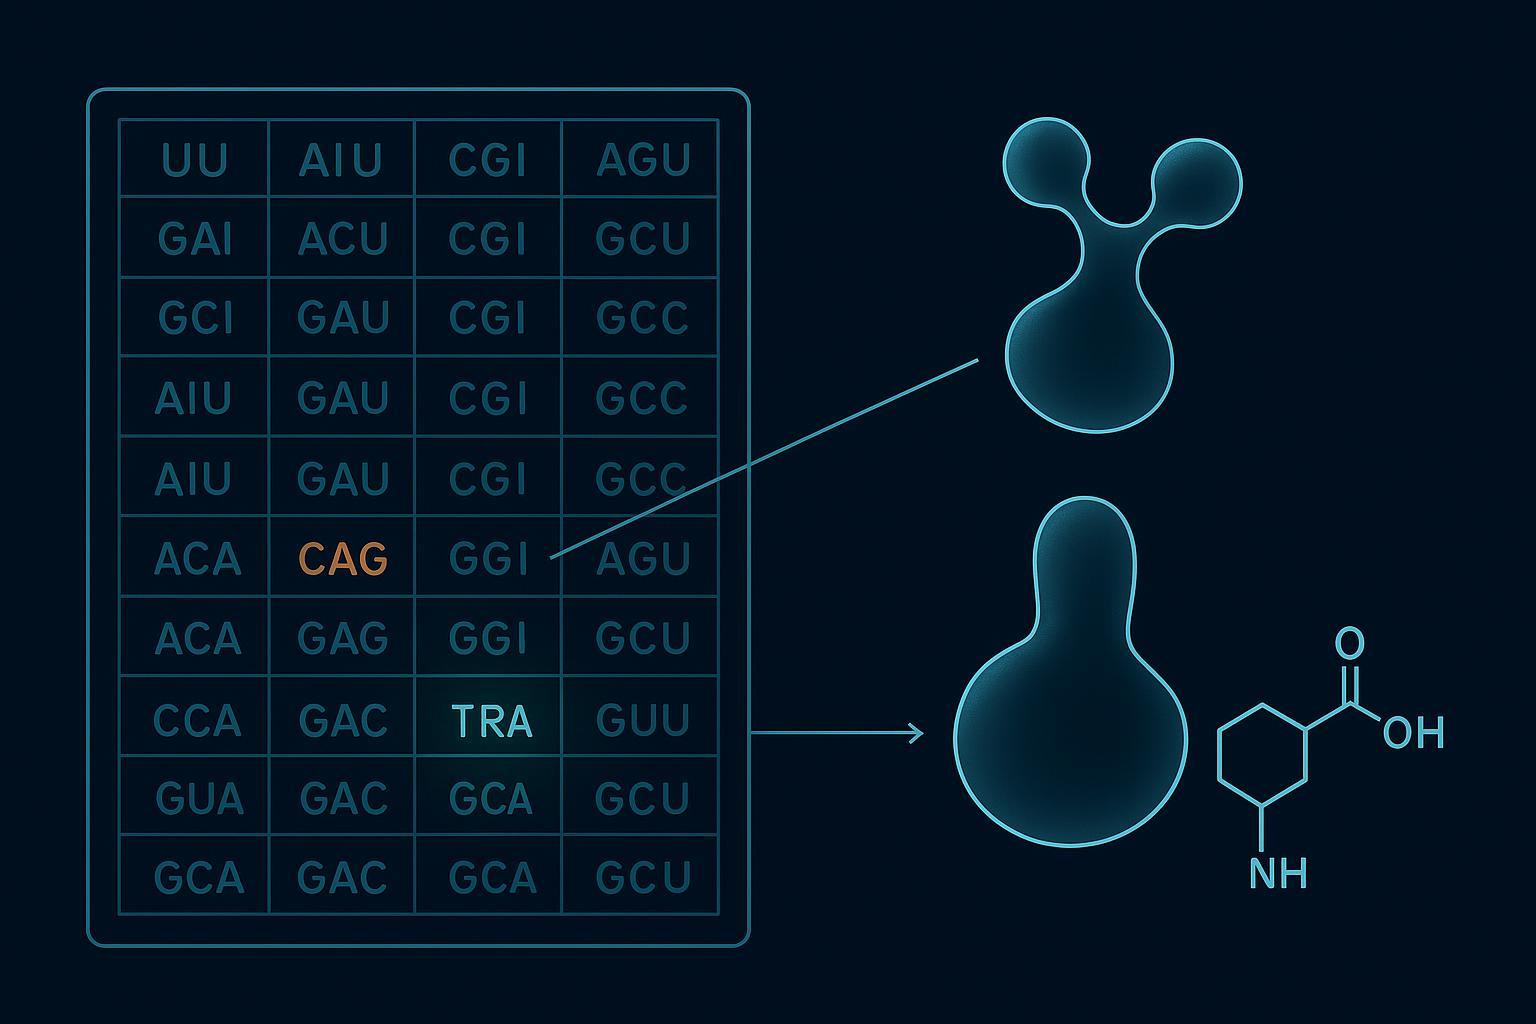
De standaard genetische code wijst toe 64 codons: 61 sense codons en 3 stopcodons, en elk sense-codon specificeert een van de 20 canonieke aminozuren (Addgene genetische code-uitbreidingscollectie, laatst beoordeeld 19 November 2025). Een uitgebreide genetische code herschrijft die opdracht. Eén of meer codons worden door middel van codonhertoewijzing omgeleid naar een niet-canoniek aminozuur, plaatsspecifiek geïnstalleerd door een orthogonaal tRNA / aminoacyl-tRNA-synthetase-paar dat alleen zijn eigen ontworpen tRNA oplaadt en niets anders in de gastheer.
Die definitie doet er minder toe dan de faalwijze die zij vastlegt. Amber (UAG) onderdrukking leest via een stopcodon, het concurreert dus rechtstreeks met de releasefactor 1. Wanneer onderdrukking die race verliest, het resultaat is voortijdige beëindiging en een ingekort product, een verlies dat hergecodeerde of RF1-knock-out hosts specifiek zijn ontworpen om te verminderen (Natuur Biotechnologie, 11 september 2024). Het opnieuw toewijzen van een sense-codon mislukt op een andere manier: het opnieuw toegewezen codon concurreert nog steeds met zijn oorspronkelijke betekenis, dus het product arriveert als een mengsel dat canonieke verkeerde stoffen bevat in plaats van een korte keten.
Sleutel afhaalmaaltijd: Onderdrukking van amber mislukt door afkapping; hertoewijzing van sense-codon mislukt door mengsel. Opbrengst en zuiverheid bewegen zich dus onafhankelijk van elkaar, en de faalmodus die u erft, wordt bepaald door de codonstrategie die u kiest, niet door hoe bekwaam de leverancier is.
[DIAGRAM: gelabelde tabel met 64 codons met UAG en één sense-codon gemarkeerd, elk met een pijl naar het orthogonale tRNA/synthetase-paar]
Waarom de Toolbox sneller ging dan de recensies
Het referentiemateriaal waar de meeste teams naar streven, blijft achter bij de chemie. A 2025 beoordeling zet de teller op over 300 niet-canonieke aminozuren die met succes worden gebruikt bij de uitbreiding van genetische code (Natuurcommunicatie, 29 september 2025), terwijl de meest geciteerde recensie in de zoekresultaten over dit onderwerp dateert uit 2014. De hulpbronnen op plasmideniveau zijn dichter bij elkaar gebleven: Addgene's groeiende GCE-collectie bevat grofweg een lijst 150 synthetaseplasmiden en 26 bacteriële stammen, met inhoud die voor het laatst is beoordeeld op 19 November 2025 (Addgene). Als uw selectieshortlist is samengesteld op basis van een tien jaar oude recensie, het beschrijft een kleinere gereedschapskist dan de bestaande.
Hoe uitgebreide genetische codes de niet-canonieke aminozuurselectie hervormen
Diezelfde codonstrategie bepaalt ook de voorwaarden voor niet-canonieke aminozuurselectie, waar paarkeuze, geen residukeuze, is de bindende beperking. Vier factoren bepalen welk tRNA-synthetasepaar u kunt gebruiken: substraat past, codon strategie, gastheer organisme, en of u meer dan één ncAA tegelijk moet coderen. Werk ze in die volgorde door en de meeste schijnbare vrijheid in de residucatalogus verdwijnt.
Twee platforms domineren. De Methanocaldococcus jannaschii TyrRS/tRNA^Tyr-paar accepteert tyrosine-achtige en aromatische zijketens. Het pyrrolysyl-tRNA-synthetase-scaffold en zijn ontwikkelde varianten nemen lysine-achtige en omvangrijke residuen, en tolereer meer structurele variatie. Merk op dat RF1 knock-out een hoststrategie is die de onderdrukkingsefficiëntie verhoogt, geen derde paar.
|
Diensten Functie |
M. jannaschii TyrRS/tRNA^Tyr |
PylRS/tRNA^Pyl-varianten |
|---|---|---|
|
Substraat reikwijdte |
Tyrosine-achtig, aromatisch |
Lysine-achtig, omvangrijk, structureel divers |
|
Codon strategie |
Amber (UAG) onderdrukking |
Amber, oker, of sense-codon-hertoewijzing |
|
Host-compatibiliteit |
E. coli, gist, zoogdiercellen |
E. coli, zoogdiercellen, celvrije systemen |
|
Geschikt voor multiplexen |
Beperkt; overlappende substraattolerantie |
Beter geschikt voor orthogonale paaruitbreiding |
Bij multiplexen beweegt het veld. A 2024 codoncompressiestrategie geïdentificeerd 12 onderling orthogonale tRNA-synthetaseparen die compatibel zijn met de bekende GCE-hulpbronnenset, wat van belang is als uw ontwerp twee of meer verschillende ncAA's in één keten nodig heeft.
Dan is er de grens tussen wat een ribosoom kan installeren en wat alleen SPPS kan. Zijketenmodificaties op een a-aminozuurskelet zijn GCE-compatibel. β-aminozuren, A,a-digesubstitueerde residuen, in depsipeptiden, en veel N-gemethyleerde residuen zijn dat niet; ze zijn alleen SPPS of alleen in vitro. Als uw doelresidu op die lijst staat, geen enkele paarselectie zal het redden.
Efficiëntie van onderdrukking lezen Eerlijk gezegd
De onderdrukkingsefficiëntie is een bereik, en het bereik betekent alleen iets als de spanning en de verslaggever eraan vastzitten. Eerdere systemen leverden ongeveer 10-20% op voor een enkel ambercodon. Geoptimaliseerde en geëvolueerde systemen bereiken 50-117%, afhankelijk van de context, en 76-104% in de RF1-verwijderde C321-stam. Deze figuren beschrijven verschillende constructies, het is dus geen ladder die je kunt beklimmen door het hoogste getal te kiezen.
De efficiëntie van de integratie is ook niet dezelfde maatstaf als de bijna verwante readthrough. Het doorlezen loopt ongeveer 1% in Top10, over 3% in BL21, en tot 17% in MG1655, reikend tot zo hoog als 47.5% op een bepaalde oranje locatie op een RF1-verwijderde achtergrond. Men meet hoeveel ncAA u installeert; de andere meet hoeveel verkeerd aminozuur je ernaast installeert.
Het praktische gevolg: een specificatie die slechts een percentage noemt, zonder de soort en de verslaggever te noemen, is geen specificatie. Vraag om beide voordat u een efficiëntiecijfer accepteert.
Peptidebibliotheken ontwerpen met niet-canonieke aminozuren
Zodra het paar is gerepareerd, het weergaveplatform dat u kiest, bepaalt het plafond waarop niet-canonieke aminozuren uw bibliotheek überhaupt kan bevatten. mRNA-weergave en RaPID scoren het hoogst op de ncAA-tolerantie omdat de hele cyclus in vitro verloopt: flexizyme laadt het tRNA rechtstreeks op, dus het ribosoom hoeft nooit te concurreren met een gastheersynthetase, en met de ruggengraat gemodificeerde residuen blijven in het spel. De weergave van ribosomen scoort hoog, maar is systeemafhankelijk, omdat de tolerantie verschuift met het lysaat en de instelling van de release-factor. Faagdisplay blijft werkbaar, omdat faagdisplay niet-canonieke residuen kan vervoeren via voor amber coderende helperfaag, hoewel de gastmachine beperkt welke residuen overleven. Gistweergave is de meest beperkte van de vier.
Positie is net zo belangrijk als platform. Positief versus mondiale ncAA-diversificatie verdeelde de ontwerpruimte: enkele of enkele gedefinieerde locaties zijn geschikt voor een mechanistische sonde of één conjugatiehandvat en blijven gemakkelijk te karakteriseren, terwijl diepgaande substitutie geschikt is voor stabiliteits- of proteaseresistentietests en veel moeilijker is om residu voor residu te verifiëren.
Waar bibliotheekontwerp en routeselectie samenkomen
Een bibliotheek die is opgebouwd rond een met de ruggengraat gemodificeerd residu kan helemaal niet worden geproduceerd door uitbreiding van de genetische code, dus de weergavebeslissing en de productiebeslissing moeten samen worden genomen in plaats van in volgorde. De stabiliteitsuitbetaling maakt die beperking de moeite waard om te accepteren. In één remmerreeks, cyclische β2,3-residuen zorgden ervoor dat de serumhalfwaardetijd voorbij was 168 uur om 37 °C in menselijk serum, tegen 4.6 uur voor de overeenkomstige alaninevariant; een tweede steiger in hetzelfde werk bereikt 48 uur tegen Winkel 4.2 uur. N-methylering verlengde de stabiliteit van proteïnase-K 6 minuten tot ongeveer 110 minuten in zijn eigen test, en D-aminozuursubstituties verplaatsten de halfwaardetijd van minuten naar uren. Geen van deze cijfers generaliseert naar peptiden als klasse: elk behoort tot zijn eigen schavot en test. De praktische consequentie is smal en stevig. Als uw stabiliteitsdoel een aanpassing van de ruggengraat vereist, de route wordt voor u gekozen, en de bibliotheek moet vanaf het begin binnen die grenzen worden ontworpen.
Sitespecifieke vervoegingsstrategieën mogelijk gemaakt door uitgebreide codes
Die routebeslissing leidt rechtstreeks tot vervoeging, waar een ncAA-handvat positionele controle koopt die geen enkel canoniek residu kan evenaren, en het verandert de faalwijze in plaats van falen te elimineren. Een bioorthogonaal handvat geïnstalleerd op een gedefinieerde positie geeft de hoogste positionele controle en de laagste off-target belasting van elke locatiespecifieke peptideconjugatiestrategie, maar de mislukking die u dan beheert, is een onvolledige opname of niet-gereageerd uitgangsmateriaal, niet verkeerd gericht. Cysteïne is chemoselectief en goedkoop, maar toch over-alkylering, oxidatie en disulfide-versleuteling zijn routine. Lysinekoppeling levert regio-isomerenmengsels op. De N-terminale chemie verbetert ten opzichte van lysine, maar blijft op volgorde- en contextafhankelijk.
|
Scheikunde |
Selectiviteit |
Kinetiek |
Koper |
Mislukkingsmodus die het produceert |
|---|---|---|---|---|
|
SPAAC (azide + cyclooctyn) |
Hoog |
Gematigd |
Niet vereist |
Handgreep van niet-gereageerd azide |
|
CuAAC (azide + alkyn) |
Hoog |
Snel |
Vereist |
Door koper gemedieerde nevenreacties |
|
Tetrazine-TCO |
Peptidesynthese Hoog |
Snelste |
Niet vereist |
Gehydrolyseerde tetrazine |
|
Elektrofiele ncAA-cyclisatie |
Hoog als de geometrie vooraf is georganiseerd |
Intramoleculair |
Niet vereist |
Concurrerend intermoleculair product |
Het menu is kort. SPAAC is kopervrij en operationeel eenvoudig; CuAAC is het meest robuust, maar kopergevoeligheid is het risico; tetrazine-TCO labelt het snelst; en elektrofiele ncAA-cyclisatie is intramoleculair en schoon wanneer de geometrie vooraf is georganiseerd, zoals gerapporteerd dubbel bio-orthogonale ncAA-handvatten (Natuurcommunicatie, 2023).
Kiezen tussen bioorthogonale conjugatie en natieve chemische ligatie
Native chemische ligatie en ncAA-conjugatie lossen verschillende problemen op en zijn geen vervangers. NCL is de route wanneer het doel een backbone-modificatie vereist, een D-residu, of een segment dat geen enkel orthogonaal paar zal opladen; de vereiste ervan is een levensvatbare ligatieverbinding en een thioestersegment. ncAA-conjugatie is de route wanneer het doelwit een standaard α-skeletpeptide is dat één gedefinieerd bevestigingspunt nodig heeft, en de vereiste ervan is een paar waarvan de substraatscope de handle accepteert plus een host of extract dat de concurrerende canonieke doorlezing onderdrukt.
Het praktische gevolg: neem de conjugatiebeslissing op hetzelfde moment als de ncAA-beslissing. Een handvat dat het gekozen paar niet oplaadt, is een herontwerp, geen vervanging.
Analytische controles die de sequentiegetrouwheid bewijzen
Welke vervoegingsroute u ook kiest, het controlepakket is wat een syntheseclaim omzet in een verdedigbare specificatie, en het moet ontworpen zijn voordat het eerste lot wordt gemaakt, na een afwijking niet gemonteerd. Voor elk peptide dat een niet-canoniek residu draagt, De analytische controles op het gebied van sequentiegetrouwheid berusten op vijf elementen: bevestiging van de exacte massa van het intacte peptide plus sequentielokaliserende fragmentionen die het gemodificeerde residu omspannen door LC-MS/MS; kwantificering van de integratie-efficiëntie, dat wil zeggen de fractie van het peptide dat de ncAA draagt versus canonieke misincorporants of niet-gelabeld product; een diastereomeer/epimeercontrole tegen een synthetische referentie of een orthogonale chirale of retentietijdmethode, omdat standaard LC-MS epimeren vaak niet kan onderscheiden; validatie van orthogonale vertaalsystemen met negatieve controles en geen detecteerbare off-target readthrough; En, voor ncAA's met element-tags, zoals selenium- of boorvarianten, aminozuuranalyse of ICP-MS (2026 beoordeling van precisiebioconjugatie en plaatsspecifieke opname, opgehaald 2026-02-04).
Acceptatiecriteria instellen vóór de eerste partij
Elk besturingselement wordt alleen nuttig als het een nummer draagt. Verbind de massanauwkeurigheid met het residu dat wordt bevestigd, koppel de incorporatie-efficiëntiedrempel aan het oplossend vermogen van de test die deze meet, en vereisen dat de epimeercontrole de referentiestandaard noemt waarmee deze wordt vergeleken. Waarbij het peptide een parenterale kandidaat is, de farmacopeiële limiet is dosisafhankelijk: USP <85> stelt de endotoxinelimiet in op K/M, met K= 5 EU/kg/uur voor niet-intrathecale routes en K = 0.2 EU/kg/uur intrathecaal, uitgedrukt per mg of per ml van de maximale dosis voor de mens. ik Q2(R2) stelt de validatieparameters in, en de MHRA ALCOA-principes vormen een kader voor de data-integriteitsverwachtingen daaromheen.
Een controle die niet vóór de eerste partij in de specificatie is opgenomen, is een controle waarover u na een afwijking zult onderhandelen.
Opschaling: SPSS, CFPS en lot-tot-lot-getrouwheidsrisico
Die controles moeten vervolgens de opschaling overleven, omdat de route die uw onderzoeksbatch heeft geproduceerd niet automatisch de route is die uw klinische batch produceert, en het getrouwheidsrisicoprofiel verandert daarmee. Vaste fase peptidesynthese werkt met milligrammen tot grammen per batch, met voorbereidende en industriële workflows die tientallen tot honderden grammen kunnen bereiken, en enkele reeksen op kilogramschaal. Celvrije systemen leveren doorgaans mg per liter: over 96 ± 3 mg/L voor een eiwitdrager 40 identieke niet-canonieke aminozuren, terwijl een geoptimaliseerd RF1-deficiënt extract ongeveer bereikte 1,780 ± 30 mg/l voor sfGFP (celvrije ncAA-opnameliteratuur, 2020). De schaalkloof tussen celvrije en vaste-faseroutes is reëel, en het geeft vorm aan welke trouwrisico's in elke fase domineren.
Uit die splitsing vloeien twee lot-tot-lot-risico's voort. Onder amberonderdrukking, producten voor afkapping en doorlezen variëren afhankelijk van de hoststatus, het onzuiverheidsprofiel kan dus verschuiven tussen fermentatieruns, zelfs als de doelband er onveranderd uitziet. Onder hertoewijzing van sense-codons, de verhouding tussen niet-canoniek en canoniek kan afwijken, terwijl de totale opbrengst gelijk blijft, wat betekent dat een vrijgavetest met alleen opbrengst het niet zal detecteren.
Het praktische gevolg: de getrouwheidscontroles uit de vorige paragraaf horen thuis in de vrijgavespecificatie voor ieder lot, niet alleen in de kwalificatiebatch.
Wat u aan een partner moet vragen voordat u zich engageert
Neem zes vragen mee in het gesprek. Welk niet-canonieke aminozuur en orthogonaal paar? Welke codonstrategie, onderdrukking van amber of hertoewijzing van sense-codons? Welke gastheer of celvrij extract, en wat zijn de gedocumenteerde onderdrukkingsprestaties ervan? Welke vervoegingsroute, en behoudt het het opgenomen residu?? Welke van de vijf getrouwheidscontroles wordt op elk perceel uitgevoerd?? En welke acceptatiecriteria een passerende partij definiëren voordat de eerste wordt gemaakt?
Een gestructureerde ontwerp-naar-QC-workflow ondersteunt dit. MOL-wijzigingen kunnen worden gebruikt om de ncAA-selectie op één lijn te brengen, syntheseroute en analytische vrijgavecriteria in één overdracht, De controles die in de ontwerpfase zijn overeengekomen, zijn dus de controles die op schaal worden uitgevoerd. Vraag schriftelijk naar het bedieningspaneel op lotniveau, en vergelijk het met uw eigen specificatie voordat u een commit maakt.
Veel voorkomende misvattingen over uitgebreide genetische codes
Vier fouten komen vaak genoeg voor in programmarecensies, zodat ze de moeite waard zijn om direct te benoemen.
De eerste is dat een uitgebreide genetische code een herschreven genoom betekent. In de praktijk betekent dit meestal één opnieuw toegewezen codon en één orthogonaal paar, toegevoegd aan een host die verder ongewijzigd is.
De tweede is dat een hogere opname-efficiëntie een hogere zuiverheid betekent. De twee kunnen in tegengestelde richtingen bewegen: Het opnieuw toewijzen van sense-codons kan de opbrengst behouden terwijl de zuiverheid afneemt, omdat het opnieuw toegewezen codon nu beschikbaar is voor bijna verwante tRNA's en voor het orthogonale paar.
De derde is dat elk niet-canoniek aminozuur in elke productieroute kan worden ingezet. De backbone-modificatiesplitsing is een harde grens, geen voorkeur: residuen die de ruggengraat veranderen, kunnen niet worden geïnstalleerd door ribosomale incorporatie, en residuen die het ribosoom nodig hebben, kunnen niet door SPPS worden gemaakt.
De vierde betreft het testen van releases.
⚠️Waarschuwing: Een enkele intacte massa bevestigt de volgorde niet. Zonder fragmentionen die het gemodificeerde residu omspannen, een epimeer of een verkeerde incorporatie op een nabijgelegen positie kan aan dezelfde specificatie voldoen.
Waar de Toolbox naartoe gaat
Nu deze misvattingen zijn opgehelderd, de reisrichting is gericht op het gelijktijdig gebruiken van meer code. Waar het vroege werk afhankelijk was van een enkel orthogonaal paar, recente systemen hebben aangetoond dat onderling orthogonale paren die samen worden gebruikt, in dezelfde cel kunnen werken, dat is wat de integratie van verschillende niet-canonieke aminozuren op meerdere locaties tot een ontwerpoptie maakt in plaats van een gedachte-experiment.
Een tweede verschuiving is architectonisch. De belangstelling is verschoven naar celvrije en op extracten gebaseerde systemen die permanente modificatie van het gastheergenoom vermijden, wat de cyclus tussen het ontwerpen van een construct en het testen ervan verkort. Daarnaast, codonwerk met vier nucleotiden breidt de beschikbare codonruimte uit tot voorbij de standaard 64, het vergroten van de beschikbare ruimte voor herplaatsing.
Het eerlijke voorbehoud is onveranderd: de onderdrukkingsefficiëntie blijft ncAA- en volgorde-contextafhankelijk, en niet elk niet-canoniek aminozuur is compatibel met elke route. Daarom is het evaluatiekader in Synthetische peptiden deze gids, in plaats van een bepaald paar of platform, is het onderdeel dat de moeite waard is om te behouden: Uitgebreide genetische codes voor op maat gemaakt peptideontwerp zullen blijven veranderen, maar de bedieningselementen die bewijzen wat je hebt gebouwd, zullen dat niet doen.
Volgende stappen
Breng een specifieke volgorde en een specifieke betrouwbaarheidsvereiste naar het eerste technische gesprek over uitgebreide genetische codes voor op maat gemaakt peptideontwerp, geen algemeen onderzoek. De onderstaande evaluatiechecklist zet het vierdelige raamwerk in deze gids om in vragen die een partner moet kunnen beantwoorden zonder zich in te dekken:
-
Welk orthogonaal paar, en welke onderdrukkingsefficiëntie ervoor is waargenomen in uw expressiehost?
-
Welke codonstrategie: onderdrukking van amber, hertoewijzing van sense-codons, of een vierlingcodon?
-
Welke route voor deze reeks: SPSS, celvrije synthese, of fermentatie, en waarom die?
-
Welke conjugatiechemie, en blijft het orthogonaal ten opzichte van de residuen die zich al in de keten bevinden??
-
Welke van de vijf sequentiële analytische controles worden per partij uitgevoerd?, en wat zijn de acceptatiecriteria?
Een partner die ze alle vijf kan beantwoorden, en zeg duidelijk waar een bepaalde ncAA of route niet zal werken, is meer waard dan een lagere offerte. MOL Changes ondersteunt dit soort ontwerp-naar-QC-gesprekken over de hele wereld 300+ functionele groepen, SPPS en microbiële fermentatie, mg-tot-kg-schaal, en HPLC/MS en steriliteit QC onder klasse 100 cleanroomomstandigheden.
Openbaring: MOL Changes is de sponsor van deze gids. Het bovenstaande raamwerk en de evaluatiecriteria worden gepresenteerd voor onderzoeks- en vergelijkingsdoeleinden. Over
Veelgestelde vragen
Wat is een uitgebreide genetische code?
Een uitgebreide genetische code is een vertaalsysteem waarin een of meer codons opnieuw zijn toegewezen om een niet-canoniek aminozuur te specificeren in plaats van het standaardaminozuur. De herplaatsing is doelgericht en niet mondiaal: een orthogonaal tRNA en zijn aminoacyl-tRNA-synthetase-paar worden geïntroduceerd, zodat de synthetase alleen zijn verwante gemanipuleerde tRNA oplaadt, het eigen vertaalapparaat van de gastheer onaangeroerd latend. In het standaardframe van 64 codons, dat laat ruimte over om een nieuwe chemische functie op een gekozen positie te installeren zonder de rest van het proteoom te herschrijven.
Hoeveel niet-canonieke aminozuren kunnen genetisch worden gecodeerd??
A 2025 Volgens een beoordelingsschatting is het aantal genetisch codeerbare niet-canonieke aminozuren overschreden 300, hoewel dat cijfer eerder de cumulatieve gereedschapskist van het veld beschrijft dan wat een enkel systeem kan bieden. Het praktische aantal is veel kleiner, omdat elke ncAA een compatibel orthogonaal paar nodig heeft en een host die de nieuwe toewijzing tolereert. Beschouw het kopnummer als een bovengrens voor wat ergens is aangetoond, niet als een menu waaruit u kunt bestellen.
Wat is het verschil tussen amberonderdrukking en hertoewijzing van sense-codons?
Onderdrukking van amber wordt door het UAG-stopcodon gelezen en concurreert rechtstreeks met de afgiftefactor 1, dus de karakteristieke faalmodus is een afgeknot product. Hertoewijzing van sense-codons verwisselt een codon dat normaal gesproken codeert voor een standaardresidu, dus de faalmodus is een gemengde populatie: De opbrengst kan hoog blijven terwijl de zuiverheid afneemt, omdat het wildtype residu nog steeds naast het ncAA is opgenomen. Dat verschil bepaalt welke besturingselementen je nodig hebt, omdat afknotting in de intacte massa voorkomt, terwijl verkeerde vertaling dat niet doet.
Welke niet-canonieke aminozuren kunnen worden gemaakt door SPPS in plaats van door uitbreiding van de genetische code?
β-aminozuren, A,a-digesubstitueerde residuen, depsipeptidebindingen en veel N-gemethyleerde residuen zijn meestal alleen toegankelijk via vaste-fasesynthese of in vitro-chemie, omdat het ribosoom ze niet als substraat accepteert. De genetisch codeerbare klasse is smaller: zijketenmodificaties gebouwd op een α-aminozuurskelet. Selenocysteïne is de natuurlijke uitzondering, gecodeerd via zijn eigen speciale machines in plaats van via een ontwikkeld paar. Peptideproductie
Hoe bevestig je dat een niet-canoniek aminozuur op de beoogde plaats is opgenomen??
Bevestiging vereist exacte massa plus sequentielokaliserende fragmentionen die het gemodificeerde residu omspannen, meestal door LC-MS/MS, samen met een kwantificering van de opname-efficiëntie en een epimeercontrole tegen een synthetische referentie. Een intacte massa alleen is onvoldoende omdat deze de beoogde plaats niet kan onderscheiden van een positioneel isomeer of een deletievariant met een vergelijkbare massa. De fragmentionen lokaliseren het residu; de massa vertelt je alleen dat er iets veranderd is.
Kunnen niet-canonieke aminozuren op meer dan één plaats worden opgenomen??
Ja, maar integratie op meerdere locaties vermenigvuldigt de analytische last in plaats van eenvoudigweg een workflow op één locatie te herhalen. Elke extra positie voegt zijn eigen onderdrukkings- of hertoewijzingsgebeurtenis toe, en de fractie van het product dat de ncAA op elke beoogde locatie draagt, daalt naarmate de posities zich opstapelen, dus de populatie wordt een verspreiding van gedeeltelijk gemodificeerde soorten. U moet van tevoren beslissen of de test deze verdeling oplost, omdat een methode die voor één site is gevalideerd, niet automatisch voor vier sites rapporteert.
Is de uitbreiding van genetische code schaalbaar voor de productie van peptiden in de klinische fase??
Schaalbaarheid hangt af van welke route u kiest, and the two routes fail differently. Cell-free protein synthesis has demonstrated yields in the ranges reported earlier in this article, but those figures come from defined experimental systems and do not transfer automatically to a GMP process. Solid-phase synthesis scales more predictably for shorter sequences but cannot reach the residues that are SPPS-only. For clinical-stage work, the practical question is not whether the chemistry scales but whether your analytical package can prove lot-to-lot sequence fidelity at that scale.
Conclusie
The codon strategy you choose determines the failure mode you inherit, so the control package that proves sequence fidelity has to be specified before the first lot, niet erna. That is the thread running through this guide: Uitgebreide genetische codes voor op maat gemaakt peptideontwerp zijn een evaluatieprobleem voordat ze een syntheseprobleem zijn.
De vier beslissingen die een partner schriftelijk moet kunnen verdedigen zijn het niet-canonieke aminozuur en het onderdrukkingsgedrag ervan in uw sequentiecontext, het bibliotheekontwerp en hoe dit de route beperkt, de conjugatiechemie en wat deze intact laat, en de analytische acceptatiecriteria met hun methoden en limieten. Ieder versmalt de volgende.
De rijrichting is in de richting van onderling orthogonale paren die samen worden gebruikt, celvrije en op extracten gebaseerde systemen die het gastheergenoom onaangetast laten, en codons van vier nucleotiden die de beschikbare codonruimte voorbij de standaard uitbreiden 64. Het eerlijke voorbehoud is dat de onderdrukkingsefficiëntie afhankelijk blijft van de ncAA en de omringende reeks, en niet elke ncAA is compatibel met elke route.
Gebruik de checklist in Next Steps als basis voor uw eerste technische gesprek.
Over de auteur: [Naam auteur], [referenties], schrijft over peptideontwerp en analytische controlestrategie voor MOL Changes.
Openbaring: MOL Changes biedt peptideontwerp, synthese en analytische diensten, inclusief de mogelijkheden die in deze handleiding worden besproken.