Hvorfor den konventionelle renhed-første visning af poredannende peptiddesign er ufuldstændig
Mainstream-frigivelseskriteriet for et membranaktivt peptid er et enkelt tal: omvendt fase HPLC-arealrenhed, normalt på eller over 95%, plus et massespektrum, der bekræfter den forventede intakte masse. Den standard er virkelig nyttig, og det er værd at være præcis om, hvad det fastslår. RP-HPLC rapporterer kromatografisk renhed, betyder andelen af UV-absorberende materiale, der sidder i hovedtoppen, mens massespektrometri rapporterer intakt masse og, med MS/MS, fragmenteringsunderstøttelse på sekvensniveau (Kapitel om PMC-metoder). Sammen besvarer de et rigtigt spørgsmål: hvad der blev lavet, og hvor ren er den.
Selve niveauerne er konventioner snarere end krav. Leverandører angiver almindeligvis ≥95 % RP-HPLC-areal som gulv i forskningskvalitet, ≥98% som det moderne forsknings- og GMP-gulv, og ≥99 % for premium eller klinisk materiale (peptidrenhedsreferencesæt, 2025). Disse er rapporterede leverandørkonventioner, ikke et kompendielt mandat.
Udsigten blev dominerende, fordi den er billig, hurtig, ortogonal, og tilstrækkelig til de fleste ikke-membran-mål. Dens oprindelse er analytisk-kemi praksis, ikke biofysik, det er her, de første begrænsninger for testning af peptidrenhed vises: procent-areal renhed nævner ikke de urenheder, den udelukker.
⚠️ Advarsel: arealprocentenhed kvantificerer ikke deletionssekvenser, afkortninger, co-eluerende diastereomerer, modioner (TFA, acetat, chlorid) eller vandindhold, så netto peptidindhold kan afvige fra mærkevægt (vejledning til test af peptidrenhed, 2026).
Peptidsyntese To prøver med samme nominelle masse kan derfor bære forskellige effektive koncentrationer, og ingen af certifikaterne fortæller dig, om peptidet indsætter, oligomeriserer, eller danner en stabil pore i en membran.
Hvad den 2026 Pore-dannelsesforskning viser faktisk
Den reframing starter med 2026 Naturens kemiske biologi undersøgelse fra Deb og kolleger, som behandler poredannende peptiddesign som en sekvenskodet egenskab snarere end et oprensningsresultat. Holdet løb 51 µs af upartisk grovkornet molekylær dynamik (Martini 2.2 / GROMACS) på tværs nogenlunde 150 præmonterede oktamere transmembrane cylinderporer i POPC, validerede banerne med 2 µs all-atom simuleringer, derefter syntetiseret 22 peptider og testede dem ved calceinlækage, plan tolags elektrofysiologi, AFM i realtid, CD, og GUV dextran transport (American Peptide Society, 2026-08-06).
To resultater betyder noget for enhver, der redigerer en sekvens. Først, konduktansen ankom i diskrete trin: enkelt-pore værdier af 0.116, 0.251, 0.353, og 0.424 nS (American Peptide Society, 2026-08-06). En tøndestavpore, hvor peptider beklæder en fast kanal, og en toroidal pore, hvor lipid-dobbeltlaget selv krummer ind i slimhinden, producere forskellige konduktanssignaturer, så det trinvise mønster er en udlæsning af arkitektur, ikke kun af hvor meget peptid der er bundet. Anden, real-time AFM fangede porer nogenlunde 6 nm bred indeni 20 minutters peptidtilsætning (American Peptide Society, 2026-08-06).
Rørledningen destillerede også 52 tilladte sekvensskabeloner i fire klasser, rangeret efter interaktionstæthed fra en 150-peptid MD-scanning (American Peptide Society, 2026-08-06). Læs disse tal som assaybetingelser, ikke konstanter: hver konduktansværdi tilhører en specifik dobbeltlagsmodel, ionstyrke, og spænding, og ingen af dem overføres direkte til et andet membransystem.
Hvordan sekvensredigeringer flytter et peptid mellem porefænotyper
Den enhed, der ændrer peptidsekvens og membranaktivitet, er substitutionen, ikke peptidet. Enkelte og grupperede redigeringer kan flytte en rygrad mellem tre tilstande: ingen membranaktivitet, forbigående lækage, og en stabil pore.
Aromatisk placering er den klareste håndtag. I Deb et al.s designs, optimale aromatiske positioner flyttet fra rester 13 og 19 i en 30-rester kerne til 13, 15, 8 og 26 når kernen blev forkortet til 22 rester, og helixhældning ændret fra 50° til 30° i forhold til membrannormalen (American Peptide Society, 2026-08-06). Ladning kan erstatte denne forankring: fire Arg-Asp-saltbroer pr. grænseflade bibeholdt poreintegriteten selv med fjernet aromatisk stabling (American Peptide Society, 2026-08-06). Elektrostatikken sætter drivkraften, da kationiske peptider viste nogenlunde 20 kJ mol⁻1 større affinitet for anionisk POPE:POPG end zwitterioniske POPC-dobbeltlag (American Peptide Society, 2026-08-06).
Stereokemi er en selvstændig anden akse. Udskiftning af hver rest af DpPorA til dens D-enantiomer ændrede enhedskonduktans fra ca 4 nS til 1.5 ± 0.3 nS kl +100 mV ind 1 M KCl (n = 75), og på tværs 100 indsætter D-form split 75%/25% mellem ~1,5 nS og ~4 nS tilstande med PK⁺/PCl⁻ ≈ 7:1 (Ge et al., Nat Fælles, 2022-09-14).
|
Sekvensfunktion |
Forventet membraneffekt |
Assay, der detekterer det |
|---|---|---|
|
Helicitet |
Om peptidet kan spænde over dobbeltlaget som en kontinuerlig helix |
Cirkulær dikroisme i POPC vs POPE:POPG-vesikler |
|
Hydrofobisk øjeblik |
Dybde og stabilitet af membranindsættelse |
Tryptophan fluorescensskift; vesikellækagekinetik |
|
Opladningsplacering |
Lipid-hovedgruppe-selektivitet og saltbro-stabilisering |
Zeta potentiale; konduktans i anioniske vs zwitterioniske dobbeltlag |
|
Aromatisk placering |
Grænsefladeforankring og helixtilt |
Orienteret cirkulær dikroisme; solid-state NMR hældningsvinkler |
|
Geometri og hældning |
Hvilken arkitektur danner: tønde-stav, toroid- eller β-ark |
Enkeltkanals ledningsevne; orienteret CD; FTIR amid I |
Lysin, arginin og større rester fungerer som membran-desorption gatekeepere, blokering af dyb indsættelse eller bulktranslokation (PMC, 2021-12-24).
Hvorfor renhedstestning ikke kan forudsige membranadfærd
Du har sikkert allerede set dette: to hætteglas, samme nominelle masse, samme certifikat, og en af dem opfører sig simpelthen ikke, som analysen siger, den skal. Certifikatet er ikke forkert. Det er at besvare et snævrere spørgsmål end det, du stiller.
Omvendt-fase HPLC og massespektrometri etablerer identitet og kromatografisk renhed. Hverken etablerer fold eller sekundær struktur, oligomer tilstand, aggregeringstilstand under native forhold, eller membranadfærd; disse kræver separate biofysiske eller cellebaserede assays (PMC analytisk gennemgang). Percent-areal renhed bærer også en modion og resterende vand-forvirring, så to prøver af samme nominelle masse kan levere forskellige effektive koncentrationer, når de er opløst. Forskellig effektiv koncentration betyder forskellig tilsyneladende membranaktivitet, selv når rækkefølgen er identisk.
Funktionelle resultater er støjende af deres egne årsager. Minimum hæmmende koncentrationsværdier bevæger sig almindeligvis med et til to fortyndingstrin mellem laboratorier, brugere og metoder, og udeladelse af kontroller, ved at bruge det forkerte inokulum (angivet som 5 x 10⁵ CFU/ml) eller afvigelse fra vækstbetingelser kan forvrænge resultater (MIC-metodegennemgang, 2024). Reproducerbarhedsproblemet strækker sig til forudsigelse: i en 2026 benchmark af 48 offentliggjorte metoder til forudsigelse af antimikrobielle peptider, færre end 25% var reproducerbare (BATTLE-AMP benchmark, bioRxiv, 2026). Det er et præprint benchmark af metoder, ikke af peptider, men det sætter forventninger til, hvor meget af en designbeslutning, der kan afgøres på papiret.
Det er her tilpasset peptidkarakterisering slutter, og dit eget arbejde begynder.
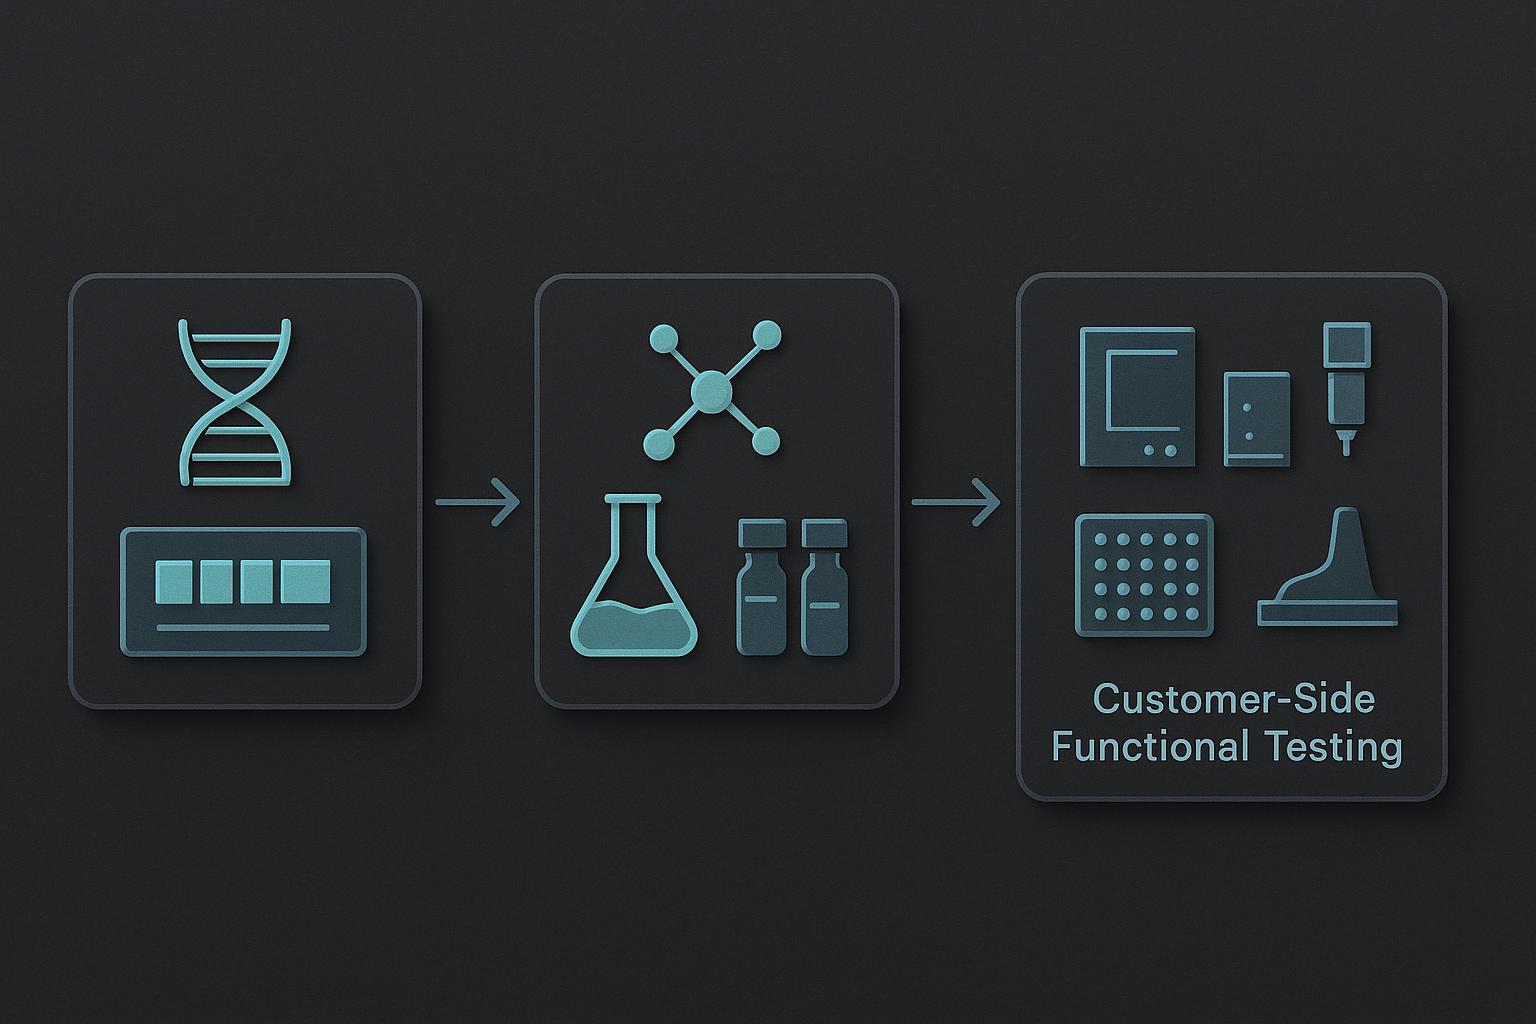
Nøgle takeaway: analytisk frigivelsestest er leverandørsiden; membranfunktionstest er kundesiden.
En bedre ramme for poredannende peptiddesign
Design poredannende peptider mod en målporearkitektur og et målassay, ikke mod en renhedsspecifikation. Den enkelte ændring i designmålet reorganiserer hele projektet.
Fem principper følger af 2026 data:
-
Vælg først arkitekturen. Beslut om du vil have en tøndestav, toroidal, eller uordnet udtyndende pore, før du rører ved sekvensen, fordi hver arkitektur indebærer et andet sæt sekvensbegrænsninger.
-
Behandl aromatisk placering og saltbroer som stabilitetslaget. De styrer, hvor længe samlingen holder sammen i en membran, ikke hvor stærkt det binder.
-
Behandl ladningsplacering som selektivitetslaget. Hvor de kationiske rester sidder i forhold til de hydrofobe fladesæt, som membraner, skelner peptidet mellem.
-
Behandl stereokemi som en fænotypevariabel. En D-aminosyresubstitution er ikke en fodnote; det kan flytte et peptid mellem porefænotyper.
-
Forpligt dig til den funktionelle udlæsning før syntese. Bestem analysen, lipidsystemet, og peptid-til-lipid-forholdene på forhånd, så syntesebatchen har noget at teste imod.
Beviset er, at dette er brugbart i skala. EN 2026 design pipeline flyttet fra en 150-peptid in-silico scanning til 22 syntetiserede peptider, med calceinlækage og beregnet porehydrering, der korrelerer på tværs af sættet. Det ledende peptid, KDFA2i + 9-NH2, produceret nogenlunde 20% calceinfrigivelse ved et peptid-til-lipid-forhold på 1:2,000, stiger med højere nøgletal (American Peptide Society, 2026). Bemærk, hvad det tal er: et funktionelt resultat ved et defineret forhold i et defineret system, hvilket er præcis den slags beviser et analysecertifikat ikke kan levere.
For hold uden egen syntese, MOL Changes understøtter brugerdefineret sekvensdesign og ændringsarbejde, som kan bruges til at omdanne en valgt arkitektur til et peptid, der kan bestilles, mens den funktionelle test forbliver i dit eget assay.
Intet af dette er deterministisk. Sekvens-til-pore-regler er sandsynlige, og nogle veldesignede peptider vil stadig mislykkes i deres første assay. Rammens værdi er, at den gør fiaskoen informativ snarere end tvetydig.
Valg af funktionelle analyser, der komplementerer renhedsdata
Det første handlingstrin er at vælge den analyse, der besvarer spørgsmålet, renhedstestning ikke kan: ikke "hvad der er i dette hætteglas," men "hvad gør dette peptid ved en membran." For Syntetiske peptider funktionelle assays for membranaktive peptider, det betyder, at man matcher udlæsningen med den poreegenskab, der testes, i stedet for at standardisere den pladelæser, der er ledig.
Calcein-lækage måler farvestoffrigivelse fra lipidvesikler og rapporterer bulkpermeabilisering. DiSC₃-5 depolarisering sporer tabet af et membranpotentiale over en bakteriel membran, så det rapporterer membranforstyrrelser i en mere fysiologisk sammenhæng. Plan tolags enkeltkanalsoptagelse måler strøm gennem én pore ad gangen, som er den eneste af de tre, der løser enhedskonduktans.
De tre sidder på vidt forskellige følsomhedsskalaer. Calcein-lækage kræver typisk peptidkoncentrationer i 1 til 25 µM interval mod nogenlunde 20 µM lipid med 75 mM intraliposomalt calcein, mens DiSC₃-5 depolariseringseffekter klynger sig rundt 19 µM. Enkeltkanalarbejde når sub-mikromolære til lave mikromolære koncentrationer, med offentliggjorte påvisninger kl 0.3 µM, 0.8 til 4.1 µM, og 6.2 µM, løse konduktanser fra ca 6 til 360 pS op til nanosiemens rækkevidde. Et peptid, der ser inert ud i en lækageanalyse, kan simpelthen være under detektionsgulvet for den udlæsning.
|
Assay |
Spørgsmål det besvarer |
Nødvendig kontrol |
Blind vinkel |
|---|---|---|---|
|
Calcein lækage |
Permeabiliserer peptidet lipid-dobbeltlag i bulk? |
Vesikler uden peptid; vaskemiddel til 100% frigøre |
Fjerner i gennemsnit forbigående eller sjældne porer |
|
DiSC3-5 depolarisering |
Kollapser det membranpotentialet? |
Protonofor kontrol; peptidfri membran |
Kan ikke adskille poredannelse fra membransolubilisering |
|
Plan tolags enkeltkanal |
Hvad er den enhedskonduktans og levetid for én pore? |
Peptidfrit dobbeltlag; spændingsvending kører |
Lav gennemstrømning; en pore repræsenterer muligvis ikke populationen |
Den blinde vinkel i første række er ikke hypotetisk. Et Wza-baseret D-peptid, DcWza, produceret enhedsledning af 0.95 ± 0.1 nS kl +200 mV ind 1 M KCl på tværs 50 begivenheder, dog var vesikelpermeabilisering efter en time 4.6 ± 2.5% mod en kontrol af 4.2 ± 2.1% (Ge et al., Naturkommunikation, 2022). Forbigående porer, der skubbes ud i stedet for at blive ved, efterlader næsten ingen spor i en bulklækageaflæsning. Det er tilfældet for at køre single-channel arbejde ved siden af, ikke i stedet for, vesikelanalyser.
Implementering, i orden:
-
Definer membranmodellen og lipidsammensætningen. Match lipidblandingen til den biologiske membran, du holder af. Hurtig sejr: en læsedag og en beslutning.
-
Vælg udlæsningen. Bulklækage for en første passage, depolarisering til en fysiologisk kontekst, enkeltkanal til mekanisme. Længere sigt: enkeltkanalrigge tager uger at idriftsætte.
-
Reparer kontrollerne. Peptidfri vesikler, en positiv forstyrrer, og et råstof, der kun indeholder opløsningsmidler. Hurtig sejr, men at springe over det ugyldiggør alt nedstrøms.
-
Indstil koncentrationsområdet. Spænd mindst to størrelsesordener omkring din forventede tærskel, og husk detekteringsgulvene ovenfor.
-
Forudregistrer beståelseskriteriet. Skriv ned, hvad der tæller som aktivt, før du kører pladen. Dette er det trin, de fleste hold springer over og mest fortryder.
Mål lækagehastigheden, enhedskonduktans, og selektivitetsforhold. En realistisk tidslinje er to til fire uger for et valideret vesikelassay og to til tre måneder før enkeltkanaldata er publiceringsgrad.
Forbehold og hvor det konventionelle syn stadig holder
Designreglerne er sandsynlige, ikke deterministisk, og nogle designede porer svigter. Det er den vigtigste begrænsning at sige klart, fordi det også er den ærlige grund til, at renheds-først-tænkning fortsætter: renhed er målbar, gentagelig, og billigt at certificere, mens membranadfærd ikke er nogen af disse ting. Peptid produktion
Konteksten betyder mere end argumentet. Til ikke-membranmål, eller til screening af biblioteker, hvor udlæsningen er bindende frem for permeabilisering, RP-HPLC og MS renhed er virkelig det rigtige frigivelseskriterium, og begrænsninger for testning af peptidrenhed bliver kun et problem, når certifikatet bliver bedt om at besvare et spørgsmål, det aldrig er designet til at besvare.
Den svageste del af sagen er selve bevisgrundlaget. Meget af 2026 designvejledningen stammer fra en enkelt grovkornet MD-rørledning i POPC, og saltbro-redningen blev demonstreret i simulering, før nogen syntetiserede peptidet. Ingen af resultaterne er forkerte; begge er snævrere end en designregel antyder.
Behandl rammen som en hypotesegenerator, ikke en specifikation. Den fortæller dig, hvilke sekvensredigeringer der er værd at lave, og hvilke analyser der er værd at køre, og den forventer stadig, at nogle af disse porer svigter.
Men høj renhed garanterer ikke reproducerbar membranaktivitet?
Ingen. Renhed begrænser, hvad der er i hætteglasset, ikke hvordan det materiale samles i et dobbeltlag. En ≥98% specifikation er ikke meningsløs, selvom: det fjerner en stor klasse af forvirring, inklusive trunkerede sekvenser, sletning af urenheder, og rensende biprodukter, der ellers ville mudre enhver aktivitetsudlæsning. Hvad det ikke kan gøre, er at fortælle dig, om peptidet indsætter, oligomeriserer, eller danner den porearkitektur, dit design antog.
Hvis et projekt allerede er låst til et workflow, der kun er renhed, du behøver ikke at genopbygge programmet. Tilføj en ortogonal funktionel udlæsning, såsom et vesikellækageassay eller en planar dobbeltlagskonduktansmåling, og brug det til at bekræfte, at det frigivne parti opfører sig som designet har til hensigt.
Behandl aktivitet rapporteret fra et peptid kun karakteriseret ved HPLC og MS som foreløbig. Uden synlige assaybetingelser og kontroller, du kan ikke se, om den observerede effekt kom fra peptidet, en resterende modion, eller bufferen.
Konklusion: Fra renhedscertifikat til funktionelt bevis
Renhed er nødvendig, men ikke tilstrækkelig til poredannende peptiddesign: et kromatogram kan bekræfte, hvad et molekyle er, aldrig hvad den gør ved en membran.
Det praktiske skift er i frigivelseskriterier. Til membranaktive peptider, analytiske data skal rejse med mindst én funktionel udlæsning, og offentliggjorte aktivitetsnumre bør ankomme sammen med de assaybetingelser og kontroller, der producerede dem. Denne parring er det, der gør et resultat reproducerbart i andres hænder snarere end kun i laboratoriet, der genererede det.
Intet af dette beder dig om at genopbygge et eksisterende program. Start med at kortlægge de sekvensfunktioner, du allerede kontrollerer, til den membranadfærd, du faktisk har brug for, vælg derefter den analyse, der detekterer denne adfærd. En tjekliste for designworkflow og karakterisering kan gøre denne kortlægning eksplicit, før det næste parti bestilles.
Kørselsretningen er mod designregler, der er sandsynlige, men brugbare: god nok til at indsnævre et sekvensrum, ærlig nok til at sige, hvornår en designet pore ikke vil opføre sig efter hensigten.